Acción de catepsinas

(Lisosomales endo- y exopeptidasas / Familias C1, A1: Catepsinas B, D, H, L / EC 3.4.22.-, EC 3.4.23.5)

Transcripción IPA: [akˈsjon de katepˈsinas]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

La acción de las catepsinas engloba la degradación proteolítica mediada por una familia de enzimas hidrolíticas compartimentadas originalmente en los lisosomas del tejido animal, abarcando cisteína endopeptidasas (catepsinas B, H y L) y aspartil proteasas (catepsina D). A diferencia de los sistemas enzimáticos citosólicos neutros, las catepsinas poseen un pH óptimo marcadamente ácido (pH 3.5 a 5.5). Durante el proceso post mortem y la senescencia celular, la progresiva caída del pH metabólico y la ruptura osmótica de las membranas lisosomales liberan estas enzimas hacia el sarcoplasma, donde catalizan una hidrólisis mucho más extensa y profunda que la de las calpaínas, atacando no solo proteínas estructurales como la titina y la nebulina, sino también componentes del complejo actomiosina (miosina, actina) y enlaces telopeptídicos del colágeno intramuscular.

En la ciencia gastronómica aplicada a maduraciones extremadamente prolongadas (dry-aging superior a 45–100 días, maduraciones de jamones curados ibéricos o pescados grasos madurados), las catepsinas desempeñan el papel principal en la textura tardía y en la génesis de sabor. Mediante su actividad concertada endo- y carboxi/aminopeptidásica, fragmentan péptidos de alto peso molecular liberando oligopéptidos de bajo peso molecular y aminoácidos libres precursores (ácido glutámico, aspártico, fenilalanina, arginina), los cuales constituyen la base química del sabor umami, la salinidad percibida intrínseca y los reactivos sustrato para posteriores transformaciones termo-químicas de Maillard.

II. Etimología e Historia Gastronómica

El concepto de 'catepsina' fue introducido en Munich en 1929 por el premio Nobel Richard Willstätter y su colega Eugen Bamann, al aislar de órganos animales un principio proteolítico intracelular que operaba en medios débilmente ácidos sin necesidad de secreción hacia tractos digestivos luminales. Durante las décadas centrales del siglo XX, Christian de Duve, en sus investigaciones citológicas fundamentales que le valieron el Premio Nobel en 1974, caracterizó a los lisosomas como las organelas de almacenamiento de estas hidrolasas ácidas, delimitando su membrana lipídica como una barrera contra la autólisis celular no regulada.

A finales del siglo XX e inicios del XXI, la investigación en productos cárnicos curados en España, Italia y Francia desveló que la catepsina B (cisteína proteasa, 27 kDa) y la catepsina D (aspartil proteasa, 48 kDa) sobreviven a elevadas fuerzas iónicas (concentraciones de cloruro sódico superiores al 5-8%) y persisten activas durante meses o años a temperaturas moderadas. Maestros de la vanguardia culinaria molecular integraron este conocimiento para diseñar protocolos de maduración anaeróbica y curaciones hiper-extendidas en charcutería marina y carnes de caza, modulando las tasas de proteólisis mediante el control estricto de la actividad de agua (aw) y gradientes de pH.
III. Ciencia Culinaria y Bioquímica

La actividad de las cisteína catepsinas (B, L) se basa en la reactividad del tiol de Cys29 interactuando con His199, estabilizado por un carboxilato de Asn219, operando de forma óptima a pH 5.0–6.0. La catepsina D, por su parte, es una endopeptidasa aspártica que depende de dos residuos Asp (Asp32 y Asp215) en su centro catalítico, presentando un pKa coordinado que maximiza su catálisis hidrolítica a pH 3.0–4.0; a este pH, un aspartato actúa como aceptor de protones y el otro como donante, activando una molécula de agua para el ataque nucleofílico sobre el enlace peptídico carbonílico del sustrato miofibrilar. La rotura de la membrana lisosomal post mortem es un proceso termodinámicamente irreversible impulsado por la acidificación láctica (pérdida de gradientes H⁺ transmembrana impulsados por V-ATPasas), choque osmótico y el ataque de especies reactivas del oxígeno (ROS) sobre los fosfolípidos de membrana.

Una vez en el espacio miofibrilar, la catepsina D escinde preferencialmente enlaces que contienen residuos hidrofóbicos voluminosos (Phe-Phe, Phe-Tyr, Leu-Tyr), degradando tanto la cadena pesada de miosina (MHC, 220 kDa) en fragmentos de menor tamaño molecular como el colágeno desnaturalizado o sus zonas telopeptídicas no helicoidales. La constante cinética Km de la catepsina B para sustratos proteicos musculares típicos se sitúa en rangos micromolares (10 a 50 μM), manteniendo una semivida catalítica prolongada incluso a aw subóptimas de 0.88–0.92 en embutidos crudo-curados. A nivel macroscópico, el grado de proteólisis (expresado como el índice de nitrógeno no proteico NPN / nitrógeno total NT x 100) puede ascender desde un 8% en músculo fresco hasta más de un 25-30% tras 18 meses de maduración, reflejando una profunda desestructuración de la arquitectura contráctil que licúa o pastifica el tejido si no se equilibra con la pérdida hídrica por deshidratación.

IV. Protocolo de Ejecución y Precisión Técnica

Para gestionar la activación o inhibición de la acción de catepsinas en charcutería contemporánea, maduración de túnidos o añejamiento extremo de carne, se controla el perfil hídrico y salino del producto. En un procedimiento de curado controlado de magret o lomo, se calcula una concentración de NaCl de 24.0 g/kg a 28.0 g/kg de masa muscular limpia. La salazón inicial se ejecuta a 2.0 °C–4.0 °C con una HR del 85% durante el tiempo estricto calculado según el coeficiente de difusión de Fick del ion sodio en la matriz (aproximadamente 1.5 a 2 días por kilogramo de grosor transversal), garantizando que la fuerza iónica no inactive prematuramente a la catepsina D pero regule la sobreactivación de la catepsina B.

Durante la fase de secado-maduración secundaria en secadero con control microclimático de precisión, la temperatura se eleva gradualmente a 12.0 °C–15.0 °C con HR descendente del 75% al 68%, midiendo la actividad de agua (aw) mediante un higrómetro de punto de rocío de espejo enfriado con precisión de ±0.003 aw. El límite de control crítico se fija en alcanzar una aw de 0.89 a 0.91 en un período de 60 a 90 días. Si se detecta un exceso de proteólisis temprana (evaluado tomando alícuotas del centro de la pieza y midiendo tirosina libre mediante espectrofotometría tras reacción con reactivo de Folin-Ciocalteu), se reduce de inmediato la temperatura de la cámara a 8.0 °C y se incrementa el flujo de extracción de aire para inducir una deshidratación superficial controlada que restrinja la movilidad molecular del solvente y frene la hidrólisis enzimatica antes de comprometer la firmeza.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Provocar el defecto de 'textura pastosa' (pastiness) en jamones curados o pescados grasos madurados, como resultado de una actividad descontrolada de las catepsinas B y L debido a concentraciones excesivamente bajas de sal (<20 g/kg) combinadas con temperaturas de maduración superiores a 18 °C en etapas tempranas de curación; el tejido sufre una hidrólisis excesiva de actomiosina, transformándose en una masa amorfa y gomosa que se adhiere al paladar.

Error #2

Inactivación térmica indeseada de catepsinas durante tratamientos de tenderización por cocción sous-vide demasiado rápidos a temperaturas >65 °C; las catepsinas, particularmente la catepsina D, mantienen actividad hidrolítica residual notable a temperaturas entre 45 °C y 55 °C durante tiempos cortos, pero son rápidamente desnaturalizadas por encima de 60 °C, perdiéndose la oportunidad de degradar fragmentos de colágeno telopeptídico en cortes duros.

Error #3

Generación de regustos intensamente amargos o metálicos causados por un desbalance en la hidrólisis lisosomal donde la acción endopeptidásica supera a la de las aminopeptidasas exocelulares; se produce una acumulación masiva de oligopéptidos hidrofóbicos de bajo peso molecular ricos en prolina, leucina y fenilalanina que saturan negativamente los receptores gustativos T2R.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Ácido alfa-linolénico

Ácido alfa-linolénico

/ˈasiðo ˈalfa linoˈleniko/

El ácido alfa-linolénico (ALA) es un ácido graso poliinsaturado trienoico esencial perteneciente a la serie omega-3 (n-3), con fórmula molecular C18H30O2 (MW 278.43 g/mol) y configuración estereoquímica estricta all-cis-9,12,15-octadecatrienoico. Al integrar tres dobles enlaces cis secuenciales separados por dos centros metilénicos bis-alílicos independientes, su cadena acíclica adopta una conformación curvada y sumamente dinámica en el espacio tridimensional. Esta conformación perturba cualquier intento de agregación hidrofóbica cristalina, determinando un punto de fusión extremadamente bajo (-11 °C) y una fluidez membranaria y coloidal superior. En la alta cocina, el ALA es el componente biomolecular insignia de aceites de linaza virgen, nuez, perilla, chía y extractos cloroplásticos de hojas tiernas, exhibiendo notas aromáticas verdes, herbáceas y terrosas refinadas. Representa el sustrato biológico por excelencia para la lipoxigenasa vegetal que da origen a los aldehídos de seis y nueve carbonos típicos del 'aroma verde fresco' (como cis-3-hexenal). Su extrema labilidad termodinámica exige que jamás sea sometido a calentamiento convectivo directo, reservándose para emulsiones en frío, gelatinizaciones lípido-gelificadas y espumas presurizadas bajo gas inerte.

Ácido linoleico poliinsaturado

Ácido linoleico poliinsaturado

/ˈasiðo linoˈlejko polijnssatuˈɾaðo/

El ácido linoleico es un ácido graso poliinsaturado dienoico esencial de la serie omega-6 (n-6), con fórmula molecular C18H32O2 (MW 280.44 g/mol) y estructura canónica sistemática cis,cis-9,12-octadecadienoico. Presenta dos dobles enlaces cis interrumpidos por un grupo metileno (-CH=CH-CH2-CH=CH-), una configuración conformacional que introduce una doble torsión espacial acentuada en la cola hidrofóbica, impidiendo el ordenamiento reticular y deprimiendo su punto de fusión hasta los -5 °C, lo que lo mantiene en un estado intensamente móvil y no viscoso a temperaturas de refrigeración convencionales (4 °C). En el ecosistema culinario contemporáneo, se encuentra predominantemente en aceites de semillas (girasol, pepita de uva, sésamo, maíz) y frutos secos, proporcionando una sensación bucal extraordinariamente liviana, libre de empalago ceroso y dotada de una rápida velocidad de liberación retronasal para volátiles aromáticos florales o herbáceos. Sin embargo, su arquitectura química impone una extrema susceptibilidad a la cascada de autooxidación radicalaria, condicionando las vidas útiles organolépticas, la técnica de deshidratación por liofilización y los límites térmicos de salteados y frituras técnicas.

Ácido oleico monoinsaturado

Ácido oleico monoinsaturado

/ˈasiðo oˈlejko monojnssatuˈɾaðo/

El ácido oleico es un ácido graso monoinsaturado de cadena larga (18 átomos de carbono) con fórmula molecular C18H34O2 (MW 282.46 g/mol) caracterizado por la presencia de un único doble enlace en configuración cis ubicado en el carbono 9 contando desde el grupo carboxilo (Δ9, o n-9/omega-9). Esta estereoquímica rígida genera un ángulo de flexión estructural intrínseco de aproximadamente 120° en la cadena hidrocarbonada, interrumpiendo el empaquetamiento denso intermolecular y confiriéndole un estado líquido fluido a temperatura ambiente con un punto de fusión bajo comprendido entre 13 °C y 14 °C. En gastronomía de alto nivel, el ácido oleico es la columna vertebral fisicoquímica del aceite de oliva virgen extra (AOVE) y grasas de frutos secos nobles, gobernando las propiedades de lubricidad palatal, la tensión interfacial en emulsiones de tipo agua en aceite (W/O) o aceite en agua (O/W), y actuando como solvente no polar preferente para la captura por maceración de terpenos, aldehídos aromáticos y carotenoides liposolubles. Su equilibrio entre fluidez y resistencia a la oxidación térmica lo convierte en el estándar de oro para cocciones grasas de precisión y texturas untuosas aterciopeladas.

Actividad de agua

Actividad de agua

/aktiβiˈðað de ˈaɣwa/

Magnitud termodinámica adimensional que cuantifica el estado energético del agua dentro de una matriz alimentaria y su grado de interacción con los solutos y macromoléculas del medio, definida matemáticamente como la relación entre la presión parcial de vapor de agua en equilibrio sobre el alimento (p) y la presión de vapor de saturación del agua destilada pura (p₀) a la misma temperatura absoluta: a_w = p / p₀ = %HR_equilibrio / 100. En la ciencia gastronómica de precisión, la actividad de agua dicta el umbral termodinámico para la reactividad química y biológica: no representa el contenido porcentual de humedad total, sino el potencial químico del solvente disponible para facilitar la proliferación microbiológica (bacterias patógenas detenidas a a_w < 0.85, hongos xerófilos a a_w < 0.60), la cinética de la reacción de Maillard (máxima entre 0.65 y 0.75 a_w), la hidrólisis lipídica enzimática y el estado textural vítreo o gomoso de sistemas deshidratados o liofilizados.

Alginato de sodio

Alginato de sodio

[al.xiˈna.to ðe ˈso.ðjo]

El alginato de sodio es un polisacárido lineal aniónico no ramificado extraído primordialmente de la pared celular y matriz intercelular de macroalgas pardas (clase Phaeophyceae, géneros como Laminaria, Macrocystis y Lessonia). Su arquitectura macromolecular está compuesta por bloques copoliméricos variables de residuos de ácido β-D-manurónico (bloques M, conformación 4C1 con enlace β-1,4) y ácido α-L-gulurónico (bloques G, conformación 1C4 con enlace α-1,4). Su peso molecular estándar se distribuye entre 32 y 250 kDa según la especie botánica y el método extractivo. En la gastronomía de vanguardia molecular, constituye el catalizador primordial de las técnicas de 'esferificación directa' e 'inversa'. El polímero, completamente soluble y estable en matrices acuosas no cálcicas en un rango de pH entre 4.5 y 10.0, reacciona instantáneamente ante la presencia de cationes divalentes para generar hidrocoloides elásticos termoestables (que no se funden ni siquiera a 100 °C), permitiendo confinar líquidos sápidos en membranas dérmicas ultrafinas de gel que explotan mecánicamente al contacto con la bóveda palatina.

Almidón resistente tipo 1

Almidón resistente tipo 1

[al.miˈðon re.sisˈten.te ˈu.no]

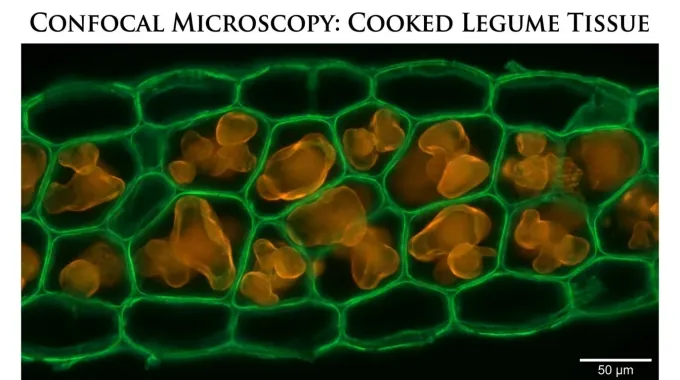
Fracción del almidón total que resulta fisiológicamente indigestible en el intestino delgado humano debido a un confinamiento biofísico dentro de matrices celulares vegetales intactas, paredes celulares ricas en celulosa, hemicelulosa y lignina, o cápsulas de matriz proteica densa que actúan como barreras de difusión molecular insuperables para la α-amilasa pancreática. En el contexto culinario y nutricional de vanguardia, el RS1 preserva la integridad estructural celular del ingrediente (legumbres cocidas enteras, cereales integrales, granos partidos), aportando una textura masticable no cohesiva ('al dente' celular), nula gomosidad libre en boca, un índice glucémico marcadamente reducido y un aporte selectivo de sustrato fermentable para la microbiota colónica con generación de ácidos grasos de cadena corta (acetato, propionato y butirato).