Actomiocina muscular

(Complejo proteico F-actina / Miosina II)

Transcripción IPA: [ak.to.mjoˈsi.na mus.kuˈlaɾ]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

El complejo de actomiocina es una estructura cuaternaria macromolecular formada por la unión estequiométrica irreversible o dependiente de nucleótidos entre los filamentos poliméricos de F-actina (filamento delgado, ~42 kDa por monómero globular de G-actina) y las cabezas globulares S1 de la miosina II (filamento grueso, ~520 kDa por hexámero). En el músculo vivo o pre-rigor, esta unión es transitoria y modulada cíclicamente por la hidrólisis de ATP catalizada por la actividad ATPasa dependiente de Ca²⁺/Mg²⁺. Sin embargo, en el músculo post-mortem privado de fosfatos de alta energía, las cabezas de miosina quedan bloqueadas mecánicamente en los dominios de unión de la actina en un ángulo oblicuo de 45°, generando puentes cruzados rígidos e insolubles.

En la ciencia de los alimentos y la gastronomía de vanguardia, el estado conformacional de la actomiocina dicta de forma primordial la capacidad de retención de agua (CRA), la elasticidad tisular y el comportamiento reológico de las matrices cárnicas. La disociación controlada del complejo mediante fuerza iónica elevada (I > 0,6 mol/L de NaCl o sales de fosfato polivalentes) solubiliza la miosina filamentosa, permitiendo su despliegue térmico posterior a 45–65 °C. Este proceso da lugar a redes de gel viscoelásticas continuas tridimensionales que estabilizan grasas emulsionadas en farsas finas y garantizan texturas suculentas libres de sinéresis.

II. Etimología e Historia Gastronómica

La identificación bioquímica del complejo actomiocina representa uno de los hitos fundacionales de la biofísica del siglo XX, liderado por el premio Nobel Albert Szent-Györgyi y sus colaboradores Ilona Banga y F. B. Straub en la Universidad de Szeged entre 1941 y 1943. Szent-Györgyi demostró que la adición de ATP a 'hilos' artificiales extruidos de extractos musculares purificados provocaba su contracción física inmediata, acuñando el término 'miosina B' para diferenciar este complejo heteroproteico de la miosina monomérica pura soluble en frío.

Durante la segunda mitad del siglo XX, investigadores como Setsuro Ebashi y Ralph G. Cassens determinaron los mecanismos de regulación alostérica mediados por troponina y tropomiosina. En las últimas décadas, figuras de la gastronomía física y molecular como Harold McGee, Hervé This y Ferran Adrià tradujeron estos principios al control ultrapreciso de texturas cárnicas: desde el curado iónico sub-desnaturalizante hasta la gelificación anisotrópica por cocción al vacío sous-vide a baja temperatura (54–58 °C), donde la cinética de gelificación de la actomiocina es manipulada sin llegar a la termocontracción drástica del colágeno perimisial.


III. Ciencia Culinaria y Bioquímica

A nivel molecular, el ensamblaje de la actomiocina implica la interacción electrostática y de par hidrofóbico entre el bucle 2 rico en lisina de la cabeza subfragmento 1 (S1) de la miosina pesada y el extremo N-terminal cargado negativamente del monómero de actina (Asp1-Glu4). En ausencia de nucleósido trifosfato (concentraciones de ATP post-mortem < 0,1 mmol/kg), el estado de rigor se consolida termodinámicamente con un cambio de energía libre de Gibbs fuertemente exergónico (ΔG°' ≈ -35 a -45 kJ/mol por mol de cabezas S1 fijadas), fijando la arquitectura sarcomérica en una conformación compactada y mecánicamente inerte que reduce el volumen del espaciado miofibrilar interfilamentoso de 42 nm a menos de 32 nm.

La solubilización extractiva de este complejo requiere apantallar las atracciones electrostáticas mediante el incremento de la fuerza iónica (I = ½ ∑ ci zi²). A valores de I entre 0,4 y 0,8 mol/L de cloruro sódico, complementados con pirofosfato tetrasódico (Na₄P₂O₇, pH 6,2–6,8), el ion pirofosfato mimetiza el espinazo polifosfato del ATP ocupando el sitio catalítico de la miosina, induciendo la apertura de la hendidura del dominio catalítico de 50 kDa y la liberación de la actina con un valor de constante de disociación Kd en el rango micromolar. La miosina libre sufre desnaturalización térmica selectiva: sus cabezas se desdoblan e interactúan hidrofóbicamente a 48–55 °C, mientras que la cola helicoidal en espiral (coiled-coil) se asocia mediante puentes disulfuro covalentes intercatenarios a 60–65 °C, formando un gel elastoplástico tridimensional capaz de atrapar dipolos de agua capilar.

IV. Protocolo de Ejecución y Precisión Técnica

Para inducir la extracción analítica y gelificación de la actomiocina en elaboraciones de charcutería molecular o geles puros de emulsión cárnica (surimi ultra-purificado, farsas finas al estilo paté de foie y crustáceos): calibrar un pH-metro multipunto a 3 puntos (pH 4,00, 7,00 y 10,00 con compensación de temperatura ATC a 4,0 °C). Pesar tejido muscular magro pre-rigor o madurado en criofiltración y homogeneizar a 4 °C en un procesador de alto cizallamiento con 1,8% p/p de NaCl técnico y 0,35% p/p de tripolifosfato sódico (STPP), controlando que la fuerza iónica final alcance I = 0,65 mol/L y el pH se estabilice en 6,25 ± 0,05.

Someter la masa homogeneizada a desgasificación completa bajo vacío absoluto (-0,98 bar) en centrífuga refrigerada o envasadora de campana para eliminar microburbujas de aire que actuarían como puntos de nucleación de ruptura del gel. Embutir o moldear la matriz e introducir en un baño termostático con agitación y recirculación de alta estabilidad (±0,05 °C). Aplicar un escalón térmico programado: pre-incubación a 45,0 °C durante 20 minutos para permitir el ensamblaje coloidal helicoidal ordenado ('setting' o suwari), seguido de una rampa térmica a 0,5 °C/min hasta alcanzar una temperatura de núcleo estricta de 62,5 °C, manteniendo dicha meseta durante 12 minutos antes de enfriar por choque térmico en salmuera a 0 °C.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Incrementar la temperatura por encima de los 12 °C durante el proceso de cizallamiento o picado, lo que desencadena una desnaturalización hidrofóbica prematura de las cabezas de miosina antes de la alineación reticular, provocando una sinéresis coloidal masiva y la rotura de la emulsión cárnica.

Error #2

Emplear concentraciones salinas inferiores a 0,3 mol/L (NaCl < 1,2% p/p) en la disolución de extracción, lo que impide alcanzar la fuerza iónica crítica para disociar los filamentos del sarcómero, dejando el complejo de actomiocina agregado e insoluble con pérdida de más del 40% de la capacidad de retención de agua (CRA).

Error #3

Someter la matriz a un calentamiento hiperacelerado (>5 °C/min directo a 80 °C) en el baño termostático, induciendo una coagulación globular desordenada en lugar de una red fibrilar reticulada continua, derivando en una textura granujienta, arenosa y exudativa en boca.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Alginato de sodio

Alginato de sodio

[al.xiˈna.to ðe ˈso.ðjo]

El alginato de sodio es un polisacárido lineal aniónico no ramificado extraído primordialmente de la pared celular y matriz intercelular de macroalgas pardas (clase Phaeophyceae, géneros como Laminaria, Macrocystis y Lessonia). Su arquitectura macromolecular está compuesta por bloques copoliméricos variables de residuos de ácido β-D-manurónico (bloques M, conformación 4C1 con enlace β-1,4) y ácido α-L-gulurónico (bloques G, conformación 1C4 con enlace α-1,4). Su peso molecular estándar se distribuye entre 32 y 250 kDa según la especie botánica y el método extractivo. En la gastronomía de vanguardia molecular, constituye el catalizador primordial de las técnicas de 'esferificación directa' e 'inversa'. El polímero, completamente soluble y estable en matrices acuosas no cálcicas en un rango de pH entre 4.5 y 10.0, reacciona instantáneamente ante la presencia de cationes divalentes para generar hidrocoloides elásticos termoestables (que no se funden ni siquiera a 100 °C), permitiendo confinar líquidos sápidos en membranas dérmicas ultrafinas de gel que explotan mecánicamente al contacto con la bóveda palatina.

Almidón resistente tipo 1

Almidón resistente tipo 1

[al.miˈðon re.sisˈten.te ˈu.no]

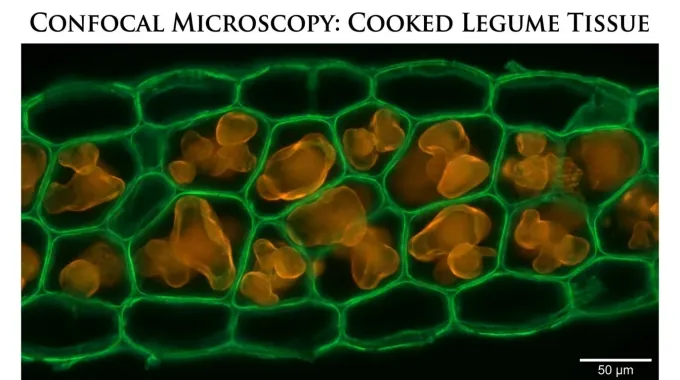
Fracción del almidón total que resulta fisiológicamente indigestible en el intestino delgado humano debido a un confinamiento biofísico dentro de matrices celulares vegetales intactas, paredes celulares ricas en celulosa, hemicelulosa y lignina, o cápsulas de matriz proteica densa que actúan como barreras de difusión molecular insuperables para la α-amilasa pancreática. En el contexto culinario y nutricional de vanguardia, el RS1 preserva la integridad estructural celular del ingrediente (legumbres cocidas enteras, cereales integrales, granos partidos), aportando una textura masticable no cohesiva ('al dente' celular), nula gomosidad libre en boca, un índice glucémico marcadamente reducido y un aporte selectivo de sustrato fermentable para la microbiota colónica con generación de ácidos grasos de cadena corta (acetato, propionato y butirato).

Almidón resistente tipo 2

Almidón resistente tipo 2

[al.miˈðon re.sisˈten.te ðos]

Fracción de almidón resistente intrínseco constituida por gránulos de almidón nativos sin gelatinizar cuya conformación molecular semicristalina compacta (predominantemente empaquetamiento polimórfico tipo B y ciertos tipos A de alta densidad) resiste de forma natural el ataque catalítico de la α-amilasa gastrointestinal a temperatura biológica. En gastronomía de precisión y aplicaciones de texturas secas o suspensiones en frío, el RS2 se presenta típicamente en harinas de plátano macho verde (Musa paradisiaca), patata cruda o almidones de maíz con alto contenido en amilosa (high-amylose maize, > 70% amilosa). Su inclusión aporta una sensación sedosa sin incremento de la viscosidad en frío, opacidad controlada, alto efecto saciante, absorción nula de aromas lipofílicos y una preservación total de la birrefringencia (cruz de Malta intacta).

Almidón resistente tipo 3

Almidón resistente tipo 3

[almiˈðon resisˈtente ˈtɾes]

El almidón resistente tipo 3 (RS3) es una fracción polisacárida recalcitrante a la hidrólisis por las alfa-amilasas y glucoamilasas del tracto gastrointestinal superior, conformada mediante la retrogradación térmica inducida de cadenas lineales de amilosa solubilizada. Biofísicamente, el RS3 surge tras someter dispersiones coloidales de almidón gelatinizado a ciclos controlados de enfriamiento y recalentamiento, lo que induce un reordenamiento macromolecular espontáneo impulsado por termodinámica conformacional. Durante este fenómeno, los segmentos homopoliméricos de D-glucopiranosa unidos por enlaces glucosídicos α-(1→4) abandonan su estado amorfo desordenado y se pliegan en dobles hélices levógiras densamente empaquetadas, estabilizadas por extensas redes de puentes de hidrógeno intra e intermoleculares. En la reología y textura de la alta cocina, la generación deliberada de RS3 confiere una microestructura polimérica cristalina semicelular de tipo B (y ocasionalmente tipo A o V), la cual incrementa de forma notable el módulo de almacenamiento elástico (G') y reduce drásticamente la capacidad de retención de agua (WHC). Su formación dirigida en masas panarias de fermentación lenta, geles de tubérculos clarificados y purés de leguminosas previene el colapso textural y la pegajosidad no deseada, confiriendo un mordisco corto, una firmeza vítrea o quebradiza y reduciendo simultáneamente el índice glucémico del alimento a valores inferiores a 45 unidades sin comprometer la palatabilidad sensorial.

Almidón resistente tipo 4

Almidón resistente tipo 4

[almiˈðon resisˈtente ˈkwatɾo]

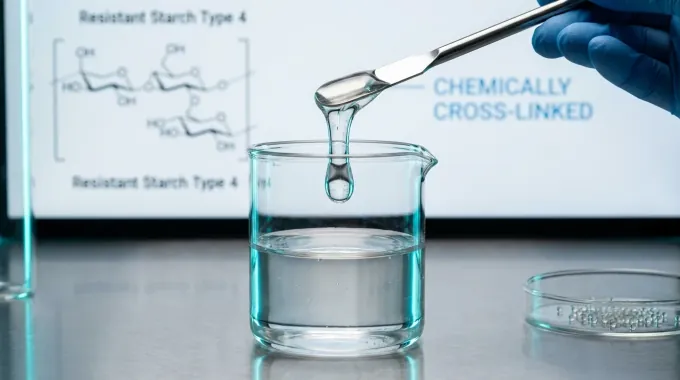
El almidón resistente tipo 4 (RS4) comprende una clase diversa de polímeros de glucosa modificados químicamente mediante enlaces covalentes cruzados (como fosfatos di-almidón, fosfatos mono-almidón, adipatos di-almidón) o sustituciones de grupos funcionales (acetilados, hidroxipropilados, octenilsuccinatos). A diferencia de las formas físicas de resistencia (RS1, RS2, RS3), la insolubilidad e indigestibilidad enzimática del RS4 reside exclusivamente en el impedimento estérico y la alteración electrónica introducida por estos grupos químicos artificiales o condensados. La presencia de puentes fosfodiéster o grupos hidrofóbicos/voluminosos distribuidos a lo largo del esqueleto de glucano impide cinéticamente que el sitio catalítico de las glicosil-hidrolasas endógenas reconozca o acomode el sustrato polimérico. En la gastronomía de vanguardia, el RS4 actúa como un hidrocoloide funcional de alta ingeniería macromolecular. Aporta una viscoelasticidad invariante frente a condiciones extremas de cizalla mecánica, acidez drástica y esterilización térmica, evitando por completo la sinéresis y la degradación textural que sufren los almidones nativos. Proporciona emulsiones hipocalóricas ultralimpias, salsas vítreas transparentes de viscosidad newtoniana modificada y geles térmicamente irreversibles con un acabado brillante, sin enturbiamiento coloidal ni enmascaramiento de los compuestos volátiles del sabor.

Altas presiones hidrostáticas

Altas presiones hidrostáticas

/ˈal.tas pɾeˈsjo.nes i.ðɾosˈta.ti.kas/

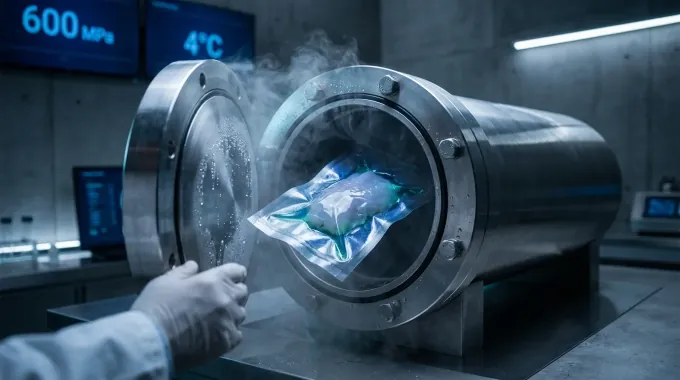
Las Altas Presiones Hidrostáticas (HPP) constituyen una tecnología de procesamiento no térmico que somete a un alimento, previamente envasado en material flexible e impermeable, a presiones isostáticas extremas transmitidas por agua en un rango de 100 a 800 MPa (1.000 a 8.000 bar). El proceso se fundamenta en el Principio de Le Chatelier y el Principio Isostático, los cuales postulan que la presión se transmite de manera instantánea, homogénea e independiente del volumen o la geometría de la muestra, favoreciendo cualquier fenómeno fisicoquímico que vaya acompañado de una reducción de volumen molecular (ΔV negativo). En la alta cocina, las HPP permiten la pasteurización en frío de alimentos termosensibles, preservando intactos los perfiles organolépticos primarios, vitaminas y compuestos aromáticos volátiles que sucumbirían a la pirólisis o cocción tradicional. Modula selectivamente la textura de geles proteicos, abre la concha de bivalvos y crustáceos sin desnaturalizar térmicamente su carne cruda, y genera texturizaciones únicas mediante la desnaturalización conformacional de proteínas miofibrilares y globulares sin formar productos de degradación térmica.