Acumulación de hipoxantina

(C5H4N4O, escisión nucleosidasa y degradación purínica)

Transcripción IPA: [akumulaˈsjon de ipoɣsanˈtina]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

La acumulación de hipoxantina (6-hidroxipurina o 1,7-dihidro-6H-purin-6-ona) constituye el estadio final de la vía autolítica endógena de degradación del pool de adenina en alimentos proteicos frescos, precediendo inmediatamente a la invasión y alteración bacteriana severa. Se origina mediante la escisión hidrolítica irreversible del nucleósido inosina, catalizada tanto por la inosina nucleosidasa (inosinasa endógena) como por la purina nucleósido fosforilasa (PNPasa), liberando la base purínica libre hipoxantina y una molécula de D-ribosa o ribosa-1-fosfato. En alimentos musculares, la concentración libre de hipoxantina se incrementa de forma lineal y predecible con el tiempo posmortem.

Organolépticamente, la hipoxantina ejerce un impacto determinante en la merma de la calidad cárnica e ictícola: presenta un umbral de detección gustativo amargo muy bajo (concentraciones superiores a 1.5 - 2.0 μmol/g inducen notas metálicas, amargas y secas perceptibles en el paladar posterior). Constituye la variable molecular clave en la determinación del 'Valor K' (indicador biomarcador de frescura en pescados formulado en Japón), donde niveles elevados marcan inequívocamente la pérdida irrecuperable de frescura 'sashimi-grade' y la transición hacia el deterioro organoléptico.

II. Etimología e Historia Gastronómica

La hipoxantina fue aislada por primera vez a partir de bazo y sangre de mamíferos en 1850 por el médico y químico alemán Christian Gotthilf Scherer, quien reconoció su relación estequiométrica con la xantina, un metabolito purínico previamente descubierto en cálculos renales. Su rol como marcador post-mortem fue desentrañado sistemáticamente en el Laboratorio Central de Investigaciones Pesqueras de Aberdeen (Torry Research Station) por J. R. Burt y colaboradores en las décadas de 1960 y 1970, estableciendo su biosíntesis como reloj metabólico del músculo piscícola almacenado en frío.

En la gastronomía de vanguardia, el químico alimentario japonés Tsuneo Saito introdujo formalmente el 'Índice de Frescura K' en 1959, calculado como el porcentaje de inosina e hipoxantina respecto al total de nucleótidos purínicos. Este índice revolucionó la comprensión científica de la preparación de pescados en la alta cocina nipona y fue adoptado globalmente por laboratorios culinarios como el Basque Culinary Center y The Fat Duck para controlar con precisión matemática el tiempo de envejecimiento de pescados grasos (como el jurel, Trachurus symmetricus, o el rodaballo, Scophthalmus maximus) antes del brote de amargor.


III. Ciencia Culinaria y Bioquímica

La generación de hipoxantina ocurre a través de dos rutas catalíticas posmortem: una ruta puramente autolítica mediada por la inosina nucleósido hidrolasa (EC 3.2.2.1; Inosina + H₂O → Hipoxantina + D-ribosa) y una ruta fosforolítica mediada por la purina nucleósido fosforilasa (EC 2.4.2.1; Inosina + Pi ⇌ Hipoxantina + Ribosa-1-fosfato). A diferencia de las fosfatasas que descienden en actividad tras la caída del pH, la nucleosidasa mantiene una actividad constante a lo largo de un amplio rango de pH (pH 5.0 - 8.0) y muestra una elevada energía de activación (Ea ≈ 65-80 kJ/mol), lo que explica por qué la síntesis de hipoxantina no se detiene totalmente ni siquiera a temperaturas de sub-congelación no vitrificadas (-2 °C a 0 °C).

Físico-químicamente, la hipoxantina es una base purínica débilmente soluble en disolventes polares (solubilidad en agua de 0.7 g/L a 20 °C) con dos constantes de disociación ácido-base (pKa1 = 1.98 para la protonación del N7/N9; pKa2 = 8.94 para la desprotonación del grupo hidroxilo del C6). A pH muscular común (pH 5.8 - 6.5), la molécula se encuentra casi enteramente en su forma ceto tautómera neutra no ionizada. La base interacciona con los receptores gustativos del amargor de la familia hTAS2R situados en el epitelio lingual mediante fuerzas de van der Waals y apilamiento π-π (pi-stacking) aromático con residuos de triptófano y fenilalanina, bloqueando concurrentemente la sinergia de los receptores T1R1/T1R3.

IV. Protocolo de Ejecución y Precisión Técnica

Para prevenir la acumulación perjudicial de hipoxantina en pescado destinado a degustación cruda o maduración de alta precisión, implementar una monitorización de cabina basada en el cálculo analítico del Valor K: K (%) = [([Inosina] + [Hipoxantina]) / ([ATP] + [ADP] + [AMP] + [IMP] + [Inosina] + [Hipoxantina])] × 100. En pescados de categoría sashimi excepcional, el valor K debe mantenerse rígidamente por debajo del 20%; valores superiores al 40% denotan concentración inaceptable de hipoxantina y ameritan exclusión del servicio en crudo.

Protocolo de determinación enzimática rápida de hipoxantina en laboratorio culinario: tomar 0.5 g de músculo blanco dorsal libre de grasa superficial, homogenizar con 2 mL de tampón fosfato de potasio 0.1 M (pH 7.50). Tratar la alícuota con enzima xantina oxidasa (EC 1.17.3.2) inmovilizada o en solución a 25 °C en un baño termostático con agitación, la cual convierte la hipoxantina en ácido úrico y peróxido de hidrógeno (H₂O₂). Cuantificar la producción de H₂O₂ mediante reflectómetro digital con tiras reactivas enzimáticas calibradas (rango 0 - 50 mg/L) o espectrofotómetro midiendo el incremento de absorbancia a 290 nm (aparición de urato). Regular las cámaras de maduración con atmósfera modificada (95% N₂, 5% CO₂) y temperatura estricta de 0.0 °C ± 0.1 °C para deprimir la constante cinética de acumulación por debajo de 0.05 μmol/g/día.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Sobrepasar el tiempo cinético óptimo de maduración (over-aging) en pescados de carne blanca como la merluza o el bacalao, acumulando concentraciones de hipoxantina > 2.5 μmol/g, lo que confiere un retrogusto amargo metálico astringente irrecuperable que destruye la delicadeza organoléptica del plato.

Error #2

Mantener el pescado en contacto directo con hielo derretido estancado y contaminado (cross-contamination bacteriana), propiciando que bacterias psicrotróficas del género Pseudomonas y Shewanella secreten nucleosidasas exógenas que disparan exponencialmente la producción de hipoxantina y posterior putrefacción.

Error #3

Descongelar piezas de pescado a temperatura ambiente (20 °C - 25 °C), produciendo un salto de velocidad en la inosina nucleosidasa que sintetiza hipoxantina hasta 15 veces más rápido que a 2 °C, degradando el tejido antes del tratamiento culinario.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Alginato de sodio

Alginato de sodio

[al.xiˈna.to ðe ˈso.ðjo]

El alginato de sodio es un polisacárido lineal aniónico no ramificado extraído primordialmente de la pared celular y matriz intercelular de macroalgas pardas (clase Phaeophyceae, géneros como Laminaria, Macrocystis y Lessonia). Su arquitectura macromolecular está compuesta por bloques copoliméricos variables de residuos de ácido β-D-manurónico (bloques M, conformación 4C1 con enlace β-1,4) y ácido α-L-gulurónico (bloques G, conformación 1C4 con enlace α-1,4). Su peso molecular estándar se distribuye entre 32 y 250 kDa según la especie botánica y el método extractivo. En la gastronomía de vanguardia molecular, constituye el catalizador primordial de las técnicas de 'esferificación directa' e 'inversa'. El polímero, completamente soluble y estable en matrices acuosas no cálcicas en un rango de pH entre 4.5 y 10.0, reacciona instantáneamente ante la presencia de cationes divalentes para generar hidrocoloides elásticos termoestables (que no se funden ni siquiera a 100 °C), permitiendo confinar líquidos sápidos en membranas dérmicas ultrafinas de gel que explotan mecánicamente al contacto con la bóveda palatina.

Almidón resistente tipo 1

Almidón resistente tipo 1

[al.miˈðon re.sisˈten.te ˈu.no]

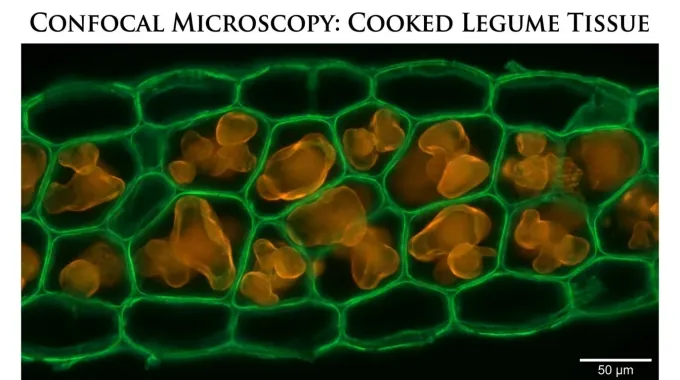
Fracción del almidón total que resulta fisiológicamente indigestible en el intestino delgado humano debido a un confinamiento biofísico dentro de matrices celulares vegetales intactas, paredes celulares ricas en celulosa, hemicelulosa y lignina, o cápsulas de matriz proteica densa que actúan como barreras de difusión molecular insuperables para la α-amilasa pancreática. En el contexto culinario y nutricional de vanguardia, el RS1 preserva la integridad estructural celular del ingrediente (legumbres cocidas enteras, cereales integrales, granos partidos), aportando una textura masticable no cohesiva ('al dente' celular), nula gomosidad libre en boca, un índice glucémico marcadamente reducido y un aporte selectivo de sustrato fermentable para la microbiota colónica con generación de ácidos grasos de cadena corta (acetato, propionato y butirato).

Almidón resistente tipo 2

Almidón resistente tipo 2

[al.miˈðon re.sisˈten.te ðos]

Fracción de almidón resistente intrínseco constituida por gránulos de almidón nativos sin gelatinizar cuya conformación molecular semicristalina compacta (predominantemente empaquetamiento polimórfico tipo B y ciertos tipos A de alta densidad) resiste de forma natural el ataque catalítico de la α-amilasa gastrointestinal a temperatura biológica. En gastronomía de precisión y aplicaciones de texturas secas o suspensiones en frío, el RS2 se presenta típicamente en harinas de plátano macho verde (Musa paradisiaca), patata cruda o almidones de maíz con alto contenido en amilosa (high-amylose maize, > 70% amilosa). Su inclusión aporta una sensación sedosa sin incremento de la viscosidad en frío, opacidad controlada, alto efecto saciante, absorción nula de aromas lipofílicos y una preservación total de la birrefringencia (cruz de Malta intacta).

Almidón resistente tipo 3

Almidón resistente tipo 3

[almiˈðon resisˈtente ˈtɾes]

El almidón resistente tipo 3 (RS3) es una fracción polisacárida recalcitrante a la hidrólisis por las alfa-amilasas y glucoamilasas del tracto gastrointestinal superior, conformada mediante la retrogradación térmica inducida de cadenas lineales de amilosa solubilizada. Biofísicamente, el RS3 surge tras someter dispersiones coloidales de almidón gelatinizado a ciclos controlados de enfriamiento y recalentamiento, lo que induce un reordenamiento macromolecular espontáneo impulsado por termodinámica conformacional. Durante este fenómeno, los segmentos homopoliméricos de D-glucopiranosa unidos por enlaces glucosídicos α-(1→4) abandonan su estado amorfo desordenado y se pliegan en dobles hélices levógiras densamente empaquetadas, estabilizadas por extensas redes de puentes de hidrógeno intra e intermoleculares. En la reología y textura de la alta cocina, la generación deliberada de RS3 confiere una microestructura polimérica cristalina semicelular de tipo B (y ocasionalmente tipo A o V), la cual incrementa de forma notable el módulo de almacenamiento elástico (G') y reduce drásticamente la capacidad de retención de agua (WHC). Su formación dirigida en masas panarias de fermentación lenta, geles de tubérculos clarificados y purés de leguminosas previene el colapso textural y la pegajosidad no deseada, confiriendo un mordisco corto, una firmeza vítrea o quebradiza y reduciendo simultáneamente el índice glucémico del alimento a valores inferiores a 45 unidades sin comprometer la palatabilidad sensorial.

Almidón resistente tipo 4

Almidón resistente tipo 4

[almiˈðon resisˈtente ˈkwatɾo]

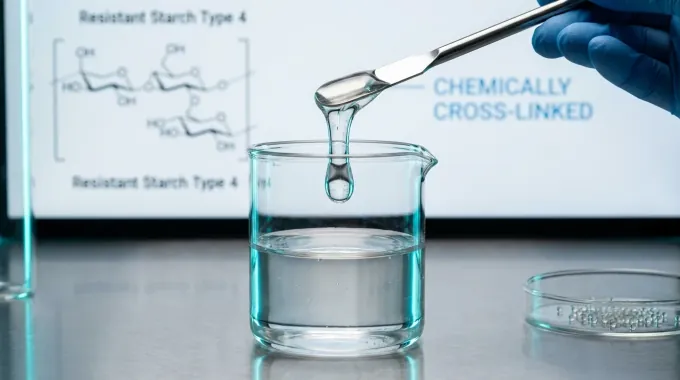
El almidón resistente tipo 4 (RS4) comprende una clase diversa de polímeros de glucosa modificados químicamente mediante enlaces covalentes cruzados (como fosfatos di-almidón, fosfatos mono-almidón, adipatos di-almidón) o sustituciones de grupos funcionales (acetilados, hidroxipropilados, octenilsuccinatos). A diferencia de las formas físicas de resistencia (RS1, RS2, RS3), la insolubilidad e indigestibilidad enzimática del RS4 reside exclusivamente en el impedimento estérico y la alteración electrónica introducida por estos grupos químicos artificiales o condensados. La presencia de puentes fosfodiéster o grupos hidrofóbicos/voluminosos distribuidos a lo largo del esqueleto de glucano impide cinéticamente que el sitio catalítico de las glicosil-hidrolasas endógenas reconozca o acomode el sustrato polimérico. En la gastronomía de vanguardia, el RS4 actúa como un hidrocoloide funcional de alta ingeniería macromolecular. Aporta una viscoelasticidad invariante frente a condiciones extremas de cizalla mecánica, acidez drástica y esterilización térmica, evitando por completo la sinéresis y la degradación textural que sufren los almidones nativos. Proporciona emulsiones hipocalóricas ultralimpias, salsas vítreas transparentes de viscosidad newtoniana modificada y geles térmicamente irreversibles con un acabado brillante, sin enturbiamiento coloidal ni enmascaramiento de los compuestos volátiles del sabor.

Altas presiones hidrostáticas

Altas presiones hidrostáticas

/ˈal.tas pɾeˈsjo.nes i.ðɾosˈta.ti.kas/

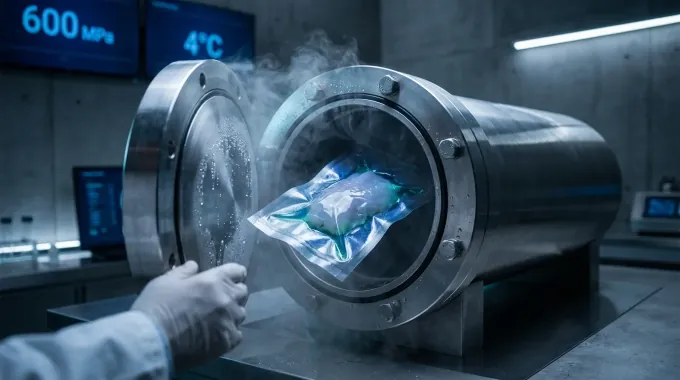
Las Altas Presiones Hidrostáticas (HPP) constituyen una tecnología de procesamiento no térmico que somete a un alimento, previamente envasado en material flexible e impermeable, a presiones isostáticas extremas transmitidas por agua en un rango de 100 a 800 MPa (1.000 a 8.000 bar). El proceso se fundamenta en el Principio de Le Chatelier y el Principio Isostático, los cuales postulan que la presión se transmite de manera instantánea, homogénea e independiente del volumen o la geometría de la muestra, favoreciendo cualquier fenómeno fisicoquímico que vaya acompañado de una reducción de volumen molecular (ΔV negativo). En la alta cocina, las HPP permiten la pasteurización en frío de alimentos termosensibles, preservando intactos los perfiles organolépticos primarios, vitaminas y compuestos aromáticos volátiles que sucumbirían a la pirólisis o cocción tradicional. Modula selectivamente la textura de geles proteicos, abre la concha de bivalvos y crustáceos sin desnaturalizar térmicamente su carne cruda, y genera texturizaciones únicas mediante la desnaturalización conformacional de proteínas miofibrilares y globulares sin formar productos de degradación térmica.