Crioprotección conformacional de proteínas alimentarias

Transcripción IPA: [kɾjopɾotekˈsjon de pɾoteˈinas]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

La crioprotección de proteínas es la estabilización termodinámica y cinética de la conformación nativa de macromoléculas polipeptídicas sometidas a congelación y vitrificación criogénica, previendo la desnaturalización inducida por frío, la disociación de subunidades oligoméricas y la agregación irreversible por puentes disulfuro o interacciones hidrofóbicas. Este fenómeno se consigue mediante la adición de solutos osmoprotectores de bajo y medio peso molecular (e.g. sacarosa, sorbitol, trehalosa, polidextrosa, glicerol o péptidos anticongelantes) que alteran las propiedades termodinámicas del agua solvente.

En la pastelería técnica, heladería científica y alta cocina de conservación criogénica (liofilización de caldos ultra-concentrados, estabilización de colágeno, surimi y emulsiones de yema de huevo pasteurizada congelada), la crioprotección previene el colapso coloidal, evita la sinéresis masiva tras la descongelación, preserva la elasticidad reológica y elude la formación de texturas granulosas o gomosidades anormales derivadas de la cristalización del hielo.

II. Etimología e Historia Gastronómica

El descubrimiento de la crioprotección biológica moderna data de 1949, cuando los científicos británicos Christopher Polge, Audrey Smith y Alan Parkes identificaron accidentalmente las propiedades crioprotectoras del glicerol sobre espermatozoides aviares y mamíferos. Durante las décadas de 1960 y 1970, Matsumoto y colaboradores en Japón aplicaron estos principios a las proteínas del músculo de pescado congelado, descubriendo que mezclas equimolares de sacarosa y sorbitol frenaban la agregación de la miosina por meses a -20 °C.

En las primeras décadas del siglo XXI, la transición de este conocimiento hacia la alta cocina fue encabezada por laboratorios de I+D como el Basque Culinary Center y el FoodLab de Modernist Cuisine. La sustitución de crioprotectores tradicionales de excesivo dulzor por polioles específicos y disacáridos como la trehalosa permitió a los chefs de vanguardia congelar emulsiones complejas, purés de clorofila y proteínas miofibrilares de mariscos selectos sin modificar de forma invasiva el perfil sensorial dulce ni alterar el punto vítreo (Tg') del alimento.
III. Ciencia Culinaria y Bioquímica

El mecanismo fisicoquímico primordial de los crioprotectores se explica a través de la teoría de la exclusión preferencial formulada por Timasheff. Los crioprotectores (solutos cosmotrópicos) presentan una mayor afinidad química por el agua en masa que por la superficie de la proteína, lo que crea una zona de depleción de soluto en la capa de hidratación proteica (preferential exclusion). Termodinámicamente, esto eleva el potencial químico (μ) tanto del estado nativo como del estado desnaturalizado de la proteína, pero el incremento en el estado desnaturalizado es notablemente superior debido a su mayor área superficial accesible al disolvente (ΔASA). En consecuencia, la energía libre de desnaturalización (ΔGdenat = ΔGdesdoblado - ΔGnativo) se vuelve sustancialmente más positiva, favoreciendo cinéticamente y termodinámicamente el repliegue nativo compactado.

Asimismo, durante la congelación, el agua pura se congela primero expulsando los solutos a una fase no congelada altamente concentrada (efecto de crioconcentración de solutos), lo cual desestabiliza el entorno iónico y promueve puentes cruzados intermoleculares. Los crioprotectores limitan la movilidad molecular incrementando la viscosidad de la matriz líquida residual y elevando la temperatura de transición vítrea del estado concentrado en congelación (Tg', que para la trehalosa se ubica en -29.5 °C y para la sacarosa en -32 °C). Al vitrificar la matriz residual por debajo de Tg', la constante de difusión se reduce en órdenes de magnitud (D -> 0 m^2/s), frenando la cinética de desnaturalización conforme a la ecuación de Williams-Landel-Ferry (WLF) y evitando la formación de cristales de hielo mecánicamente lesivos de tamaño superior a 5-10 micrómetros.

IV. Protocolo de Ejecución y Precisión Técnica

Para crioproteger una base proteica susceptible de desnaturalización (e.g. yema de huevo líquida o pasta muscular desuerada para suero marino liofilizado), se incorpora una mezcla binaria sinérgica de D-sorbitol y trehalosa en una relación 1:1, a una concentración analítica total del 8.0% p/p (40 g de sorbitol y 40 g de trehalosa por cada 1000 g de matriz). La disolución se realiza a 10 °C aplicando un sonicador de vástago de titanio operando a 24 kHz y una amplitud del 40% durante 3 minutos continuos para asegurar la solubilización completa sin generación de estrés térmico ni cavitación destructora de enlaces peptídicos.

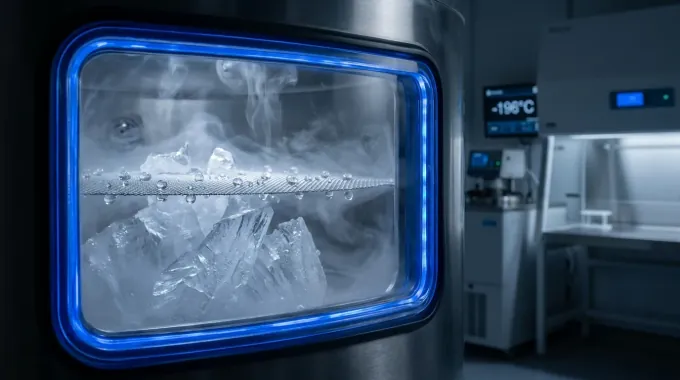
La suspensión estabilizada se somete a lectura en refractómetro digital expresando sólidos disueltos totales (°Brix exactos) y se analiza su aw mediante higrómetro de punto de rocío calibrado (fijando un valor de aw previo a la congelación de 0.940 ± 0.005). La matriz se dosifica en capas finas de 4 mm de espesor sobre bandejas de acero criogénico y se ingresa en un abatidor criogénico de nitrógeno líquido o túnel de ultracongelación operando a -80.0 °C con una velocidad de enfriamiento superior a 10 °C/min hasta alcanzar una temperatura de núcleo inferior a -35 °C (por debajo de la Tg' calculada), asegurando que el tamaño medio de los microcristales de hielo intracelulares se mantenga < 5 μm, previniendo la sinéresis en descongelación controlada a 3.0 °C.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Utilizar exclusivamente sacarosa a altas concentraciones (> 12% p/p) en elaboraciones saladas; además de descompensar organolépticamente la matriz con un dulzor parasitario inaceptable, la sacarosa puede cristalizar a bajas temperaturas perdiendo su acción cosmotrópica y dejando a las proteínas desprotegidas.

Error #2

Congelar la matriz proteica lentamente en cámaras domésticas o comerciales estándar (-18 °C con convección pasiva); la velocidad de congelación ultra-lenta (< 0.1 °C/min) magnifica el fenómeno de crioconcentración salina y crecimiento de megacristales de hielo dendríticos que perforan la estructura proteica y generan desnaturalización mecánica.

Error #3

Descongelar la matriz a temperatura ambiente (> 20 °C); el paso prolongado a través de la zona de máxima velocidad de recristalización (-5 °C a -1 °C) provoca el colapso de la red vítrea amorfa metaestable, aglomerando las proteínas desestabilizadas y produciendo un puré totalmente escindido en una fase sólida gomosa y un exudado acuoso libre.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Cristales sub-alfa

Cristales sub-alfa

[kɾisˈta.les subˈal.fa]

Los cristales sub-alfa (sub-α, también referidos en la literatura técnica como formas γ o fases intermedias de súper-enfriamiento criogénico) constituyen un estado estructural altamente metaestable y transitorio en matrices de triacilgliceroles. Esta fase ocurre exclusivamente cuando una grasa fundida es expuesta a velocidades de enfriamiento hiper-rápidas (superiores a 50-100 °C/min) hasta temperaturas criogénicas inferiores a -20 °C o cercanas a la temperatura de transición vítrea (Tg). Estructuralmente, presentan un empaquetamiento lamelar con cadenas hidrocarbonadas prácticamente congeladas en un estado de desorden pseudo-amorfo. En la gastronomía hipermodernista y el tratamiento criogénico de lípidos (mediante inmersión directa en nitrógeno líquido a -196 °C o el uso de rotores criogénicos como el Pacojet en combinación con sales refrigerantes), la fase sub-alfa representa la frontera física donde el crecimiento cristalino es anulado cinéticamente por la viscosidad extrema del medio. Los alimentos grasos procesados en estas condiciones presentan una ausencia casi total de sensaciones granulosas al paladar, fundiendo en boca con una rapidez termodinámica instantánea debido al minúsculo tamaño de los dominios ordenados (escala manométrica < 100 nm).

Cristalización vítrea

Cristalización vítrea

[kɾis.ta.li.saˈsjon ˈbi.tɾe.a]

La vitrificación o estado vítreo es un estado termodinámico metaestable de no-equilibrio en el cual un fluido superenfriado o una solución de carbohidratos concentrada experimenta un incremento exponencial de su viscosidad cinética (>10¹² Pa·s), inmovilizando el desorden molecular traslacional sin adoptar una red periódica cristalina tridimensional. A diferencia de la cristalización estricta (que implica nucleación y crecimiento ordenado con calor latente de fusión), la transición vítrea ocurre a una temperatura crítica (Tg) dependiente de la plasticidad del solvente, consolidando una fase sólida amorfa isotrópica, transparente y frágil. En la alta gastronomía molecular, el control de este estado permite la génesis de vidrios de azúcar, encapsulaciones bioactivas, crujientes liofilizados y caramelos de alta densidad sin recristalización indeseada. Cuando el sistema supera la temperatura de transición vítrea (T > Tg) por absorción higroscópica de vapor de agua (aumento de la actividad de agua, aw) o por elevación térmica, la viscosidad cae abruptamente según la cinética de Williams-Landel-Ferry (WLF), activando la movilidad rotacional del agua plastificante, la pegajosidad interfacial (stickiness) y la eventual cristalización catastrófica del soluto que destruye la textura vítrea característica.

Cruz de Malta

Cruz de Malta

[ˈkɾuθ ðe ˈmal.ta]

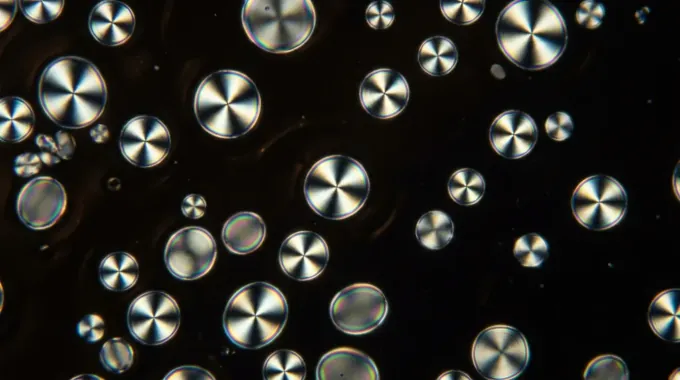
Patrón óptico interferencial de extinción cruciforme característico observado mediante microscopía óptica de polarización (PLM) en gránulos nativos de almidón intactos. Este fenómeno es el resultado directo de la birrefringencia positiva intrínseca exhibida por el empaquetamiento radial y altamente ordenado de las dobles hélices de amilopectina, las cuales configuran una estructura semicristalina cuasi-esférica con anisotropía óptica pronunciada. En gastronomía molecular y ciencia de los alimentos, la desaparición progresiva o súbita de la cruz de Malta define con absoluta exactitud analítica el rango de temperatura de gelatinización (T_o, T_p, T_c, típicamente entre 55 °C y 75 °C según el origen botánico). Su pérdida irreversible marca el colapso del orden mesomorfo y la transición de fase vítrea-cristalina a un gel amorfo viscoelástico, alterando radicalmente la viscosidad cinemática, la transparencia coloidal y la textura final del sistema alimentario.

Enlaces de hidrógeno

Enlaces de hidrógeno

[enˈlaθes ðe iˈðɾoχeno]

El enlace de hidrógeno es una interacción electrostática atractiva dipolo-dipolo no covalente que se establece entre un átomo de hidrógeno unido covalentemente a un elemento altamente electronegativo (típicamente oxígeno, nitrógeno o flúor) y un par de electrones solitarios de otro átomo electronegativo adyacente. En sistemas bioalimentarios acuosos, presenta una longitud de enlace promedio de 0.17 a 0.20 nm y una energía de disociación que oscila entre 8 y 40 kJ/mol (2 a 10 kcal/mol), situándose en una magnitud intermedia que otorga una extrema plasticidad dinámica a las macromoléculas nativas. En gastronomía de vanguardia y física de polímeros culinarios, los enlaces de hidrógeno rigen la viscoelasticidad de geles termorreversibles (como agar-agar, gelatina y almidón retrogradado), la hidratación macromolecular y la estabilización estructural secundaria de proteínas (hélices alfa y láminas beta). Su rotura cooperativa por calor por encima de transiciones conformacionales específicas conduce a la fluidificación térmica de matrices coloidales, mientras que su reconstitución durante el atemperado o enfriamiento controla fenómenos críticos como la gificación elástica, la viscosidad intrínseca y la retención neta de agua libre en hidrogeles.

Enzimas proteolíticas endógenas

Enzimas proteolíticas endógenas

[enˈzimas pɾoteoˈlitikas enˈdoxenas]

Las enzimas proteolíticas endógenas son biocatalizadores peptídicos preexistentes en el citosol y orgánulos del tejido muscular animal, cuya función post-mortem primaria es la hidrólisis selectiva de uniones peptídicas específicas en proteínas miofibrilares y del citoesqueleto. Las dos familias enzimáticas dominantes en la maduración y terneza cárnica son las calpaínas (cisteín-proteasas neutras dependientes de iones Ca²⁺ citoplasmáticos) y las catepsinas (hidrolasas ácidas de origen lisosomal, destacando las catepsinas B, D, H y L). En gastronomía de precisión y maduración avanzada (dry aging / wet aging), estas enzimas dirigen la proteólisis del citoesqueleto celular degradando titina, nebulina, desmina y troponina T, debilitando la rigidez sarcomérica sin romper masivamente las cadenas gruesas de miosina ni la actina. Esta acción controlada produce un ablandamiento textural exponencial, incrementa el agua retenida por capilaridad y libera pequeños péptidos sapídicos y aminoácidos libres (como glutamato y arginina) inductores de sabor umami de alta intensidad.

Escala Scoville

Escala Scoville

[esˈka.la skoˈβil / ˈskoʊ.vɪl jiːts]

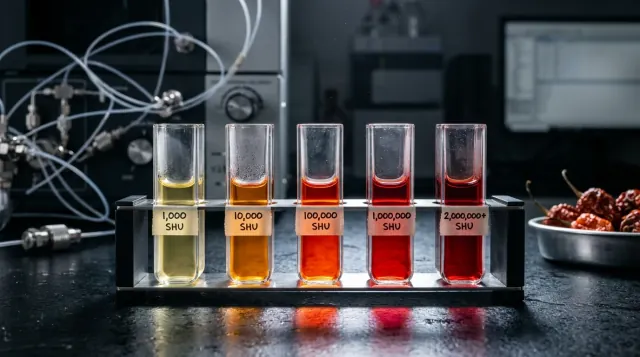
La Escala Scoville es un sistema psicofísico y cinético-analítico de medición empírica diseñado para cuantificar el grado de pungencia o quimioestesis producido por los capsaicinoides presentes en especies del género Capsicum y sus derivados gastronómicos. Expresada formalmente en Unidades de Calor Scoville (SHU, por sus siglas en inglés), esta magnitud representaba originalmente el factor de dilución volumétrica másico límite necesario para que una solución azucarada en agua desactivara por completo la percepción de picante en las terminaciones nociceptivas de un panel entrenado de cinco catadores humanos expertos (umbral psicofísico absoluto). En la ciencia de los alimentos contemporánea, la escala ha dejado de ser una prueba hedónico-sensorial subjetiva para transformarse en una medida normalizada vinculada directamente a la concentración ponderal de alcaloides determinada por cromatografía líquida de alta resolución (HPLC / ASTA Método 21.0). En esta conversión termodinámica y analítica rigurosa, 1 parte por millón (1 mg/kg) de capsaicinoides totales deshidratados equivale a aproximadamente 16 Unidades Scoville (o 16.1 SHU según el factor canónico para capsaicina pura a 1.6 × 10⁷ SHU), constituyendo el parámetro fundamental de ingeniería de menús para predecir la saturación de los canales TRPV1 trigeminales y balancear la intensidad de maceraciones, destilados y salsas de alta gastronomía.