Curva de muerte

(Curva de supervivencia microbiana / Microbial survivor curve)

Transcripción IPA: /ˈkuɾβa de ˈmweɾte/

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

La curva de muerte, o curva de supervivencia microbiana, es la representación gráfica y analítica de la cinética de inactivación biológica de una población de microorganismos o esporas sombreada frente al tiempo de exposición a un agente letal físico o químico (principalmente energía térmica isotérmica). Típicamente trazada en coordenadas semilogarítmicas —con el logaritmo decimal del número de supervivientes (log₁₀ N) en el eje de ordenadas y el tiempo lineal (t) en el eje de abscisas— describe la tasa de decaimiento poblacional conforme las macromoléculas celulares sucumben a la energía cinética impartida.

En la ciencia de los alimentos y la alta cocina, la interpretación rigurosa de esta curva es indispensable para identificar anomalías cinéticas respecto al modelo lineal de primer orden tradicional. Fenómenos no lineales como hombros térmicos iniciales (shoulder) o colas de supervivencia asintóticas (tailing) alertan al científico culinario sobre subpoblaciones termorresistentes, agregaciones macromoleculares protectoras o fenómenos de adaptación celular al choque térmico que pueden comprometer tanto la seguridad alimentaria como la homogeneidad textural y la vida útil en almacenamiento en frío.

II. Etimología e Historia Gastronómica

Los primeros estudios formales sobre las curvas de supervivencia microbiana fueron realizados a comienzos del siglo XX por investigadores como Harriette Chick (quien formuló en 1908 la Ley de Chick para la desinfección) y Herbert Geer, demostrando que la muerte bacteriana responde a una cinética análoga a una reacción química bimolecular o monomolecular. Posteriormente, en 1920, Bigelow y Esty establecieron el trazado sistemático de las Curvas de Tiempo de Muerte Térmica (TDT) para la industria conservera.

Con la llegada de la biofísica computacional a la gastronomía experimental, el análisis clásico lineal dio paso al modelado no lineal avanzado propuesto por Peleg, Cole y Mafart (como el modelo de Weibull). Este enfoque cinético contemporáneo permite a chefs científicos predecir con precisión matemática la respuesta biológica en matrices culinarias complejas (como marinadas ácidas, salmueras de baja actividad de agua y emulsiones lípido-acuosas con alto contenido proteico).

III. Ciencia Culinaria y Bioquímica

Biofísicamente, el modelo idealizado de la curva de muerte asume una cinética de inactivación descrita por dN/dt = -k · N, lo que da lugar a una línea recta semilogarítmica: log₁₀(N) = log₁₀(N₀) - (t / D). Sin embargo, en las matrices culinarias reales abundan las desviaciones no lineales cinéticas debido a la polidispersidad fenotípica de las poblaciones bacterianas y a heterogeneidades reológicas. La existencia de un hombro inicial (shoulder) en la curva refleja un mecanismo biofísico multitarget (múltiples impactos energéticos requeridos antes de la lisis celular) o la activación fisiológica de proteínas de choque térmico (Hsp60, Hsp70) que reparan activamente las estructuras proteicas desnaturalizadas hasta que la capacidad energética metabólica del organismo colapsa.

Por otro lado, la aparición de una cola (tailing) indica la persistencia de una subpoblación hiperresistente, la formación de agregados celulares donde las bacterias externas actúan como sacrificio termomecánico protegiendo el núcleo, o la adsorción del microorganismo a micelas lipídicas hidrófobas que amortiguan la transferencia entálpica. Para modelar con fidelidad biofísica estas curvas no lineales, la ciencia moderna emplea la distribución acumulativa de Weibull modificada: log₁₀(N / N₀) = -b · t^n, donde b es la tasa intrínseca de inactivación y n es el parámetro de forma (siendo n < 1 representativo de curvas cóncavas hacia arriba con cola de supervivencia, n > 1 para curvas cóncavas hacia abajo con hombro cinético, y n = 1 para la cinética exponencial clásica de Bigelow).

IV. Protocolo de Ejecución y Precisión Técnica

Para construir y caracterizar una curva de muerte en un laboratorio de microbiología aplicada a la gastronomía, se formula un inóculo estandarizado con densidad celular controlada (ej. 10⁷ UFC/mL de una cepa subrogada no patógena como Listeria innocua o Escherichia coli K12). La cepa se inocula en la matriz culinaria a testear (como un fondo oscuro clarificado o una salsa emulsionada) tras calibrar estrictamente su pH con pH-metro analítico y su actividad de agua con higrómetro de punto de rocío.

Se transfieren microvolúmenes (ej. 100 μL) a tubos de PCR o capilares de micro-volumen de alta conductividad, sometiéndolos a tratamiento isotérmico en un termociclador con bloque Peltier calibrado a la temperatura de ensayo (con precisión de ± 0.1 °C). A intervalos regulares de tiempo (mínimo 8 puntos de muestreo en el tiempo t), los tubos se retiran y se enfrían bruscamente a 0 °C. Se realizan diluciones seriadas decimales en solución salina estéril y se siembran en placas con agar selectivo usando un sembrador en espiral automatizado. Tras incubar 48 horas a 37 °C, se cuantifican las UFC, se calcula log₁₀(N(t)) y se ajustan los datos experimentales mediante software estadístico a los modelos lineal de Bigelow y no lineal de Weibull, determinando los parámetros cinéticos para diseñar las curvas seguras de cocción.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Diseñar un proceso de pasteurización asumiendo una cinética estrictamente lineal (n = 1) cuando la curva de muerte presenta un fenómeno de hombro (shoulder) prolongado, lo que genera una sub-letalidad crítica al inicio del tratamiento térmico.

Error #2

Desestimar la presencia de colas (tailing) al final de la curva de muerte provocadas por la aglomeración bacteriana o atrapamiento lipídico, creyendo erróneamente que duplicar el tiempo de cocción eliminará las fracciones residuales persistentes.

Error #3

Ignorar el historial fisiológico del inóculo o ingrediente crudo (por ejemplo, adaptaciones previas a estrés ácido en marinadas o estrés osmótico en salmueras), lo cual altera la curvatura cinética y vuelve ineficaces los parámetros térmicos teóricos de la literatura científica.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Enlaces de hidrógeno

Enlaces de hidrógeno

[enˈlaθes ðe iˈðɾoχeno]

El enlace de hidrógeno es una interacción electrostática atractiva dipolo-dipolo no covalente que se establece entre un átomo de hidrógeno unido covalentemente a un elemento altamente electronegativo (típicamente oxígeno, nitrógeno o flúor) y un par de electrones solitarios de otro átomo electronegativo adyacente. En sistemas bioalimentarios acuosos, presenta una longitud de enlace promedio de 0.17 a 0.20 nm y una energía de disociación que oscila entre 8 y 40 kJ/mol (2 a 10 kcal/mol), situándose en una magnitud intermedia que otorga una extrema plasticidad dinámica a las macromoléculas nativas. En gastronomía de vanguardia y física de polímeros culinarios, los enlaces de hidrógeno rigen la viscoelasticidad de geles termorreversibles (como agar-agar, gelatina y almidón retrogradado), la hidratación macromolecular y la estabilización estructural secundaria de proteínas (hélices alfa y láminas beta). Su rotura cooperativa por calor por encima de transiciones conformacionales específicas conduce a la fluidificación térmica de matrices coloidales, mientras que su reconstitución durante el atemperado o enfriamiento controla fenómenos críticos como la gificación elástica, la viscosidad intrínseca y la retención neta de agua libre en hidrogeles.

Enzimas proteolíticas endógenas

Enzimas proteolíticas endógenas

[enˈzimas pɾoteoˈlitikas enˈdoxenas]

Las enzimas proteolíticas endógenas son biocatalizadores peptídicos preexistentes en el citosol y orgánulos del tejido muscular animal, cuya función post-mortem primaria es la hidrólisis selectiva de uniones peptídicas específicas en proteínas miofibrilares y del citoesqueleto. Las dos familias enzimáticas dominantes en la maduración y terneza cárnica son las calpaínas (cisteín-proteasas neutras dependientes de iones Ca²⁺ citoplasmáticos) y las catepsinas (hidrolasas ácidas de origen lisosomal, destacando las catepsinas B, D, H y L). En gastronomía de precisión y maduración avanzada (dry aging / wet aging), estas enzimas dirigen la proteólisis del citoesqueleto celular degradando titina, nebulina, desmina y troponina T, debilitando la rigidez sarcomérica sin romper masivamente las cadenas gruesas de miosina ni la actina. Esta acción controlada produce un ablandamiento textural exponencial, incrementa el agua retenida por capilaridad y libera pequeños péptidos sapídicos y aminoácidos libres (como glutamato y arginina) inductores de sabor umami de alta intensidad.

Escala Scoville

Escala Scoville

[esˈka.la skoˈβil / ˈskoʊ.vɪl jiːts]

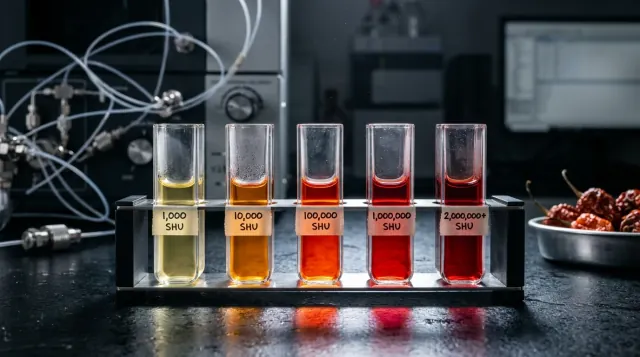
La Escala Scoville es un sistema psicofísico y cinético-analítico de medición empírica diseñado para cuantificar el grado de pungencia o quimioestesis producido por los capsaicinoides presentes en especies del género Capsicum y sus derivados gastronómicos. Expresada formalmente en Unidades de Calor Scoville (SHU, por sus siglas en inglés), esta magnitud representaba originalmente el factor de dilución volumétrica másico límite necesario para que una solución azucarada en agua desactivara por completo la percepción de picante en las terminaciones nociceptivas de un panel entrenado de cinco catadores humanos expertos (umbral psicofísico absoluto). En la ciencia de los alimentos contemporánea, la escala ha dejado de ser una prueba hedónico-sensorial subjetiva para transformarse en una medida normalizada vinculada directamente a la concentración ponderal de alcaloides determinada por cromatografía líquida de alta resolución (HPLC / ASTA Método 21.0). En esta conversión termodinámica y analítica rigurosa, 1 parte por millón (1 mg/kg) de capsaicinoides totales deshidratados equivale a aproximadamente 16 Unidades Scoville (o 16.1 SHU según el factor canónico para capsaicina pura a 1.6 × 10⁷ SHU), constituyendo el parámetro fundamental de ingeniería de menús para predecir la saturación de los canales TRPV1 trigeminales y balancear la intensidad de maceraciones, destilados y salsas de alta gastronomía.

Esferificación inversa

Esferificación inversa

[es.fe.ɾi.fi.kaˈsjon imˈbeɾ.sa]

La esferificación inversa es una técnica de estructuración hidrocoloide hidrófila basada en la reticulación iónica interfacial difusional de cadenas aniónicas de alginato de sodio inducida por cationes divalentes de calcio (Ca²⁺) procedentes del núcleo alimentario. A diferencia de la variante directa, el gradiente electroquímico de difusión iónica migra desde el interior del núcleo hidrosoluble hacia el baño circundante de polisacáridos, deteniendo inmediatamente la polimerización y el engrosamiento de la membrana tras el lavado con agua pura. Termodinámicamente, este fenómeno genera una membrana viscoelástica semipermeable caracterizada por un módulo elástico de almacenamiento (G') predominante sobre el módulo de pérdida (G''), con espesores controlables de entre 80 y 350 μm. Organolépticamente, preserva una matriz interna totalmente líquida, estable térmicamente y exenta de gelificación progresiva a lo largo del almacenamiento, garantizando una liberación súbita y homogénea de precursores de aroma y solutos sapídicos bajo compresión lingual.

Fuerza Iónica

Fuerza Iónica

/ˈfweɾ.sa ˈjo.ni.ka/

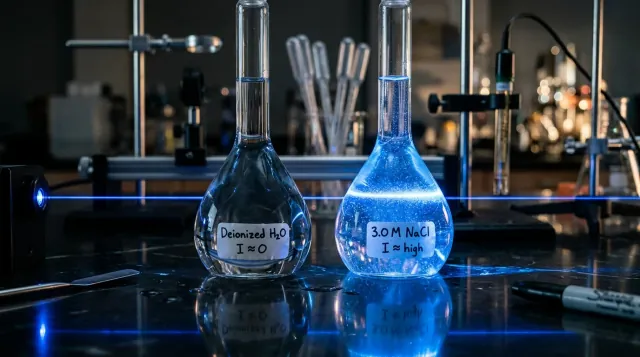
La fuerza iónica (simbolizada habitualmente por la letra I o µ) es una magnitud fisicoquímica fundamental que cuantifica la concentración total y la intensidad del campo electrostático generado por todos los iones disueltos en una disolución acuosa. A diferencia de la molaridad simple, esta propiedad matemática pondera el cuadrado de la valencia de cada especie iónica presente, determinando el espesor de la doble capa electrostática (longitud de Debye) que apantalla las cargas eléctricas superficiales de coloides, lípidos y macromoléculas biológicas. En la arquitectura culinaria de alta precisión, la fuerza iónica es la variable reguladora que dicta la transición entre la solubilización y la agregación de proteínas (mecanismos de salting-in y salting-out), la dispersión y floculación de emulsiones lipídicas, la capacidad de hidratación y esponjamiento del tejido muscular cárnico y la retención de agua en geles de polisacáridos aniónicos como el alginato o el gellan. Una alteración milimolar en la fuerza iónica puede transformar una crema sedosa en una emulsión desestabilizada o un gel quebradizo en una dispersión coloidal líquida.

Fuerzas de Van der Waals

Fuerzas de Van der Waals

[ˈfweɾ.sas ˈban deɾ ˈbals]

Las fuerzas de Van der Waals son interacciones electrodinámicas atractivas o repulsivas de corto a medio alcance que se producen entre átomos, moléculas neutras y agregados supramoleculares. Se subdividen mecanísticamente en tres componentes dipolares fundamentales: las fuerzas de orientación dipolo permanente-dipolo permanente (Keesom), las fuerzas de inducción dipolo permanente-dipolo inducido (Debye) y las ubicuas fuerzas electrodinámicas de dispersión por fluctuación cuántica de dipolos instantáneos (London). En gastronomía de alto nivel y física del alimento, las fuerzas atractivas de Van der Waals representan la fuerza motriz termodinámica universal que impulsa a las gotas lipídicas, micelas coloidales y proteínas desnaturalizadas a unirse físicamente. Mientras que las fuerzas electrostáticas y estéricas operan como la barrera protectora de repulsión, las fuerzas de Van der Waals actúan constantemente favoreciendo la agregación, cristalización de grasas, gelificación hidrofóbica y compactación estructural de purés finos y espumas, definiendo la consistencia plástica de mantequillas artesanales y la cremosidad de chocolates templados.