Desnaturalización de actina

(Actin thermal unfolding / Desplegamiento de G/F-actina)

Transcripción IPA: [des.na.tu.ɾa.li.zaˈsjon de akˈti.na]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

La desnaturalización de la actina es la transición de fase conformacional termotrópica en la cual la F-actina (polímero globular de ~42 kDa por monómero) pierde irreversiblemente su estructura cuaternaria y terciaria, desenrollando sus hélices alfa y exponiendo residuos hidrofóbicos al solvente.

En gastronomía molecular, esta transición endotérmica ocurre en un rango térmico crítico (66 °C a 73 °C) y marca el límite exacto entre una textura cárnica tierna y jugosa y una estructura seca, astringente y fibrosa, debido al encogimiento longitudinal severo de los sarcómeros y a la extrusión forzada de agua intracelular (sinéresis inducida por calor).

II. Etimología e Historia Gastronómica

La actina fue purificada y nombrada en Szeged (Hungría) en 1942 por Brunó Ferenc Straub en el laboratorio de Albert Szent-Györgyi, descubriendo su interacción activadora sobre la miosina en presencia de trifosfato de adenosina (ATP). Los estudios termodinámicos de su desplegamiento conformacional avanzaron en la década de 1970 mediante calorimetría diferencial de barrido (DSC) con pioneros como David J. Wright y Peter Wilding.

En el ámbito de la cocina al vacío (sous-vide) y de precisión, Harold McGee en 'On Food and Cooking' (1984/2004) y el Dr. Baldwin popularizaron la diferenciación entre la desnaturalización de la miosina (~50-55 °C) y la de la actina (~66-70 °C), transformando radicalmente la cocción cárnica de vanguardia al establecer que las cocciones de larga duración a baja temperatura jamás debían alcanzar la meseta de la actina.

III. Ciencia Culinaria y Bioquímica

A nivel molecular, la actina globular monomérica (G-actina) y su polímero helicoidal bicatenario (F-actina) se estabilizan mediante la coordinación de cationes bivalentes (Mg²⁺ o Ca²⁺) y una molécula de nucleótido fijada en su hendidura central. Durante el tratamiento térmico, la energía térmica supera la energía de activación (ΔG‡) del desplegamiento a una temperatura de pico de desnaturalización (Tm) que oscila entre 66,0 °C y 71,5 °C, cuantificada con DSC mediante un pico endotérmico con entalpía ΔH de aproximadamente 14 a 18 J/g de proteína.

Este colapso conformacional induce la agregación no covalente inmediata mediada por el colapso hidrofóbico de residuos de triptófano, tirosina y fenilalanina, acompañado por la formación de enlaces disulfuro intermoleculares cruzados si existen restos de cisteína accesibles. La contracción física resultante genera una tensión axial en el sarcómero de hasta 15 N/cm2, lo que compacta el citoesqueleto y expulsa mecánicamente hasta un 30% del volumen acuoso intramiofibrilar hacia el espacio extracelular.

IV. Protocolo de Ejecución y Precisión Técnica

Para prevenir la desnaturalización de la actina en cortes nobles de vacuno (longissimus dorsi) y preservar la turgencia sarcoplásmica: acondicionar las porciones (grosor exacto de 35,0 mm medido con calibre digital) e introducir en bolsas termosellables de poliamida/polietileno, aplicando vacío absoluto al 99,8% en máquina de campana.

Sumergir en un baño termostático circulador sous-vide programado para mantener 55,5 ± 0,1 °C continuos. Insertar una sonda termopar de aguja hipodérmica tipo K conectada a un datalogger de alta velocidad calibrado por punto de hielo. Mantener la cocción térmica hasta que el núcleo alcance estrictamente 54,0 °C y mantener por 45 minutos (pasteurización frente a Listeria monocytogenes según tablas D/z), evitando en todo momento que la temperatura interna supere los 64,0 °C.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Permitir que el núcleo térmico del tejido supere los 68 °C, provocando el colapso elástico de la actina, lo que causa un encogimiento longitudinal de hasta el 20% del sarcómero y exudación de jugos con sequedad irreversible.

Error #2

Emplear sondas de penetración no calibradas con tolerancias de ±2 °C en zonas de transición crítica (64-67 °C), induciendo variaciones heterogéneas entre gel suave y filamentos endurecidos en el mismo corte.

Error #3

Rechauffer o regenerar cortes previamente cocinados al vacío mediante fuentes radiantes infrarrojas descontroladas, lo que desnaturaliza la actina periférica formando un anillo gris desecado no elástico.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Enlaces de hidrógeno

Enlaces de hidrógeno

[enˈlaθes ðe iˈðɾoχeno]

El enlace de hidrógeno es una interacción electrostática atractiva dipolo-dipolo no covalente que se establece entre un átomo de hidrógeno unido covalentemente a un elemento altamente electronegativo (típicamente oxígeno, nitrógeno o flúor) y un par de electrones solitarios de otro átomo electronegativo adyacente. En sistemas bioalimentarios acuosos, presenta una longitud de enlace promedio de 0.17 a 0.20 nm y una energía de disociación que oscila entre 8 y 40 kJ/mol (2 a 10 kcal/mol), situándose en una magnitud intermedia que otorga una extrema plasticidad dinámica a las macromoléculas nativas. En gastronomía de vanguardia y física de polímeros culinarios, los enlaces de hidrógeno rigen la viscoelasticidad de geles termorreversibles (como agar-agar, gelatina y almidón retrogradado), la hidratación macromolecular y la estabilización estructural secundaria de proteínas (hélices alfa y láminas beta). Su rotura cooperativa por calor por encima de transiciones conformacionales específicas conduce a la fluidificación térmica de matrices coloidales, mientras que su reconstitución durante el atemperado o enfriamiento controla fenómenos críticos como la gificación elástica, la viscosidad intrínseca y la retención neta de agua libre en hidrogeles.

Enzimas proteolíticas endógenas

Enzimas proteolíticas endógenas

[enˈzimas pɾoteoˈlitikas enˈdoxenas]

Las enzimas proteolíticas endógenas son biocatalizadores peptídicos preexistentes en el citosol y orgánulos del tejido muscular animal, cuya función post-mortem primaria es la hidrólisis selectiva de uniones peptídicas específicas en proteínas miofibrilares y del citoesqueleto. Las dos familias enzimáticas dominantes en la maduración y terneza cárnica son las calpaínas (cisteín-proteasas neutras dependientes de iones Ca²⁺ citoplasmáticos) y las catepsinas (hidrolasas ácidas de origen lisosomal, destacando las catepsinas B, D, H y L). En gastronomía de precisión y maduración avanzada (dry aging / wet aging), estas enzimas dirigen la proteólisis del citoesqueleto celular degradando titina, nebulina, desmina y troponina T, debilitando la rigidez sarcomérica sin romper masivamente las cadenas gruesas de miosina ni la actina. Esta acción controlada produce un ablandamiento textural exponencial, incrementa el agua retenida por capilaridad y libera pequeños péptidos sapídicos y aminoácidos libres (como glutamato y arginina) inductores de sabor umami de alta intensidad.

Escala Scoville

Escala Scoville

[esˈka.la skoˈβil / ˈskoʊ.vɪl jiːts]

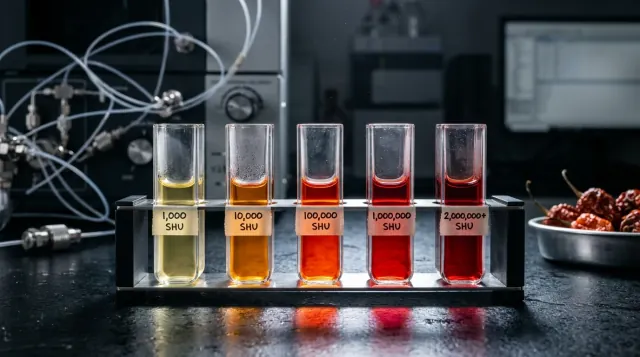
La Escala Scoville es un sistema psicofísico y cinético-analítico de medición empírica diseñado para cuantificar el grado de pungencia o quimioestesis producido por los capsaicinoides presentes en especies del género Capsicum y sus derivados gastronómicos. Expresada formalmente en Unidades de Calor Scoville (SHU, por sus siglas en inglés), esta magnitud representaba originalmente el factor de dilución volumétrica másico límite necesario para que una solución azucarada en agua desactivara por completo la percepción de picante en las terminaciones nociceptivas de un panel entrenado de cinco catadores humanos expertos (umbral psicofísico absoluto). En la ciencia de los alimentos contemporánea, la escala ha dejado de ser una prueba hedónico-sensorial subjetiva para transformarse en una medida normalizada vinculada directamente a la concentración ponderal de alcaloides determinada por cromatografía líquida de alta resolución (HPLC / ASTA Método 21.0). En esta conversión termodinámica y analítica rigurosa, 1 parte por millón (1 mg/kg) de capsaicinoides totales deshidratados equivale a aproximadamente 16 Unidades Scoville (o 16.1 SHU según el factor canónico para capsaicina pura a 1.6 × 10⁷ SHU), constituyendo el parámetro fundamental de ingeniería de menús para predecir la saturación de los canales TRPV1 trigeminales y balancear la intensidad de maceraciones, destilados y salsas de alta gastronomía.

Esferificación inversa

Esferificación inversa

[es.fe.ɾi.fi.kaˈsjon imˈbeɾ.sa]

La esferificación inversa es una técnica de estructuración hidrocoloide hidrófila basada en la reticulación iónica interfacial difusional de cadenas aniónicas de alginato de sodio inducida por cationes divalentes de calcio (Ca²⁺) procedentes del núcleo alimentario. A diferencia de la variante directa, el gradiente electroquímico de difusión iónica migra desde el interior del núcleo hidrosoluble hacia el baño circundante de polisacáridos, deteniendo inmediatamente la polimerización y el engrosamiento de la membrana tras el lavado con agua pura. Termodinámicamente, este fenómeno genera una membrana viscoelástica semipermeable caracterizada por un módulo elástico de almacenamiento (G') predominante sobre el módulo de pérdida (G''), con espesores controlables de entre 80 y 350 μm. Organolépticamente, preserva una matriz interna totalmente líquida, estable térmicamente y exenta de gelificación progresiva a lo largo del almacenamiento, garantizando una liberación súbita y homogénea de precursores de aroma y solutos sapídicos bajo compresión lingual.

Fuerza Iónica

Fuerza Iónica

/ˈfweɾ.sa ˈjo.ni.ka/

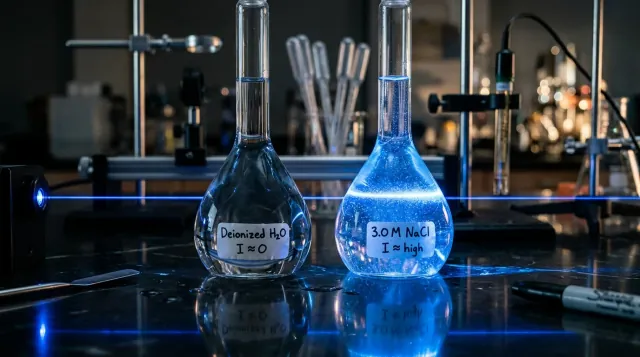
La fuerza iónica (simbolizada habitualmente por la letra I o µ) es una magnitud fisicoquímica fundamental que cuantifica la concentración total y la intensidad del campo electrostático generado por todos los iones disueltos en una disolución acuosa. A diferencia de la molaridad simple, esta propiedad matemática pondera el cuadrado de la valencia de cada especie iónica presente, determinando el espesor de la doble capa electrostática (longitud de Debye) que apantalla las cargas eléctricas superficiales de coloides, lípidos y macromoléculas biológicas. En la arquitectura culinaria de alta precisión, la fuerza iónica es la variable reguladora que dicta la transición entre la solubilización y la agregación de proteínas (mecanismos de salting-in y salting-out), la dispersión y floculación de emulsiones lipídicas, la capacidad de hidratación y esponjamiento del tejido muscular cárnico y la retención de agua en geles de polisacáridos aniónicos como el alginato o el gellan. Una alteración milimolar en la fuerza iónica puede transformar una crema sedosa en una emulsión desestabilizada o un gel quebradizo en una dispersión coloidal líquida.

Fuerzas de Van der Waals

Fuerzas de Van der Waals

[ˈfweɾ.sas ˈban deɾ ˈbals]

Las fuerzas de Van der Waals son interacciones electrodinámicas atractivas o repulsivas de corto a medio alcance que se producen entre átomos, moléculas neutras y agregados supramoleculares. Se subdividen mecanísticamente en tres componentes dipolares fundamentales: las fuerzas de orientación dipolo permanente-dipolo permanente (Keesom), las fuerzas de inducción dipolo permanente-dipolo inducido (Debye) y las ubicuas fuerzas electrodinámicas de dispersión por fluctuación cuántica de dipolos instantáneos (London). En gastronomía de alto nivel y física del alimento, las fuerzas atractivas de Van der Waals representan la fuerza motriz termodinámica universal que impulsa a las gotas lipídicas, micelas coloidales y proteínas desnaturalizadas a unirse físicamente. Mientras que las fuerzas electrostáticas y estéricas operan como la barrera protectora de repulsión, las fuerzas de Van der Waals actúan constantemente favoreciendo la agregación, cristalización de grasas, gelificación hidrofóbica y compactación estructural de purés finos y espumas, definiendo la consistencia plástica de mantequillas artesanales y la cremosidad de chocolates templados.