Dextrinas cíclicas

(Ciclodextrinas, α-, β- y γ-ciclodextrina; cycloamyloses)

Transcripción IPA: [deksˈtɾinas ˈsiklikas]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

Las dextrinas cíclicas, universalmente conocidas como ciclodextrinas, son oligosacáridos no reductores formados por unidades de D-glucopiranosa unidas en una configuración cíclica cerrada mediante enlaces glucosídicos α-(1→4). Producidas biotecnológicamente mediante la degradación enzimática intramolecular del almidón catalizada por la enzima ciclodextrina glucanotransferasa (CGTasa), las tres variantes naturales dominantes son la alfa (α), beta (β) y gamma (γ)-ciclodextrina, compuestas por 6, 7 y 8 unidades de glucosa respectivamente. Su conformación espacial tridimensional adopta una geometría tridimensional toroidal o de cono truncado extremadamente característica, la cual posee una cavidad interna apolar relativamente hidrofóbica y una superficie externa altamente hidrofílica dotada de abundantes grupos hidroxilo.

En la ciencia gastronómica de vanguardia, esta dualidad anfipática convierte a las dextrinas cíclicas en nanocapsuladores moleculares de precisión incomparable. Tienen la capacidad de formar complejos de inclusión hospedador-huésped (host-guest complexes) sin recurrir a enlaces covalentes con moléculas lipófilas volátiles, aceites esenciales, pigmentos hidrófobos y lípidos bioactivos. Esto permite solubilizar sustancias insolubles en agua, estabilizar aromas volátiles termolábiles frente al calor de la cocción, atrapar compuestos de sabor amargo o indeseables (como la trimetilamina en pescados o los flavonoides amargos) y transformar grasas puras líquidas en polvos estables y secos que liberan instantáneamente su fase lipídica al contacto con la saliva.

II. Etimología e Historia Gastronómica

El descubrimiento original data de 1891, cuando Antoine Villiers aisló un metabolito cristalino a partir de un cultivo bacteriano de Bacillus amylobacter que fermentaba almidón de patata, denominándolo 'celulosina'. A principios del siglo XX, entre 1903 y 1911, el químico austriaco Franz Schardinger aisló el microorganismo Bacillus macerans (hoy reclasificado) y purificó de forma reproducible dos sustancias cristalinas distintas, bautizadas como cristales α y β de Schardinger, sentando las bases analíticas del compuesto.

La dilucidación estructural definitiva y el esclarecimiento de su arquitectura toroidal no se completaron hasta los trabajos cristalográficos y espectroscópicos de Freudenberg y French en las décadas de 1930 a 1950. A finales de la década de 2000, los pioneros de la cocina molecular (notablemente Ferran Adrià en elTaller y chefs influenciados por la química alimentaria japonesa, donde el uso de aditivos derivados de ciclodextrinas ya era habitual) adoptaron las ciclodextrinas como una técnica de encapsulación molecular activa: permitieron la creación de aromas volatilizados invisibles, falsas mantequillas en polvo disolubles con textura de nieve y la eliminación selectiva de la astringencia en caldos clarificados de alta complejidad.


III. Ciencia Culinaria y Bioquímica

El mecanismo central biofísico de las dextrinas cíclicas es la formación termodinámicamente favorable de complejos de inclusión supramoleculares no covalentes, caracterizados por una constante de asociación o afinidad aparente (Ka, típicamente de 10² a 10⁵ M⁻¹). La cavidad interior del toroide (cuyo diámetro interno es de 0.47–0.53 nm para α-CD, 0.60–0.65 nm para β-CD y 0.75–0.83 nm para γ-CD; profundidad axial constante de ~0.79 nm) está revestida exclusivamente por los átomos de hidrógeno unidos a C-3 y C-5 y por los enlaces éter glicosídicos, lo que genera un microambiente de baja constante dieléctrica, similar a la del etanol puro. En contraste, los hidroxilos primarios orientados hacia la base menor (C-6) y los secundarios hacia la base mayor (C-2 y C-3) interaccionan masivamente con el agua del solvente mediante enlaces de hidrógeno.

La fuerza motriz que impulsa el atrapamiento de la molécula huésped lipófila es la ganancia entálpica y entrópica neta descrita por la ecuación de energía libre de Gibbs (ΔG° = ΔH° - TΔS° < 0). Inicialmente, la cavidad de la ciclodextrina contiene moléculas de agua 'entalpicamente desfavorecidas', incapaces de satisfacer su potencial total de puentes de hidrógeno debido al confinamiento hidrofóbico. Cuando una molécula orgánica lipófila (por ejemplo, d-limoneno o capsaicina) ingresa en la cavidad, estas moléculas de agua confinadas son expulsadas hacia el seno acuoso masivo (bulk water), aumentando la entropía del sistema (ΔS > 0). Simultáneamente, se establecen interacciones favorables de Van der Waals (dispersión de London) y dipolo-dipolo inducido entre la molécula huésped y el esqueleto de glucosa (ΔH < 0). La estabilidad del complejo es altamente dependiente del pH: si la molécula huésped posee grupos ionizables (como ácidos carboxílicos o aminas aromáticas), el cambio de pH inducirá su ionización, reduciendo drásticamente su hidrofobicidad y expulsándola de la cavidad debido a la repulsión electrostática.

IV. Protocolo de Ejecución y Precisión Técnica

Para nanoencapsular un aroma hidrófobo termolábil (ej. aceite esencial de mandarina verde rico en limoneno y mirceno) y generar un polvo aromatizante termoestable para uso culinario, preparar una solución acuosa saturada de β-ciclodextrina al 10.0% p/v en agua desionizada a 50.0 °C en un baño termostático provisto de agitación magnética continua a 400 rpm, garantizando la disolución molecular total (la solubilidad en agua de la β-CD es de apenas 18.5 g/L a 25 °C, pero aumenta exponencialmente con la temperatura).

Enfriar lentamente la disolución a 35 °C y añadir el aceite esencial a una relación molar estequiométrica precisa de 1:1 respecto a la ciclodextrina (aproximadamente 12.0 g de aceite por cada 100 g de β-CD disuelta). Aplicar agitación mecánica vigorosa a 1,200 rpm durante 4 horas continuas bajo atmósfera inerte de nitrógeno gaseoso para prevenir cualquier peroxidación de terpenos. Someter la dispersión durante 15 minutos a sonicación de baja frecuencia (24 kHz) utilizando una sonda de titanio al 40% de amplitud para fragmentar los agregados cristalinos y maximizar la cinética de encapsulación en equilibrio.

Llevar el sistema a una temperatura de reposo de 4 °C durante 12 horas en oscuridad absoluta para inducir la precipitación cuantitativa del complejo de inclusión blanco-opaco. Recuperar el precipitado mediante centrifugación clínica o de mesa a 4,500 rpm (aproximadamente 3,000 × g) a 4 °C durante 20 minutos. Descartar el sobrenadante acuoso y secar el sedimento sólido en liofilizador de laboratorio bajo un vacío inferior a 0.08 mbar y temperatura de condensador de -50 °C durante 24 horas. El producto resultante es un polvo fluídico ultraestable que retiene más del 92% de los volátiles, verificable cuantitativamente por cromatografía de gases acoplada a espectrometría de masas (GC-MS).

Errores Críticos a Evitar en Cocina y Cata

Error #1

Seleccionar una variante de ciclodextrina con diámetro de cavidad incompatible con el tamaño molecular del ligando (ej. intentar complejar esteroides o triglicéridos voluminosos con α-ciclodextrina, o compuestos aromáticos monocíclicos pequeños con γ-ciclodextrina), lo que impide la estabilización por dispersión de London y produce una retención nula del aroma.

Error #2

Someter los complejos de inclusión a cocciones en medios con alta proporción de etanol (> 20% v/v), ya que las moléculas de etanol actúan como competidores competitivos que desplazan cinéticamente al huésped lipófilo de la cavidad, liberando y evaporando los aceites esenciales de forma prematura e irreversible.

Error #3

Exceder el límite de solubilidad de la β-ciclodextrina durante la fase de secado por calor forzado sin liofilización, induciendo una cristalización masiva de ciclodextrina pura libre no complejizada, originando un polvo con textura terrosa que raspa el epitelio lingual y carece de capacidad de liberación controlada.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Enlaces de hidrógeno

Enlaces de hidrógeno

[enˈlaθes ðe iˈðɾoχeno]

El enlace de hidrógeno es una interacción electrostática atractiva dipolo-dipolo no covalente que se establece entre un átomo de hidrógeno unido covalentemente a un elemento altamente electronegativo (típicamente oxígeno, nitrógeno o flúor) y un par de electrones solitarios de otro átomo electronegativo adyacente. En sistemas bioalimentarios acuosos, presenta una longitud de enlace promedio de 0.17 a 0.20 nm y una energía de disociación que oscila entre 8 y 40 kJ/mol (2 a 10 kcal/mol), situándose en una magnitud intermedia que otorga una extrema plasticidad dinámica a las macromoléculas nativas. En gastronomía de vanguardia y física de polímeros culinarios, los enlaces de hidrógeno rigen la viscoelasticidad de geles termorreversibles (como agar-agar, gelatina y almidón retrogradado), la hidratación macromolecular y la estabilización estructural secundaria de proteínas (hélices alfa y láminas beta). Su rotura cooperativa por calor por encima de transiciones conformacionales específicas conduce a la fluidificación térmica de matrices coloidales, mientras que su reconstitución durante el atemperado o enfriamiento controla fenómenos críticos como la gificación elástica, la viscosidad intrínseca y la retención neta de agua libre en hidrogeles.

Enzimas proteolíticas endógenas

Enzimas proteolíticas endógenas

[enˈzimas pɾoteoˈlitikas enˈdoxenas]

Las enzimas proteolíticas endógenas son biocatalizadores peptídicos preexistentes en el citosol y orgánulos del tejido muscular animal, cuya función post-mortem primaria es la hidrólisis selectiva de uniones peptídicas específicas en proteínas miofibrilares y del citoesqueleto. Las dos familias enzimáticas dominantes en la maduración y terneza cárnica son las calpaínas (cisteín-proteasas neutras dependientes de iones Ca²⁺ citoplasmáticos) y las catepsinas (hidrolasas ácidas de origen lisosomal, destacando las catepsinas B, D, H y L). En gastronomía de precisión y maduración avanzada (dry aging / wet aging), estas enzimas dirigen la proteólisis del citoesqueleto celular degradando titina, nebulina, desmina y troponina T, debilitando la rigidez sarcomérica sin romper masivamente las cadenas gruesas de miosina ni la actina. Esta acción controlada produce un ablandamiento textural exponencial, incrementa el agua retenida por capilaridad y libera pequeños péptidos sapídicos y aminoácidos libres (como glutamato y arginina) inductores de sabor umami de alta intensidad.

Escala Scoville

Escala Scoville

[esˈka.la skoˈβil / ˈskoʊ.vɪl jiːts]

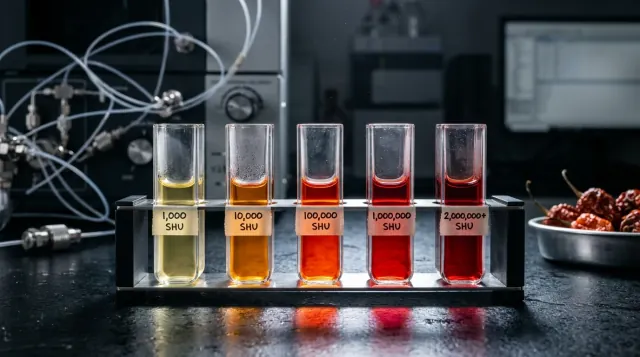
La Escala Scoville es un sistema psicofísico y cinético-analítico de medición empírica diseñado para cuantificar el grado de pungencia o quimioestesis producido por los capsaicinoides presentes en especies del género Capsicum y sus derivados gastronómicos. Expresada formalmente en Unidades de Calor Scoville (SHU, por sus siglas en inglés), esta magnitud representaba originalmente el factor de dilución volumétrica másico límite necesario para que una solución azucarada en agua desactivara por completo la percepción de picante en las terminaciones nociceptivas de un panel entrenado de cinco catadores humanos expertos (umbral psicofísico absoluto). En la ciencia de los alimentos contemporánea, la escala ha dejado de ser una prueba hedónico-sensorial subjetiva para transformarse en una medida normalizada vinculada directamente a la concentración ponderal de alcaloides determinada por cromatografía líquida de alta resolución (HPLC / ASTA Método 21.0). En esta conversión termodinámica y analítica rigurosa, 1 parte por millón (1 mg/kg) de capsaicinoides totales deshidratados equivale a aproximadamente 16 Unidades Scoville (o 16.1 SHU según el factor canónico para capsaicina pura a 1.6 × 10⁷ SHU), constituyendo el parámetro fundamental de ingeniería de menús para predecir la saturación de los canales TRPV1 trigeminales y balancear la intensidad de maceraciones, destilados y salsas de alta gastronomía.

Esferificación inversa

Esferificación inversa

[es.fe.ɾi.fi.kaˈsjon imˈbeɾ.sa]

La esferificación inversa es una técnica de estructuración hidrocoloide hidrófila basada en la reticulación iónica interfacial difusional de cadenas aniónicas de alginato de sodio inducida por cationes divalentes de calcio (Ca²⁺) procedentes del núcleo alimentario. A diferencia de la variante directa, el gradiente electroquímico de difusión iónica migra desde el interior del núcleo hidrosoluble hacia el baño circundante de polisacáridos, deteniendo inmediatamente la polimerización y el engrosamiento de la membrana tras el lavado con agua pura. Termodinámicamente, este fenómeno genera una membrana viscoelástica semipermeable caracterizada por un módulo elástico de almacenamiento (G') predominante sobre el módulo de pérdida (G''), con espesores controlables de entre 80 y 350 μm. Organolépticamente, preserva una matriz interna totalmente líquida, estable térmicamente y exenta de gelificación progresiva a lo largo del almacenamiento, garantizando una liberación súbita y homogénea de precursores de aroma y solutos sapídicos bajo compresión lingual.

Fuerza Iónica

Fuerza Iónica

/ˈfweɾ.sa ˈjo.ni.ka/

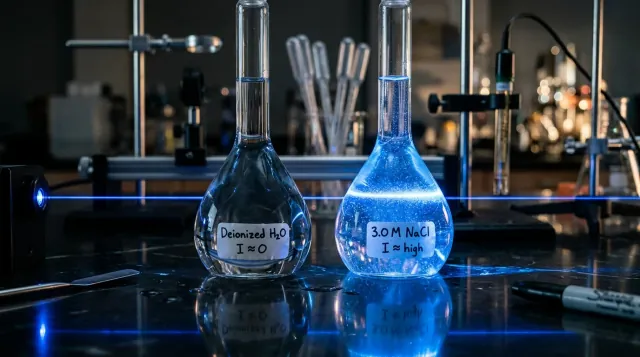
La fuerza iónica (simbolizada habitualmente por la letra I o µ) es una magnitud fisicoquímica fundamental que cuantifica la concentración total y la intensidad del campo electrostático generado por todos los iones disueltos en una disolución acuosa. A diferencia de la molaridad simple, esta propiedad matemática pondera el cuadrado de la valencia de cada especie iónica presente, determinando el espesor de la doble capa electrostática (longitud de Debye) que apantalla las cargas eléctricas superficiales de coloides, lípidos y macromoléculas biológicas. En la arquitectura culinaria de alta precisión, la fuerza iónica es la variable reguladora que dicta la transición entre la solubilización y la agregación de proteínas (mecanismos de salting-in y salting-out), la dispersión y floculación de emulsiones lipídicas, la capacidad de hidratación y esponjamiento del tejido muscular cárnico y la retención de agua en geles de polisacáridos aniónicos como el alginato o el gellan. Una alteración milimolar en la fuerza iónica puede transformar una crema sedosa en una emulsión desestabilizada o un gel quebradizo en una dispersión coloidal líquida.

Fuerzas de Van der Waals

Fuerzas de Van der Waals

[ˈfweɾ.sas ˈban deɾ ˈbals]

Las fuerzas de Van der Waals son interacciones electrodinámicas atractivas o repulsivas de corto a medio alcance que se producen entre átomos, moléculas neutras y agregados supramoleculares. Se subdividen mecanísticamente en tres componentes dipolares fundamentales: las fuerzas de orientación dipolo permanente-dipolo permanente (Keesom), las fuerzas de inducción dipolo permanente-dipolo inducido (Debye) y las ubicuas fuerzas electrodinámicas de dispersión por fluctuación cuántica de dipolos instantáneos (London). En gastronomía de alto nivel y física del alimento, las fuerzas atractivas de Van der Waals representan la fuerza motriz termodinámica universal que impulsa a las gotas lipídicas, micelas coloidales y proteínas desnaturalizadas a unirse físicamente. Mientras que las fuerzas electrostáticas y estéricas operan como la barrera protectora de repulsión, las fuerzas de Van der Waals actúan constantemente favoreciendo la agregación, cristalización de grasas, gelificación hidrofóbica y compactación estructural de purés finos y espumas, definiendo la consistencia plástica de mantequillas artesanales y la cremosidad de chocolates templados.