Peroxidación lipídica

(Cascada de degradación oxidativa de PUFAs)

Transcripción IPA: [peɾoksiðaˈθjon liˈpiðika]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

La peroxidación lipídica es el proceso oxidativo en cadena, mediado fundamentalmente por especies reactivas de oxígeno (ROS) o intermediarios radicalarios, a través del cual los ácidos grasos poliinsaturados (PUFAs) que contienen sistemas dieno conjugados o grupos metileno bis-alílicos (-CH=CH-CH2-CH=CH-) sufren una sustracción homolítica de hidrógeno, dando lugar a hidroperóxidos lipídicos primarios (ROOH) altamente inestables. En matrices biológicas complejas y emulsiones culinarias, esta cascada puede ser desencadenada tanto por mecanismos enzimáticos (vía lipoxigenasas activas) como no enzimáticos (iniciada por radicales hidroxilo •OH, superóxido O₂•- o fotoactivación por singlete de oxígeno 1O2 mediada por clorofilas y riboflavinas).

En la ciencia gastronómica, este fenómeno es el responsable último de la senescencia química irreversible de grasas nobles (aceites de oliva virgen extra monovarietales, mantecas maduradas, grasa intramuscular de buey Wagyu o pescados azules como caballa y sardina). La descomposición secundaria de los hidroperóxidos genera una constelación de aldehídos de bajo umbral de detección olfativa (como (E,Z)-2,4-decadienal, malondialdehído, hexanal y 4-hidroxi-2-nonenal), los cuales destruyen las notas frescas o herbáceas, imprimiendo defectos sensoriales de rancio, barniz, pintura o grasa metálica oxidada (WOF, 'warmed-over flavor'), además de comprometer la salubridad nutricional al reaccionar los compuestos electrofílicos con aminas primarias de proteínas.

II. Etimología e Historia Gastronómica

Aunque la degradación organoléptica de las grasas era conocida empíricamente desde la antigüedad, las bases químicas de la peroxidación se cimentaron en la década de 1940 con los estudios fundamentales de E. H. Farmer, Alastair L. Bolland y Geoffrey Gee en la British Rubber Producers' Research Association, quienes elucidaron el mecanismo de propagación radicalaria en sistemas olefínicos. Más adelante, en los años 60 y 70, bioquímicos como Trevor Slater y Bernard Halliwell extendieron estos descubrimientos a la patología biológica y a la química de alimentos, descubriendo el rol de los iones de metales de transición (reacciones de Fenton y Haber-Weiss).

En la historia moderna de la cocina culinaria de vanguardia, Harold McGee y científicos culinarios como César Vega y Hervé This señalaron la peroxidación lipídica como el talón de Aquiles de la cocción al vacío y de los fondos concentrados mantenidos a temperaturas sub-ebullición (60-80 °C). La comprensión de esta cinética llevó a los laboratorios de innovación gastronómica a desterrar el uso de utensilios ferrosos no estabilizados, implementar envasadoras al vacío con atmósfera de nitrógeno inerte al 99.9% y aplicar antioxidantes hidrofílicos y lipofílicos sinérgicos (tocoferoles, polifenoles de romero micronizado y ácido ascórbico) para preservar intacta la pureza lipídica.
III. Ciencia Culinaria y Bioquímica

El mecanismo químico de la peroxidación lipídica se divide en tres fases cinéticas rigurosas: iniciación, propagación y terminación. En la iniciación, un radical iniciador abstrae un protón del carbono metilénico bis-alílico, cuya energía de disociación de enlace (BDE) es comparativamente muy baja (apenas ~322 kJ/mol en ácido linoleico, frente a ~410 kJ/mol en un alcano estándar), formando un radical lipídico centrado en el carbono (L•): LH + R• -> L• + RH Este radical L• sufre una rápida transposición molecular conformacional formando un dieno conjugado resonante con un pico característico de absorbancia espectrofotométrica en el ultravioleta a 234 nm.

En la etapa de propagación, la reacción con oxígeno triplete (3O2, dirradical fundamental) ocurre a una velocidad casi controlada por difusión (constante de velocidad k ≈ 10^8 - 10^9 M^-1 s^-1), rindiendo un radical peroxilo (LOO•): L• + O₂ -> LOO• LOO• + LH -> LOOH + L• Cada ciclo genera un nuevo radical lipídico (L•), perpetuando la reacción de auto-amplificación. En presencia de trazas de cationes de metales de transición en estado reducido (como Fe²⁺ o Cu+ presentes en la mioglobina cárnica desnaturalizada), los hidroperóxidos lipídicos sufren una escisión homolítica unimolecular descrita por la reacción tipo Fenton: LOOH + Fe²⁺ -> LO• + OH⁻ + Fe³⁺ El radical alcoxilo lipídico (LO•) resultante experimenta una escisión β homolítica (β-scission) irreversible, fracturando el enlace carbono-carbono y liberando compuestos carbonilos volátiles electrofílicos de cadena corta (C6 a C9), tales como hexanal (a partir de PUFAs ω-6) y propanal o (E,E)-2,4-heptadienal (a partir de PUFAs ω-3), causantes del colapso del perfil sensorial.

IV. Protocolo de Ejecución y Precisión Técnica

Protocolo de control, cuantificación analítica y prevención de la peroxidación en aceites infusionados a baja temperatura y grasas nobles: 1. Cuantificar el índice de peróxidos (IP) basal mediante valoración yodométrica analítica según método oficial IUPAC o espectrofotometría de hidroperóxidos (determinación de hidroperóxidos lipídicos a 234 nm en espectrofotómetro UV-Vis de doble haz con celda de cuarzo de 10 mm). Solo procesar lotes con IP < 2.0 meq O₂/kg de lípido. 2. Evaluar el estado de oxidación secundaria analizando el índice de sustancias reactivas al ácido tiobarbitúrico (TBARS), midiendo el complejo malondialdehído-TBA por absorbancia a 532 nm, exigiendo valores inferiores a 0.5 mg MDA/kg en carnes maduradas o patés emulsionados.

Para el protocolo de infusión de lípidos mono y poliinsaturados (ej. aceite de nuez con hierbas aromáticas de alta pureza): 1. Utilizar un reactor de infusión al vacío con camisa de borosilicato. Desgasificar el medio lipídico a -0.95 bar durante 15 minutos para evacuar mecánicamente el oxígeno molecular disuelto en la fase hidrofóbica. 2. Purgar la cámara con flujo laminar de gas inerte (nitrógeno líquido vaporizado o argón ultra-puro al 99.999%) para fijar la presión de oxígeno residual por debajo de 5 ppm en el headspace. 3. Aplicar sonicación mediante sonicador de titanio de alta intensidad (24 kHz, 70% de amplitud) durante un ciclo fraccionado con enfriamiento criogénico continuo, manteniendo la temperatura interna estrictamente a 22.0 °C ± 1.0 °C (evitando la cavitación pirolítica térmica que genera radicales libres hidroxilo •OH). 4. Adicionar de forma sincronizada una mezcla antioxidante sinérgica de extracto supercrítico de Rosmarinus officinalis desodorizado (rico en ácido carnósico y carnosol) a 250 mg/kg junto con d-alfa-tocoferol a 100 mg/kg.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Permitir el contacto de lípidos poliinsaturados con metales pro-oxidantes al utilizar instrumental de cocina, cuchillos de acero al carbono no pasivado o varillas batidoras desgastadas, introduciendo trazas microscópicas de hierro libre (Fe²⁺) o cobre que aceleran la escisión de Fenton de hidroperóxidos en un factor superior a 1000.

Error #2

Infusionar aceites ricos en ácidos grasos insaturados mediante licuadoras de alta velocidad en vasos abiertos a presión atmosférica, lo que incorpora de forma masiva microburbujas de oxígeno atmosférico que, combinadas con el calor de fricción por encima de 45 °C, disparan instantáneamente la fase de iniciación radicalaria.

Error #3

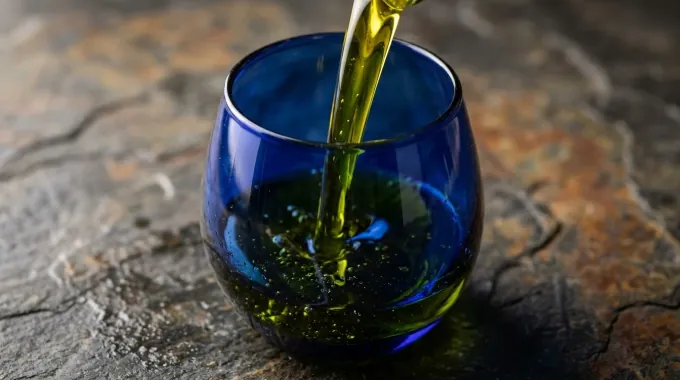
Almacenar aceites vegetales virgen extra de alta clorofila en envases de vidrio transparente expuestos a iluminación LED o solar de sala, provocando foto-oxidación por fotosensibilización de clorofila, que transforma el oxígeno triplete fundamental en oxígeno singlete reactivo (1O2), sorteando la barrera cinética de espín y oxidando el medio sin periodo de inducción.

Malla Viva Editorial MomenFress

Dónde cobra vida «Peroxidación lipídica» en nuestra web

Recetas, bodegas, quesos y queserías D.O.P., tratados científicos y grandes chefs donde este concepto se aplica en la práctica.

13 publicaciones relacionadas
DOP Oli de Mallorca: Los Bancales Centenarios de la Serra de Tramuntana, Variedad Mallorquina y Oleología InsularPatrimonio D.O.P.

DOP Oli de Mallorca: Los Bancales Centenarios de la Serra de Tramuntana, Variedad Mallorquina y Oleología Insular

Tratado enciclopédico de la DOP Oli de Mallorca: terruño de la Serra de Tramuntana, variedad Mallorquina, perfil organoléptico, pliego técnico y cata.

DOP
DOP Aceite Sierra de Cazorla: La Expresión Extrema del Picual de Altura y Royal AutóctonoPatrimonio D.O.P.

DOP Aceite Sierra de Cazorla: La Expresión Extrema del Picual de Altura y Royal Autóctono

Monografía técnica de la DOP Aceite Sierra de Cazorla: edafología de montaña, perfil químico de polifenoles, variedades Picual y Royal, y trazabilidad.

DOP
El Dominio del Shiojime: Ósmosis Superficial, Drenaje Mioglobínico y Concentración Lipídica en Pescados NoblesTrucos de Cocina

El Dominio del Shiojime: Ósmosis Superficial, Drenaje Mioglobínico y Concentración Lipídica en Pescados Nobles

Descubre la ciencia del shiojime: el truco japonés de curación con sal para drenar agua libre, purgar mioglobina y sublimar la textura de pescados nobles.

25 min de lectura
Cómo Limpiar y Desinfectar Tablas de Cortar de Madera: El Método para Evitar Contaminación CruzadaTrucos de Cocina

Cómo Limpiar y Desinfectar Tablas de Cortar de Madera: El Método para Evitar Contaminación Cruzada

En el universo de la cocina, solemos obsesionarnos con el filo de nuestros cuchillos, la potencia de fuego de nuestros quemadores o la precisión térmica...

26 min de lectura
Taurina y Longevidad Celular: El Aminoácido Azufrado en Vieiras, Ostras y Cefalópodos de Alta CocinaNutrición

Taurina y Longevidad Celular: El Aminoácido Azufrado en Vieiras, Ostras y Cefalópodos de Alta Cocina

Descubre cómo la taurina de vieiras, ostras y cefalópodos optimiza la función mitocondrial y la longevidad celular mediante la alta cocina marina.

23 min de lectura
Ubiquinol y Bioenergética Mitocondrial: La Termolabilidad de la Coenzima Q10 y Métodos de Conservación en Casquería Noble y Pescados GrasosNutrición

Ubiquinol y Bioenergética Mitocondrial: La Termolabilidad de la Coenzima Q10 y Métodos de Conservación en Casquería Noble y Pescados Grasos

Tratado de bioquímica nutricional sobre el ubiquinol (CoQ10), su papel en la cadena respiratoria mitocondrial, termolabilidad térmica y conservación en...

18 min de lectura

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Polifenoles condensados

Polifenoles condensados

/polifeˈnoles kondenˈsados/

Los polifenoles condensados, universalmente conocidos como taninos condensados, son polímeros bioflavonoides biológicamente inertes respecto a la hidrólisis ácida simple, constituidos por el acoplamiento covalente de subunidades de flavan-3-ol (como (+)-catequina, (-)-epicatequina, galocatequina y sus derivados 3-O-galato). A diferencia de los taninos hidrolizables (galotaninos y elagitaninos), los condensados carecen de un núcleo central de carbohidrato (como D-glucosa) unido por enlaces éster, presentando en su lugar enlaces interflavanoides carbono-carbono extremadamente resistentes. En gastronomía molecular y ciencia de los alimentos, los polifenoles condensados dictan la longevidad sensorial, el perfil de color pardo-rojizo y el cuerpo de alimentos fermentados y añejados como el cacao criollo, las semillas de uva, el café y la corteza de canela. Son potentes agentes antioxidantes endógenos que modulan la oxidación lipídica mediante la desactivación de especies reactivas de oxígeno (ROS) y la quelación de iones metálicos redox-activos (Fe²⁺, Cu²⁺), jugando un papel crítico en el desarrollo de notas amargas refinadas versus amargos punzantes.

Proteínas miofibrilares

Proteínas miofibrilares

[pɾoteˈinas mjofiβɾiˈlaɾes]

Las proteínas miofibrilares representan aproximadamente el 55% al 65% de la masa proteica muscular y conforman la arquitectura contráctil y sarcomérica fundamental. Este grupo está dominado por la miosina (molécula asimétrica hexamérica de 520 kDa) y la actina (actina globular G de 42 kDa polimerizada en filamentos de actina F), junto con proteínas reguladoras menores como la tropomiosina, las troponinas (T, I, C) y la titina (3800 kDa). En gastronomía física y culinaria molecular, estas proteínas son las responsables primarias de la formación del gel térmico cárnico tridimensional (sol-gel), la elasticidad (firmeza de mordida) y la retención neta de agua (CRA) en farsas finas, patés, embutidos emulsionados y elaboraciones sous-vide. La solubilización selectiva de la actomiosina mediante fuerza iónica moderada o alta (NaCl entre 1.5% y 3.0% p/p) es el principio fisicoquímico esencial que permite unir fragmentos de músculo sin colágeno ni hidrocoloides exógenos.

Proteínas sarcoplásmicas

Proteínas sarcoplásmicas

[pɾoteˈinas saɾkoˈplazmikas]

Las proteínas sarcoplásmicas constituyen entre el 30% y el 35% del contenido proteico total del miocito esquelético, englobando a más de un centenar de especies macromoleculares solubles en disoluciones acuosas de baja fuerza iónica (I < 0.1 M). Entre sus componentes mayoritarios destacan la mioglobina monomérica (16.7 kDa), responsable cromófora del tejido muscular, enzimas de la glucólisis anaeróbica como la fosfofructocinasa y la lactato deshidrogenasa, así como creatina cinasa y citocromos hemínicos. En la gastronomía de vanguardia y la ciencia de la carne, esta fracción soluble dicta la exudación inicial, la formación de espuma o escoria en caldos térmicos de clarificación y el desarrollo del color post-cocción. Su temprana desnaturalización térmica entre los 40 °C y los 65 °C determina la formación de geles endebles hidrofílicos, afectando directamente la retención hídrica capilar y liberando iones metálicos catalizadores de reacciones de degradación oxidativa de lípidos intramusculares.

Protopectina insoluble

Protopectina insoluble

/pɾotopekˈtina insoˈluble/

La protopectina insoluble es el complejo macromolecular nativo de alta masa molar presente en la lámina media y en la pared celular primaria de tejidos vegetales inmaduros o fisiológicamente firmes. Está constituida por largas cadenas de ácido poligalacturónico de alto peso molecular (frecuentemente superior a 200-500 kDa) densamente metilesterificadas y covalentemente o mecánicamente interconectadas con microfibrillas de celulosa, hemicelulosas (xiloglucanos, arabinogalactanos) y glicoproteínas estructurales ricas en hidroxiprolina (extensinas), lo que impide su solubilización espontánea en medio acuoso frío. En la gastronomía de precisión, la protopectina es la responsable directa de la turgencia, la rigidez osteo-mecánica y la fracturabilidad crujiente de frutas y verduras crudas. Su transición hacia pectinas solubles de menor peso molecular durante la maduración fisiológica o mediante procesos térmicos, hidrolíticos o alcalinos define el límite exacto entre una textura crocante elástica y un ablandamiento celular con colapso estructural irreversible.

Puentes disulfuro

Puentes disulfuro

[ˈpwentes ðisulˈfuɾo]

El puente disulfuro es un enlace covalente simple (-S-S-) resultante de la oxidación de dos grupos tiol o sulfhidrilo (-SH) pertenecientes a residuos de L-cisteína, formando una unidad condensada de cistina. Con una longitud de enlace de aproximadamente 0.205 nm y una notable energía de enlace covalente de 250 a 270 kJ/mol (60 a 65 kcal/mol), constituye la interacción estructural de orden superior más robusta y energéticamente exigente en la estabilización de conformaciones terciarias y cuaternarias de biopolímeros alimentarios. En gastronomía de vanguardia, panificación de alta hidratación y procesado térmico de ovoproductos y cárnicos, los puentes disulfuro son los garantes primarios de la retención viscoelástica del gluten (glutenina y gliadina), la irreversibilidad mecánica de la coagulación térmica del albumen avícola y la resistencia a la deformación de emulsiones cárnicas trituradas (embutidos finos, terrinas al vacío). Su formación controlada fija de modo permanente las texturas alimentarias rígidas, mientras que su ruptura química o térmica altera radicalmente el umbral de masticabilidad y la liberación de notas aromáticas sulfurosas volátiles.

Suero lácteo

Suero lácteo

[ˈswe.ɾo ˈlak.te.o]

El suero lácteo (o lactosuero) es la fracción líquida coloidal y traslúcida que se separa de la masa coagulada (cuajada) durante los procesos de coagulación enzimática o isoeléctrica de la leche. Representa aproximadamente entre el 85% y el 90% del volumen inicial de la leche tratada y retiene cerca del 55% de sus nutrientes originales, incluyendo la totalidad de la lactosa soluble (aproximadamente 45 a 50 g/L), minerales iónicos (calcio, magnesio, cloruros y fosfatos solubles) y un complejo macromolecular de proteínas globulares solubles de alto valor biológico que no precipitan en el cuajado. Estas seroproteínas hidrosolubles (peso molecular conjunto de 14 a 80 kDa) están compuestas principalmente por β-lactoglobulina (~50%), α-lactoalbúmina (~20%), albúmina de suero bovino (BSA, ~5%), e inmunoglobulinas (~10%). En la física culinaria de vanguardia, el lactosuero es un ingrediente funcional reactivo de altísima gama: posee una capacidad excepcional para formar geles térmicos irreversibles transparentes por despliegue de puentes disulfuro a temperaturas críticas (>70 °C), estabilizar espumas de alta densidad de burbuja (por adsorción interfacial veloz) y catalizar reacciones de Maillard controladas debido a su densa concentración de lactosa y lisina disponible.