Presión osmótica celular

(Cellular Osmotic Pressure, Π)

Transcripción IPA: [pɾeˈsjon ozˈmotika θeluˈlaɾ]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

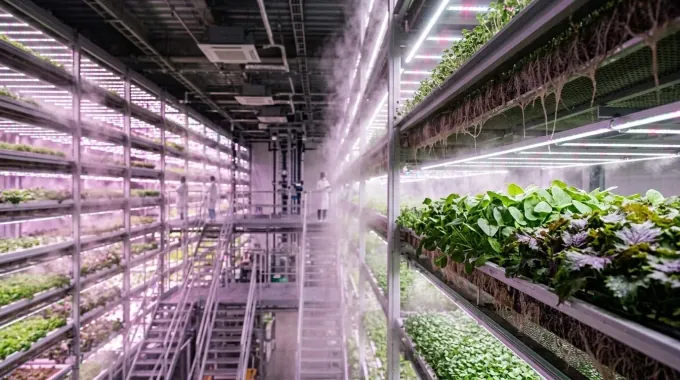
La presión osmótica celular (denotada termodinámicamente como Π) es la magnitud de presión hidrostática requerida para detener el flujo neto difusional de agua a través de una membrana semipermeable celular (el plasmalema o membrana plasmática), impulsado por un gradiente de potencial químico entre el citosol y el medio extracelular. En células vegetales, este fenómeno regula de manera determinante la presión de turgencia (turgor pressure), fuerza mecánica intracelular que empuja el protoplasto contra la rígida pared celular de celulosa y pectina.

En la gastronomía de precisión, la presión osmótica celular es la variable biofísica rectora en procesos de salazón, osmosis inversa culinaria, confitado en frío, marinado por infusión asistida, deshidratación osmótica y texturización de tejidos vegetales y animales. Determina si un vegetal cruje con vitalidad turgente o si colapsa por plasmolisis perdiendo sus jugos intracelulares, además de gobernar la penetración y fijación de solutos saborizantes en la estructura cárnica o parenquimatosa.

II. Etimología e Historia Gastronómica

El médico y botánico francés René Joachim Henri Dutrochet descubrió la ósmosis en 1826 utilizando su invención, el 'endosmómetro', acuñando los términos endósmosis y exósmosis al observar el movimiento de fluidos a través de membranas de vejiga animal. Más adelante, en 1877, el botánico alemán Wilhelm Pfeffer perfeccionó mediciones cuantitativas con membranas de ferrocianuro de cobre y demostró que la presión osmótica era directamente proporcional a la concentración de soluto y a la temperatura absoluta.

Estas observaciones permitieron al químico holandés Jacobus Henricus van 't Hoff formular la teoría termodinámica formal de las disoluciones en 1887, labor que le valió el primer Premio Nobel de Química en 1901. En la alta cocina, el dominio de la presión osmótica pasó de ser una técnica empírica de conservación ancestral a un método de texturización de precisión científica gracias a los estudios de osmosis al vacío (vacuum impregnation) aplicados por la Universidad Politécnica de Valencia y adoptados por pioneros como Ángel León y Andoni Luis Aduriz para impregnar vegetales con caldos marinos y extractos aromáticos sin romper la arquitectura celular.

III. Ciencia Culinaria y Bioquímica

El fundamento biofísico de la presión osmótica celular en soluciones diluidas se describe mediante la ecuación de van 't Hoff: Π = i·M·R·T, donde i es el factor de disociación de van 't Hoff (adimensional, ej. i ≈ 2 para NaCl disociado en Na⁺ y Cl⁻), M es la molaridad de los solutos osmóticamente activos en moles/L, R es la constante universal de los gases ideales (0.08206 L·atm/(mol·K) u 8.314 J/(mol·K)), y T es la temperatura termodinámica absoluta en Kelvin. El flujo de volumen osmótico (Jv) a través de la membrana celular obedece a la relación Jv = Lp·A·(ΔP - σ·ΔΠ), donde Lp es la conductividad hidráulica de la membrana mediada por aquaporinas, A es el área de la superficie celular, ΔP es la diferencia de presión hidrostática, σ es el coeficiente de reflexión de Staverman (0 ≤ σ ≤ 1) y ΔΠ es el gradiente osmótico.

Cuando un tejido vegetal o muscular se sumerge en una solución hipertónica (Πext > Πint, ej. salmuera al 10% p/v de NaCl o almíbar al 60° Brix de sacarosa), el potencial hídrico extracelular desciende fuertemente (Ψ = -Π). El agua fluye exotópicamente desde el citoplasma y la vacuola central hacia el exterior siguiendo el gradiente de energía libre de Gibbs (ΔG < 0). En células vegetales, esto desencadena plasmolisis: el protoplasto se deshidrata y se separa de la pared celular secundaria, cayendo la presión de turgencia interna de 0.5-1.0 MPa a 0 MPa, lo que induce una flacidez inmediata del tejido pero concentra los azúcares y metabolitos secundarios en el citoplasma encogido.

IV. Protocolo de Ejecución y Precisión Técnica

Para realizar una deshidratación e impregnación osmótica de precisión en láminas de tubérculos o frutas (ej. cilindros de manzana Granny Smith de 20.0 mm de diámetro y 5.0 mm de espesor), se prepara una solución osmótica calibrada con osmómetro de presión de vapor o crioscópico para fijar una osmolaridad de 1800 mOsm/kg H₂O, empleando una mezcla binaria de sacarosa (400 g/kg) y cloruro sódico (25 g/kg) disuelta en agua desionizada.

Las muestras se sumergen en la solución dentro de una bolsa de vacío en proporción masa de alimento/solución de 1:5 para evitar la atenuación del gradiente por dilución. El conjunto se somete a un ciclo de impregnación en campana de vacío aplicando una presión residual de 50 mbar durante 8 minutos, seguida de una restauración controlada y paulatina de la presión atmosférica normal (1013 mbar) a razón de 200 mbar/min. Este gradiente mecánico fuerza la expulsión de los gases de los espacios intercelulares y su reemplazo instantáneo por el fluido osmótico debido a la presión hidrostática capilar, alcanzando una textura traslúcida y crujiente ('glassy-crunch') con un incremento controlado de peso del 12-15% sin ruptura térmica de las membranas.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Aplicar salmueras de concentración hiperosmótica excesiva (>15% NaCl) a vegetales delicados destinados a ensaladas frescas, provocando una plasmolisis irreversible con ruptura de los tonoplastos y exudación masiva de jugo celular, dejando una textura flácida y gomosa.

Error #2

Restaurar la presión atmosférica de manera brusca durante la impregnación al vacío celular, colapsando mecánicamente las paredes celulares parenquimatosas y generando cavidades oscuras de tejido aplastado y pardeamiento enzimático veloz por liberación de polifenoloxidasa.

Error #3

Ignorar el balance osmótico al marinar pescados blancos con sal y cítricos simultáneos; una presión osmótica desequilibrada junto a pH < 4 desnaturaliza la actomiosina superficial antes de que los solutos difundan al centro, expulsando agua y acorchando la fibra muscular.

Malla Viva Editorial MomenFress

Dónde cobra vida «Presión osmótica celular» en nuestra web

Recetas, bodegas, quesos y queserías D.O.P., tratados científicos y grandes chefs donde este concepto se aplica en la práctica.

1 publicación relacionada

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Proteínas miofibrilares

Proteínas miofibrilares

[pɾoteˈinas mjofiβɾiˈlaɾes]

Las proteínas miofibrilares representan aproximadamente el 55% al 65% de la masa proteica muscular y conforman la arquitectura contráctil y sarcomérica fundamental. Este grupo está dominado por la miosina (molécula asimétrica hexamérica de 520 kDa) y la actina (actina globular G de 42 kDa polimerizada en filamentos de actina F), junto con proteínas reguladoras menores como la tropomiosina, las troponinas (T, I, C) y la titina (3800 kDa). En gastronomía física y culinaria molecular, estas proteínas son las responsables primarias de la formación del gel térmico cárnico tridimensional (sol-gel), la elasticidad (firmeza de mordida) y la retención neta de agua (CRA) en farsas finas, patés, embutidos emulsionados y elaboraciones sous-vide. La solubilización selectiva de la actomiosina mediante fuerza iónica moderada o alta (NaCl entre 1.5% y 3.0% p/p) es el principio fisicoquímico esencial que permite unir fragmentos de músculo sin colágeno ni hidrocoloides exógenos.

Proteínas sarcoplásmicas

Proteínas sarcoplásmicas

[pɾoteˈinas saɾkoˈplazmikas]

Las proteínas sarcoplásmicas constituyen entre el 30% y el 35% del contenido proteico total del miocito esquelético, englobando a más de un centenar de especies macromoleculares solubles en disoluciones acuosas de baja fuerza iónica (I < 0.1 M). Entre sus componentes mayoritarios destacan la mioglobina monomérica (16.7 kDa), responsable cromófora del tejido muscular, enzimas de la glucólisis anaeróbica como la fosfofructocinasa y la lactato deshidrogenasa, así como creatina cinasa y citocromos hemínicos. En la gastronomía de vanguardia y la ciencia de la carne, esta fracción soluble dicta la exudación inicial, la formación de espuma o escoria en caldos térmicos de clarificación y el desarrollo del color post-cocción. Su temprana desnaturalización térmica entre los 40 °C y los 65 °C determina la formación de geles endebles hidrofílicos, afectando directamente la retención hídrica capilar y liberando iones metálicos catalizadores de reacciones de degradación oxidativa de lípidos intramusculares.

Protopectina insoluble

Protopectina insoluble

/pɾotopekˈtina insoˈluble/

La protopectina insoluble es el complejo macromolecular nativo de alta masa molar presente en la lámina media y en la pared celular primaria de tejidos vegetales inmaduros o fisiológicamente firmes. Está constituida por largas cadenas de ácido poligalacturónico de alto peso molecular (frecuentemente superior a 200-500 kDa) densamente metilesterificadas y covalentemente o mecánicamente interconectadas con microfibrillas de celulosa, hemicelulosas (xiloglucanos, arabinogalactanos) y glicoproteínas estructurales ricas en hidroxiprolina (extensinas), lo que impide su solubilización espontánea en medio acuoso frío. En la gastronomía de precisión, la protopectina es la responsable directa de la turgencia, la rigidez osteo-mecánica y la fracturabilidad crujiente de frutas y verduras crudas. Su transición hacia pectinas solubles de menor peso molecular durante la maduración fisiológica o mediante procesos térmicos, hidrolíticos o alcalinos define el límite exacto entre una textura crocante elástica y un ablandamiento celular con colapso estructural irreversible.

Puentes disulfuro

Puentes disulfuro

[ˈpwentes ðisulˈfuɾo]

El puente disulfuro es un enlace covalente simple (-S-S-) resultante de la oxidación de dos grupos tiol o sulfhidrilo (-SH) pertenecientes a residuos de L-cisteína, formando una unidad condensada de cistina. Con una longitud de enlace de aproximadamente 0.205 nm y una notable energía de enlace covalente de 250 a 270 kJ/mol (60 a 65 kcal/mol), constituye la interacción estructural de orden superior más robusta y energéticamente exigente en la estabilización de conformaciones terciarias y cuaternarias de biopolímeros alimentarios. En gastronomía de vanguardia, panificación de alta hidratación y procesado térmico de ovoproductos y cárnicos, los puentes disulfuro son los garantes primarios de la retención viscoelástica del gluten (glutenina y gliadina), la irreversibilidad mecánica de la coagulación térmica del albumen avícola y la resistencia a la deformación de emulsiones cárnicas trituradas (embutidos finos, terrinas al vacío). Su formación controlada fija de modo permanente las texturas alimentarias rígidas, mientras que su ruptura química o térmica altera radicalmente el umbral de masticabilidad y la liberación de notas aromáticas sulfurosas volátiles.

Suero lácteo

Suero lácteo

[ˈswe.ɾo ˈlak.te.o]

El suero lácteo (o lactosuero) es la fracción líquida coloidal y traslúcida que se separa de la masa coagulada (cuajada) durante los procesos de coagulación enzimática o isoeléctrica de la leche. Representa aproximadamente entre el 85% y el 90% del volumen inicial de la leche tratada y retiene cerca del 55% de sus nutrientes originales, incluyendo la totalidad de la lactosa soluble (aproximadamente 45 a 50 g/L), minerales iónicos (calcio, magnesio, cloruros y fosfatos solubles) y un complejo macromolecular de proteínas globulares solubles de alto valor biológico que no precipitan en el cuajado. Estas seroproteínas hidrosolubles (peso molecular conjunto de 14 a 80 kDa) están compuestas principalmente por β-lactoglobulina (~50%), α-lactoalbúmina (~20%), albúmina de suero bovino (BSA, ~5%), e inmunoglobulinas (~10%). En la física culinaria de vanguardia, el lactosuero es un ingrediente funcional reactivo de altísima gama: posee una capacidad excepcional para formar geles térmicos irreversibles transparentes por despliegue de puentes disulfuro a temperaturas críticas (>70 °C), estabilizar espumas de alta densidad de burbuja (por adsorción interfacial veloz) y catalizar reacciones de Maillard controladas debido a su densa concentración de lactosa y lisina disponible.

Temperatura de transición vítrea

Temperatura de transición vítrea

[tempeɾaˈtuɾa ðe tɾansiˈθjon ˈβitɾea]

La temperatura de transición vítrea (Tg) es la coordenada pseudo-termodinámica de segundo orden en la que una matriz amorfa metaestable pasa de un estado sólido vítreo, rígido y frágil a un estado gomoso, deformable y viscoso (leathery/rubbery state). Este fenómeno cinético no involucra un calor latente de cambio de fase propiamente dicho (entalpía de fusión ΔH = 0), sino un salto discontinuo en la capacidad calorífica a presión constante (ΔCp) y en el coeficiente de expansión térmica volumétrica (α). En gastronomía de vanguardia y tecnología de alimentos, la Tg gobierna de forma absoluta la estabilidad textural, la higroscopicidad, el colapso estructural y la vida útil de productos deshidratados, crujientes liofilizados, caramelos amorfos, velos moleculares y polvos encapsulados. Cuando la temperatura de almacenamiento supera la Tg (T > Tg), la viscosidad local decae drásticamente desde órdenes de magnitud de 10^12 Pa·s hasta menos de 10^7 Pa·s, incrementando exponencialmente la movilidad molecular y desencadenando procesos degenerativos como sinéresis, aglomeración, cristalización y colapso reológico.