Proteólisis por calpaínas

(Sistema proteolítico dependiente de Ca²⁺ / EC 3.4.22.52 y EC 3.4.22.53)

Transcripción IPA: [pɾoteˈolisis poɾ kalpaˈinas]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

La proteólisis por calpaínas constituye el fenómeno enzimático primario responsable del enternecimiento post mortem del tejido muscular esquelético durante la fase de maduración cárnica. Este sistema endógeno de cisteína endopeptidasas neutras citosólicas, integrado predominantemente por la μ-calpaína (calpaína-1, activada a concentraciones micromolares de 5 a 50 μM de Ca²⁺ libre) y la m-calpaína (calpaína-2, dependiente de 1 a 2 mM de Ca²⁺ libre), orquesta la escisión selectiva y no aleatoria de proteínas citoesqueléticas y sarcoméricas clave, tales como la titina (3700 kDa), la nebulina (600–800 kDa), la desmina (53 kDa) y la filamina, preservando intactos los filamentos gruesos de miosina y delgados de actina.

Desde una perspectiva biofísica y organoléptica, la acción limitada de estas enzimas desestabiliza la arquitectura transversal del sarcómero en las líneas Z y uniones intermiofibrilares, reduciendo drásticamente la resistencia al corte medida mediante la fuerza de cizalla Warner-Bratzler (WBSF de >80 N en músculo prerigor a <35 N tras maduración). Dicha fragmentación macromolecular incrementa la hidrofilia intersticial y modula la capacidad de retención de agua (CRA), atenuando la pérdida de exudado durante la cocción de precisión al vacío y transformando una matriz elasto-rígida en un gel muscular tierno y palatable.

II. Etimología e Historia Gastronómica

El descubrimiento de este sistema se remonta a 1964, cuando Guroff identificó por primera vez en tejido cerebral de mamíferos una proteasa neutra activada por iones de calcio. No obstante, no fue sino hasta finales de la década de 1970 y principios de 1980 cuando Takashi Murachi propuso formalmente el término unificado 'calpaína' para subrayar su homología catalítica de tríada Cys-His-Asn con las proteasas de la familia de la papaína y su dependencia obligada del catión divalente calcio. En la ciencia de la carne, Darrel Goll y colaboradores en la Universidad de Arizona demostraron a lo largo de las décadas de 1980 y 1990 que estas enzimas eran las ejecutoras fundamentales de la proteólisis post mortem y no los lisosomas, reformulando los paradigmas de la tenderización cárnica.

La traslación de este marco molecular a la alta cocina de vanguardia fue catalizada por la confluencia entre físicos culinarios como Nicholas Kurti y Hervé This con chefs pioneros en la cocción al vacío y maduración en seco (dry-aging). Al comprenderse que la calpastatina actúa como un inhibidor endógeno estequiométrico que cesa con la autodigestión de las calpaínas y que el pH óptimo de estas enzimas oscila entre 7.0 y 7.2 pero retienen actividad crítica a pH post-rigor (5.4–5.8), los departamentos de I+D culinario diseñaron curvas térmicas de añejamiento a 1.0–2.0 °C bajo atmósferas controladas, maximizando la ventana temporal de proteólisis antes de que la caída del potencial redox y la acidosis metabólica inactivaran irreversiblemente a la μ-calpaína.


III. Ciencia Culinaria y Bioquímica

El mecanismo catalítico de las calpaínas reside en una tríada clásica constituida por Cys105, His262 y Asn286 (numeración canónica en la subunidad catalítica de 80 kDa de la calpaína-1). En el miocito en reposo (Ca²⁺ basal ~100 nM), la enzima se encuentra en una conformación inactiva donde los subdominios dI y dII del dominio catalítico se hallan desalineados por una separación estérica de aproximadamente 8 Å, imposibilitando la formación del ion par tiolato-imidazolio nucleofílico. Tras el agotamiento del trifosfato de adenosina (ATP) post mortem, el retículo sarcoplásmico pierde la capacidad de recaptura activa vía SERCA (Ca²⁺-ATPasa), disparando el calcio citosólico libre hacia rangos de 10 a 100 μM; esto induce la unión de Ca²⁺ a los motivos estructurales de mano EF en los dominios IV y VI, forzando un reordenamiento conformacional coordinado que aproxima físicamente a Cys105 y His262 a una distancia de enlace <3.5 Å (ΔG°‡ de activación catalítica disminuida en ~25 kJ/mol).

En la cinética post mortem, la μ-calpaína experimenta una autólisis rápida que reduce su masa de 80 kDa a 78 kDa y finalmente a 76 kDa, proceso que transitoriamente abate su requerimiento de Ca²⁺ libre a concentraciones de 0.5 a 5 μM, pero que acelera su degradación irreversible. La constante termodinámica de hidrólisis de enlaces peptídicos adyacentes a residuos alifáticos o aromáticos en titina y nebulina opera bajo un pH dependiente: mientras que a pH 7.2 la actividad específica es del 100%, a pH de equilibrio post mortem (5.5–5.6, provocado por la glucogenólisis anaeróbica y acumulación de L-lactato) la actividad relativa decae a un 20–28%. A pesar de esta disminución en la velocidad máxima (Vmax), la permanencia de la enzima activa durante los primeros 7 a 14 días a 2 °C basta para escindir más del 80% de la desmina periférica del costámero, desvinculando las miofibrillas adyacentes y alterando fundamentalmente la birrefringencia y difracción óptica del tejido muscular.

IV. Protocolo de Ejecución y Precisión Técnica

Para el control y optimización de la proteólisis por calpaínas en un laboratorio de I+D cárnico, se seleccionan canales o piezas primarias (ej. longissimus dorsi bovino) inmediatamente tras la finalización del rigor mortis (determinada por la estabilización del pH a 5.50 ± 0.05 medido con electrodo de penetración de punzón calibrado a pH 4.01 y 7.00). La maduración se ejecuta en cámara climática de precisión a una temperatura constante de 1.5 °C ± 0.3 °C, humedad relativa (HR) del 75% ± 2% y una velocidad de flujo laminar de aire de 0.2 m/s. Se prohíbe el uso de temperaturas superiores a 4.0 °C para prevenir la proliferación microbiana y la desnaturalización prematura de la μ-calpaína, manteniendo el tejido en estas condiciones termodinámicas estrictas durante un período de entre 14 y 28 días cronometrados.

Para determinaciones analíticas de progreso proteolítico, se homogenizan 5.0 g de muestra muscular en 25 mL de tampón de extracción helado (Tris-HCl 50 mM, pH 7.5, EDTA 5 mM, DTT 2 mM). La degradación de macromoléculas se monitoriza cuantificando el índice de fragmentación miofibrilar (MFI) por turbidimetría a 540 nm en espectrofotómetro UV-Vis, o mediante electroforesis SDS-PAGE al 8-12% detectando la desaparición de las bandas de titina T1 intacta y la aparición de los productos de degradación T2 y polipéptidos de troponina-T de 28-32 kDa. Para aplicaciones culinarias directas de cocción a baja temperatura prolongada, la carne madurada debe alcanzar en su centro térmico un objetivo máximo inicial de 50.0 °C a 52.0 °C con rampa térmica controlada en baño de agua circulante termostático con agitación, evitando superar los 55.0 °C donde sobreviene la inactivación térmica total instantánea de cualquier fracción remanente de proteasas neutras.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Inducción de cold shortening (acortamiento por frío) al someter el músculo prerigor a temperaturas inferiores a 10 °C con ATP residual y pH > 6.2; esto genera una liberación masiva e incontrolada de Ca²⁺ desde el retículo sarcoplásmico que satura el sistema contráctil antes de la proteólisis, provocando un solapamiento irreversible de actina-miosina y un incremento permanente e intratable de la dureza mecánica de la carne.

Error #2

Estimulación térmica excesiva inicial por encima de 45 °C en cortes frescos con el pretexto de acelerar la maduración; la alta inestabilidad conformacional de la μ-calpaína causa su desnaturalización térmica y autólisis terminal en minutos, anulando la digestión selectiva de la titina y resultando en una carne gomosa con pérdida masiva de agua por sinéresis miofibrilar.

Error #3

Maduración de canales afectadas por estrés pre-mortem crónico (carnes DFD: oscuras, firmes y secas, con pH final > 6.0); aunque la actividad de las calpaínas se mantiene anormalmente elevada en este rango de pH neutro, la retención excesiva de agua y la falta de contracción normal impiden el añejamiento controlado, derivando en texturas pegajosas, putrefacción bacteriana acelerada y ausencia total del perfil de sabor umami característico.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Protopectina insoluble

Protopectina insoluble

/pɾotopekˈtina insoˈluble/

La protopectina insoluble es el complejo macromolecular nativo de alta masa molar presente en la lámina media y en la pared celular primaria de tejidos vegetales inmaduros o fisiológicamente firmes. Está constituida por largas cadenas de ácido poligalacturónico de alto peso molecular (frecuentemente superior a 200-500 kDa) densamente metilesterificadas y covalentemente o mecánicamente interconectadas con microfibrillas de celulosa, hemicelulosas (xiloglucanos, arabinogalactanos) y glicoproteínas estructurales ricas en hidroxiprolina (extensinas), lo que impide su solubilización espontánea en medio acuoso frío. En la gastronomía de precisión, la protopectina es la responsable directa de la turgencia, la rigidez osteo-mecánica y la fracturabilidad crujiente de frutas y verduras crudas. Su transición hacia pectinas solubles de menor peso molecular durante la maduración fisiológica o mediante procesos térmicos, hidrolíticos o alcalinos define el límite exacto entre una textura crocante elástica y un ablandamiento celular con colapso estructural irreversible.

Puentes disulfuro

Puentes disulfuro

[ˈpwentes ðisulˈfuɾo]

El puente disulfuro es un enlace covalente simple (-S-S-) resultante de la oxidación de dos grupos tiol o sulfhidrilo (-SH) pertenecientes a residuos de L-cisteína, formando una unidad condensada de cistina. Con una longitud de enlace de aproximadamente 0.205 nm y una notable energía de enlace covalente de 250 a 270 kJ/mol (60 a 65 kcal/mol), constituye la interacción estructural de orden superior más robusta y energéticamente exigente en la estabilización de conformaciones terciarias y cuaternarias de biopolímeros alimentarios. En gastronomía de vanguardia, panificación de alta hidratación y procesado térmico de ovoproductos y cárnicos, los puentes disulfuro son los garantes primarios de la retención viscoelástica del gluten (glutenina y gliadina), la irreversibilidad mecánica de la coagulación térmica del albumen avícola y la resistencia a la deformación de emulsiones cárnicas trituradas (embutidos finos, terrinas al vacío). Su formación controlada fija de modo permanente las texturas alimentarias rígidas, mientras que su ruptura química o térmica altera radicalmente el umbral de masticabilidad y la liberación de notas aromáticas sulfurosas volátiles.

Suero lácteo

Suero lácteo

[ˈswe.ɾo ˈlak.te.o]

El suero lácteo (o lactosuero) es la fracción líquida coloidal y traslúcida que se separa de la masa coagulada (cuajada) durante los procesos de coagulación enzimática o isoeléctrica de la leche. Representa aproximadamente entre el 85% y el 90% del volumen inicial de la leche tratada y retiene cerca del 55% de sus nutrientes originales, incluyendo la totalidad de la lactosa soluble (aproximadamente 45 a 50 g/L), minerales iónicos (calcio, magnesio, cloruros y fosfatos solubles) y un complejo macromolecular de proteínas globulares solubles de alto valor biológico que no precipitan en el cuajado. Estas seroproteínas hidrosolubles (peso molecular conjunto de 14 a 80 kDa) están compuestas principalmente por β-lactoglobulina (~50%), α-lactoalbúmina (~20%), albúmina de suero bovino (BSA, ~5%), e inmunoglobulinas (~10%). En la física culinaria de vanguardia, el lactosuero es un ingrediente funcional reactivo de altísima gama: posee una capacidad excepcional para formar geles térmicos irreversibles transparentes por despliegue de puentes disulfuro a temperaturas críticas (>70 °C), estabilizar espumas de alta densidad de burbuja (por adsorción interfacial veloz) y catalizar reacciones de Maillard controladas debido a su densa concentración de lactosa y lisina disponible.

Temperatura de transición vítrea

Temperatura de transición vítrea

[tempeɾaˈtuɾa ðe tɾansiˈθjon ˈβitɾea]

La temperatura de transición vítrea (Tg) es la coordenada pseudo-termodinámica de segundo orden en la que una matriz amorfa metaestable pasa de un estado sólido vítreo, rígido y frágil a un estado gomoso, deformable y viscoso (leathery/rubbery state). Este fenómeno cinético no involucra un calor latente de cambio de fase propiamente dicho (entalpía de fusión ΔH = 0), sino un salto discontinuo en la capacidad calorífica a presión constante (ΔCp) y en el coeficiente de expansión térmica volumétrica (α). En gastronomía de vanguardia y tecnología de alimentos, la Tg gobierna de forma absoluta la estabilidad textural, la higroscopicidad, el colapso estructural y la vida útil de productos deshidratados, crujientes liofilizados, caramelos amorfos, velos moleculares y polvos encapsulados. Cuando la temperatura de almacenamiento supera la Tg (T > Tg), la viscosidad local decae drásticamente desde órdenes de magnitud de 10^12 Pa·s hasta menos de 10^7 Pa·s, incrementando exponencialmente la movilidad molecular y desencadenando procesos degenerativos como sinéresis, aglomeración, cristalización y colapso reológico.

Triglicéridos saturados

Triglicéridos saturados

/tɾiɣliˈseɾiðos satuˈɾaðos/

Los triglicéridos saturados son triésteres derivados de una molécula de glicerol unida covalentemente mediante enlaces éster a tres cadenas hidrocarbonadas acíclicas lineales que carecen de dobles enlaces carbono-carbono (sp³ puros). Presentan una conformación espacial completamente extendida en zigzag termodinámicamente favorable, permitiendo un empaquetamiento intermolecular compacto de alta densidad mediante interacciones electrostáticas dispersivas de London y fuerzas de Van der Waals. Esta geometría regular eleva significativamente sus temperaturas de fusión (habitualmente entre 45 °C y 65 °C para cadenas de C16:0 a C18:0), constituyendo matrices semisólidas o sólidas cristalinas a temperatura de servicio culinario (18-22 °C). En gastronomía de vanguardia, determinan la plasticidad, el polimorfismo cristalino (formas α, β′ y β) y la curva de contenido de grasa sólida (SFC, Solid Fat Content), factores rectores de la viscoelasticidad en emulsiones complejas, chocolates finos, mantecas anhidras y pralinés. Su presencia condiciona la fusión endotérmica lingual, la retención de compuestos aromáticos lipofílicos no polares y el brillo superficial de preparaciones estructuradas, evitando la migración lipídica (oil-off) pero exigiendo un estricto control térmico para eludir una cristalización heterogénea y astringente al paladar.

Velo de flor

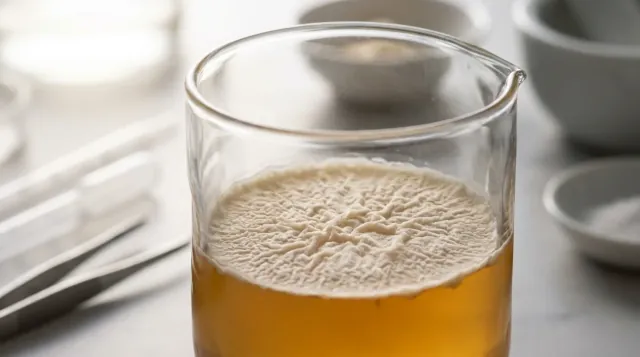
Velo de flor

[ˈbe.lo ðe ˈfloɾ]

El velo de flor es una biopelícula hidrofóbica multicelular flotante (biofilm) conformada por razas especializadas de levaduras de la especie Saccharomyces cerevisiae (principalmente las variedades beticus, cheresiensis, montuliensis y rouxii). Este ecosistema de superficie se autoensambla en la interfaz líquido-gas de matrices hidroalcohólicas (típicamente vinos fortificados a un título alcométrico de 15.0-15.5% v/v) cuando se agotan los azúcares fermentables hexosas (D-glucosa y D-fructosa) y los microorganismos realizan una transición diaúxica hacia una respiración estrictamente aeróbica basada en el consumo oxidativo del etanol y del glicerol endógeno disuelto. En la alta gastronomía contemporánea y enología de culto (crianza biológica en el sistema de Criaderas y Soleras, vinos amarillos de Jura 'vin jaune', o el desarrollo de velos de levadura cultivados sobre caldos, infusiones de algas y destilados gastronómicos), el velo de flor ejerce dos funciones físico-químicas cardinales: actúa como una barrera física aislante absoluta frente al oxígeno que bloquea el pardeamiento oxidativo enzimático y no enzimático de los polifenoles, e impulsa una metamorfosis organoléptica profunda mediante la hipersecreción de acetaldehído libre, acetales, sotolón y lactonas, produciendo texturas extraordinariamente secas, afiladas, minerales y de una persistencia en boca salina y umami inigualable.