Receptor quimestésico TRPA1

(Canal iónico catiónico subfamilia A miembro 1 / Receptor del sensor de mostaza y wasabi)

Transcripción IPA: [te.e.re.pe.aˈu.no / re.sepˈtoɾ ki.mesˈte.si.ko]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

El receptor TRPA1 es una proteína transmembrana tetramérica homomérica de ~127 kDa por monómero caracterizada por un dominio N-terminal citoplásmico citoplasmático excepcionalmente extendido que contiene de 14 a 18 repeticiones de anquirina. Es el sensor biofísico primario de irritantes electrofílicos ambientales y agentes quimestésicos pungentoides de origen alimentario como los isotiocianatos (isotiocianato de alilo de la mostaza, rábano picante y wasabi), el cinamaldehído (canela) y el tiosulfinato de alilo (alicina en el ajo).

En gastronomía científica, la activación de TRPA1 desencadena la sensación de pungencia nasofaríngea explosiva y punzante («quimestesia aérea»), mediada por las terminaciones sensitivas del nervio trigémino. A diferencia de TRPV1 (capsaicina), cuya respuesta es prolongada y dominantemente lingual, la activación de TRPA1 presenta una farmacocinética de inicio ultrarrápido y rápida resolución sensorial, gobernando la sensación de frescura pungente, salivación reflexógena y el alivio de sensaciones grasas saturadas en caldos o emulsiones densas.

II. Etimología e Historia Gastronómica

Descubierto inicialmente en 1999 como p120 en fibroblastos de ratón, su papel quimiosensorial fundamental fue desentrañado en 2003 por Ardem Patapoutian y posteriormente profundizado por David Julius. La investigación reveló que este canal actúa como un 'detector de daño químico', capaz de activarse no por un sitio clásico de unión llave-cerradura de ligando-receptor, sino por modificación covalente no enzimática de residuos específicos de cisteína nucleofílica.

En la culinaria de vanguardia, su estudio permitió descifrar la degradación enzimática del glucosinolato sinigrina mediante la enzima mirosinasa (tioglucosidasa, EC 3.2.1.147). Chefs científicos e investigadores del Nordic Food Lab y el Basque Culinary Center aislaron cómo el choque térmico o los solventes polares modifican la liberación del isotiocianato de alilo, permitiendo el diseño de velos, espumas y extractos con una descarga quimestésica calculada en milisegundos, evitando el colapso del sistema olfativo del comensal.


III. Ciencia Culinaria y Bioquímica

El mecanismo de compuerta de TRPA1 mediado por electrófilos implica una adición de Michael coordinada o una reacción de tiocarbamilación con los grupos tiol (-SH) de residuos nucleofílicos de cisteína localizados en el citoplasma N-terminal, primordialmente Cys621, Cys641 y Cys665, junto al residuo Lys710. La modificación covalente de estos tioles desestabiliza la conformación cerrada del canal, promoviendo un colapso entálpico favorable que abre el poro acuoso transmembrana (con permeabilidad Ca²⁺/Na⁺ de aproximadamente 7.0 a 9.0), provocando una afluencia despolarizante masiva de iones divalentes.

La cinética de activación de TRPA1 por isotiocianato de alilo (AITC) presenta una constante de velocidad aparente kon dependiente de la concentración y un valor de EC50 de entre 5 y 15 μM a 25 °C. A diferencia de las interacciones no covalentes por fuerzas de Van der Waals típicas de otros GPCRs o canales iónicos, la activación covalente de TRPA1 posee una constante de disociación sumamente lenta; la desactivación in vivo y en boca está catalizada por el aclaramiento del compuesto mediante la formación de aductos con glutatión reducido (GSH) o la desensibilización calcio-dependiente modulada por la calmodulina y la fosfolipasa C (PLC) con una constante de semivida (t1/2) de recuperación de ~120 segundos.

IV. Protocolo de Ejecución y Precisión Técnica

Para estandarizar la pungencia controlada de glucosinolatos y liberación de AITC en emulsiones estabilizadas, procesar Brassica o Wasabia japonica fresca bajo criomolienda con nitrógeno líquido (evitando la desnaturalización térmica de la mirosinasa que se inactiva a T > 60 °C). Ajustar la masa vegetal a una actividad de agua (aw) de 0.95 ± 0.02 medida en un higrómetro de punto de rocío y fijar el pH en 6.2 mediante un tampón fosfato 0.05 M para maximizar la actividad catalítica de la enzima (óptimo de pH 6.0–6.5).

Dejar reposar la mezcla a 22.0 ± 0.5 °C en baño termostático con agitación orbital continua durante un período de hidrólisis enzimática de exactamente 180 segundos para alcanzar el pico cinético de concentración de AITC (80 a 120 ppm, cuantificable analíticamente por cromatografía de gases acoplada a ionización de llama). Detener la reacción acidificando críticamente con ácido cítrico al 10% hasta pH 3.8. Homogeneizar con rotor-estator a 12,000 rpm durante 60 segundos en una fase lipídica de aceite de pepita de uva con 0.5 g/kg de ésteres poliglicéricos de ácidos grasos (PGPR) para atrapar temporalmente el gas volátil y modular la cinética de evaporación trigeminal.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Sobrecalentamiento del tejido vegetal por encima de 65 °C durante el triturado mecánico, lo que desnaturaliza irreversiblemente a la mirosinasa (tioglucosidasa), impidiendo la conversión catalítica de sinigrina en isotiocianato de alilo y eliminando toda actividad sobre TRPA1.

Error #2

Trituración desprotegida en contacto prolongado con oxígeno atmosférico (>15 min) a pH neutro o básico, lo que induce la volatilización completa del AITC y la formación secundaria de sulfuro de dimetilo y alil polisulfuros de retrogusto sulfuroso y pútrido.

Error #3

Adición de sales ricas en metales divalentes libres (como sales no quelatadas de Cu²⁺ o Fe²⁺), las cuales oxidan los grupos tiol antes de su ingestión o reaccionan catalíticamente destruyendo la reactividad electrofílica del agonista.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Suero lácteo

Suero lácteo

[ˈswe.ɾo ˈlak.te.o]

El suero lácteo (o lactosuero) es la fracción líquida coloidal y traslúcida que se separa de la masa coagulada (cuajada) durante los procesos de coagulación enzimática o isoeléctrica de la leche. Representa aproximadamente entre el 85% y el 90% del volumen inicial de la leche tratada y retiene cerca del 55% de sus nutrientes originales, incluyendo la totalidad de la lactosa soluble (aproximadamente 45 a 50 g/L), minerales iónicos (calcio, magnesio, cloruros y fosfatos solubles) y un complejo macromolecular de proteínas globulares solubles de alto valor biológico que no precipitan en el cuajado. Estas seroproteínas hidrosolubles (peso molecular conjunto de 14 a 80 kDa) están compuestas principalmente por β-lactoglobulina (~50%), α-lactoalbúmina (~20%), albúmina de suero bovino (BSA, ~5%), e inmunoglobulinas (~10%). En la física culinaria de vanguardia, el lactosuero es un ingrediente funcional reactivo de altísima gama: posee una capacidad excepcional para formar geles térmicos irreversibles transparentes por despliegue de puentes disulfuro a temperaturas críticas (>70 °C), estabilizar espumas de alta densidad de burbuja (por adsorción interfacial veloz) y catalizar reacciones de Maillard controladas debido a su densa concentración de lactosa y lisina disponible.

Temperatura de transición vítrea

Temperatura de transición vítrea

[tempeɾaˈtuɾa ðe tɾansiˈθjon ˈβitɾea]

La temperatura de transición vítrea (Tg) es la coordenada pseudo-termodinámica de segundo orden en la que una matriz amorfa metaestable pasa de un estado sólido vítreo, rígido y frágil a un estado gomoso, deformable y viscoso (leathery/rubbery state). Este fenómeno cinético no involucra un calor latente de cambio de fase propiamente dicho (entalpía de fusión ΔH = 0), sino un salto discontinuo en la capacidad calorífica a presión constante (ΔCp) y en el coeficiente de expansión térmica volumétrica (α). En gastronomía de vanguardia y tecnología de alimentos, la Tg gobierna de forma absoluta la estabilidad textural, la higroscopicidad, el colapso estructural y la vida útil de productos deshidratados, crujientes liofilizados, caramelos amorfos, velos moleculares y polvos encapsulados. Cuando la temperatura de almacenamiento supera la Tg (T > Tg), la viscosidad local decae drásticamente desde órdenes de magnitud de 10^12 Pa·s hasta menos de 10^7 Pa·s, incrementando exponencialmente la movilidad molecular y desencadenando procesos degenerativos como sinéresis, aglomeración, cristalización y colapso reológico.

Triglicéridos saturados

Triglicéridos saturados

/tɾiɣliˈseɾiðos satuˈɾaðos/

Los triglicéridos saturados son triésteres derivados de una molécula de glicerol unida covalentemente mediante enlaces éster a tres cadenas hidrocarbonadas acíclicas lineales que carecen de dobles enlaces carbono-carbono (sp³ puros). Presentan una conformación espacial completamente extendida en zigzag termodinámicamente favorable, permitiendo un empaquetamiento intermolecular compacto de alta densidad mediante interacciones electrostáticas dispersivas de London y fuerzas de Van der Waals. Esta geometría regular eleva significativamente sus temperaturas de fusión (habitualmente entre 45 °C y 65 °C para cadenas de C16:0 a C18:0), constituyendo matrices semisólidas o sólidas cristalinas a temperatura de servicio culinario (18-22 °C). En gastronomía de vanguardia, determinan la plasticidad, el polimorfismo cristalino (formas α, β′ y β) y la curva de contenido de grasa sólida (SFC, Solid Fat Content), factores rectores de la viscoelasticidad en emulsiones complejas, chocolates finos, mantecas anhidras y pralinés. Su presencia condiciona la fusión endotérmica lingual, la retención de compuestos aromáticos lipofílicos no polares y el brillo superficial de preparaciones estructuradas, evitando la migración lipídica (oil-off) pero exigiendo un estricto control térmico para eludir una cristalización heterogénea y astringente al paladar.

Velo de flor

Velo de flor

[ˈbe.lo ðe ˈfloɾ]

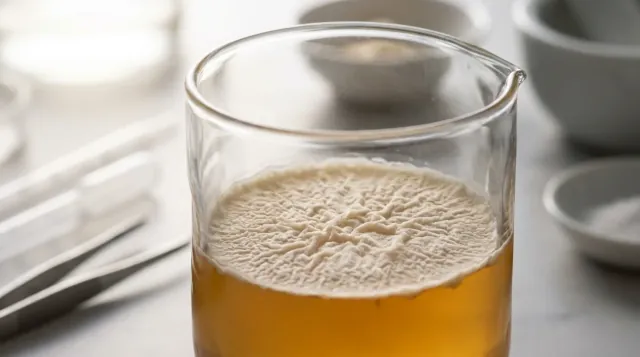
El velo de flor es una biopelícula hidrofóbica multicelular flotante (biofilm) conformada por razas especializadas de levaduras de la especie Saccharomyces cerevisiae (principalmente las variedades beticus, cheresiensis, montuliensis y rouxii). Este ecosistema de superficie se autoensambla en la interfaz líquido-gas de matrices hidroalcohólicas (típicamente vinos fortificados a un título alcométrico de 15.0-15.5% v/v) cuando se agotan los azúcares fermentables hexosas (D-glucosa y D-fructosa) y los microorganismos realizan una transición diaúxica hacia una respiración estrictamente aeróbica basada en el consumo oxidativo del etanol y del glicerol endógeno disuelto. En la alta gastronomía contemporánea y enología de culto (crianza biológica en el sistema de Criaderas y Soleras, vinos amarillos de Jura 'vin jaune', o el desarrollo de velos de levadura cultivados sobre caldos, infusiones de algas y destilados gastronómicos), el velo de flor ejerce dos funciones físico-químicas cardinales: actúa como una barrera física aislante absoluta frente al oxígeno que bloquea el pardeamiento oxidativo enzimático y no enzimático de los polifenoles, e impulsa una metamorfosis organoléptica profunda mediante la hipersecreción de acetaldehído libre, acetales, sotolón y lactonas, produciendo texturas extraordinariamente secas, afiladas, minerales y de una persistencia en boca salina y umami inigualable.

Ácido alfa-linolénico

Ácido alfa-linolénico

/ˈasiðo ˈalfa linoˈleniko/

El ácido alfa-linolénico (ALA) es un ácido graso poliinsaturado trienoico esencial perteneciente a la serie omega-3 (n-3), con fórmula molecular C18H30O2 (MW 278.43 g/mol) y configuración estereoquímica estricta all-cis-9,12,15-octadecatrienoico. Al integrar tres dobles enlaces cis secuenciales separados por dos centros metilénicos bis-alílicos independientes, su cadena acíclica adopta una conformación curvada y sumamente dinámica en el espacio tridimensional. Esta conformación perturba cualquier intento de agregación hidrofóbica cristalina, determinando un punto de fusión extremadamente bajo (-11 °C) y una fluidez membranaria y coloidal superior. En la alta cocina, el ALA es el componente biomolecular insignia de aceites de linaza virgen, nuez, perilla, chía y extractos cloroplásticos de hojas tiernas, exhibiendo notas aromáticas verdes, herbáceas y terrosas refinadas. Representa el sustrato biológico por excelencia para la lipoxigenasa vegetal que da origen a los aldehídos de seis y nueve carbonos típicos del 'aroma verde fresco' (como cis-3-hexenal). Su extrema labilidad termodinámica exige que jamás sea sometido a calentamiento convectivo directo, reservándose para emulsiones en frío, gelatinizaciones lípido-gelificadas y espumas presurizadas bajo gas inerte.

Ácido linoleico poliinsaturado

Ácido linoleico poliinsaturado

/ˈasiðo linoˈlejko polijnssatuˈɾaðo/

El ácido linoleico es un ácido graso poliinsaturado dienoico esencial de la serie omega-6 (n-6), con fórmula molecular C18H32O2 (MW 280.44 g/mol) y estructura canónica sistemática cis,cis-9,12-octadecadienoico. Presenta dos dobles enlaces cis interrumpidos por un grupo metileno (-CH=CH-CH2-CH=CH-), una configuración conformacional que introduce una doble torsión espacial acentuada en la cola hidrofóbica, impidiendo el ordenamiento reticular y deprimiendo su punto de fusión hasta los -5 °C, lo que lo mantiene en un estado intensamente móvil y no viscoso a temperaturas de refrigeración convencionales (4 °C). En el ecosistema culinario contemporáneo, se encuentra predominantemente en aceites de semillas (girasol, pepita de uva, sésamo, maíz) y frutos secos, proporcionando una sensación bucal extraordinariamente liviana, libre de empalago ceroso y dotada de una rápida velocidad de liberación retronasal para volátiles aromáticos florales o herbáceos. Sin embargo, su arquitectura química impone una extrema susceptibilidad a la cascada de autooxidación radicalaria, condicionando las vidas útiles organolépticas, la técnica de deshidratación por liofilización y los límites térmicos de salteados y frituras técnicas.