Rigor mortis cárnico

(Rigidez cadavérica muscular / Bloqueo estequiométrico del sarcómero)

Transcripción IPA: [ˈri.ɣoɾ ˈmoɾ.tis ˈkaɾ.ni.ko]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

El rigor mortis cárnico es el proceso biofísico caracterizado por la pérdida irreversible de extensibilidad y elasticidad en el tejido muscular esquelético tras el sacrificio animal, culminando en la fijación rígida e inextensible de los miofilamentos. Este estado terminal se desencadena cuando las reservas de creatina fosfato y glucógeno se extinguen, impidiendo la regeneración mitocondrial o citosólica del trifosfato de adenosina (ATP). Al caer los niveles intra-miofibrilares de ATP por debajo del umbral crítico de disociación (~0,1 mmol/L), las bombas SERCA de calcio del retículo sarcoplásmico se inactivan, liberando iones Ca²⁺ hacia el citosol y bloqueando de manera permanente las cabezas de miosina sobre los filamentos de actina en su ángulo de flexión máxima.

Desde el punto de vista de las propiedades funcionales en gastronomía, el inicio y desarrollo del rigor mortis marca el punto de máxima dureza mecánica y tenacidad de la carne, acompañado de una contracción activa del sarcómero que reduce sustancialmente el volumen hidrostático intersticial. Si la carne es cocinada o sometida a tratamientos mecánicos agresivos durante la cúspide del rigor mortis, el tejido resultante experimenta una expulsión forzada de fluidos sarcoplásmicos ricos en mioglobina y sales minerales, derivando en una masticabilidad fibrosa, coriácea y astringente.

II. Etimología e Historia Gastronómica

Aunque la manifestación física de la rigidez tras la muerte ha sido conocida empíricamente desde la antigüedad clásica, la base química y miofibrilar del rigor mortis no se esclareció hasta mediados del siglo XX. El fisiólogo británico E. C. Bate-Smith y su equipo en el Low Temperature Research Station de Cambridge publicaron entre 1947 y 1950 los estudios cronológicos pioneros que correlacionaron la pérdida cuantitativa de ATP y el aumento de amonio/lactato con la curva temporal de extensibilidad muscular en mamíferos.

Poco después, en 1953, John R. Bendall demostró la dependencia energética absoluta del rigor mortis al descubrir que el retículo sarcoplásmico actúa como una bomba consumidora de ATP que secuestra activamente el calcio en condiciones fisiológicas. En el ámbito de la cocina modernista, la comprensión de esta fase fundamentó el rechazo absoluto al corte o cocción de carne en estado de pre-rigor o rigor agudo, estableciendo los tiempos mínimos obligatorios de reposo metabólico a temperatura controlada antes de cualquier técnica de despiece, vacío o maduración enzimática.
III. Ciencia Culinaria y Bioquímica

El mecanismo del rigor mortis está gobernado por una constante de recambio termodinámica dependiente del complejo de miosina-ATP. En el músculo vivo, la afinidad de la miosina por la actina en presencia de ATP-Mg²⁺ es extremadamente baja (Kd > 10⁻⁴ mol/L), manteniéndose el músculo flexible. Cuando las concentraciones de ATP caen desde su nivel fisiológico inicial de ~8,0 mmol/kg hasta niveles inferiores a 1,0 mmol/kg, la constante de afinidad aumenta en varios órdenes de magnitud (Kd < 10⁻⁸ mol/L), forzando el estado termodinámicamente irreversible de puente de rigor cruzado (rigor bond).

Este proceso cursa en tres fases cinéticas diferenciadas: la fase de latencia (donde la resíntesis de ATP a expensas de la creatina fosfato mantiene la extensibilidad), la fase rápida de entrada en rigor (con una tasa de caída de ATP exponencial y un acortamiento del sarcómero de 2,2 μm a valores tan compactados como 1,6–1,8 μm) y el rigor consumado o fase meseta. Durante esta fase final, la resistencia al cizallamiento medida mediante la fuerza de corte Warner-Bratzler alcanza su cenit absoluto (frecuentemente superior a 80–120 N), y el espaciado reticular miofibrilar interfilamentoso colapsa, obligando al agua capilar a escapar hacia los espacios interfasciculares.

IV. Protocolo de Ejecución y Precisión Técnica

Para el manejo y control del periodo de rigor mortis previo a la maduración o tratamiento culinario en instalaciones gastronómicas de sacrificio propio o abastecimiento primario: monitorizar la temperatura de la canal en cámara fría de flujo estático a 10–12 °C durante las primeras 10–14 horas post-mortem, impidiendo que descienda prematuramente por debajo de los 10 °C antes de que la concentración de ATP caiga por debajo de 1 mmol/kg o el pH descienda de 6,0. Esta precaución previene el cold shortening, en el que el calcio se vierte súbitamente del retículo a bajas temperaturas.

Comprobar la culminación de la fase de rigor mediante un texturómetro o penetrómetro equipado con una sonda cónica de 60° y un pH-metro con electrodo de penetración de aguja: el rigor se considera plenamente establecido y estabilizado cuando la velocidad de variación de pH se estanca (dpH/dt < 0,005 unidades/hora durante 3 horas consecutivas, alcanzando un valor terminal de pH = 5,45–5,65) y la resistencia a la deformación mecánica alcanza su meseta máxima. Solamente al confirmar estos valores cinéticos se puede autorizar la transferencia de la canal o de los cortes primarios a la cámara de maduración a 1,0 ± 0,5 °C y humedad relativa del 80–85%.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Congelar o someter a abatimiento ultrarrápido (-40 °C) músculo en fase pre-rigor con altos niveles residuales de ATP, provocando el colapso catastrófico por descongelación conocido como 'rigor por descongelación' (thaw rigor), donde el tejido se acorta hasta un 60% y exuda hasta el 35% de su peso en agua libre.

Error #2

Cocinar piezas musculares en pleno pico de rigor mortis, forzando la desnaturalización térmica sobre una red ya compactada mecánicamente, lo que genera una estructura de dureza inextensible imposible de corregir incluso mediante cocciones sous-vide hiperprolongadas.

Error #3

Despiezar y deshuesar cortes magros en la fase rápida de entrada en rigor mortis, eliminando el anclaje esquelético natural que ofrece tensión mecánica antagonista a los filamentos, lo que permite un acortamiento sarcomérico desenfrenado del músculo y un aumento irreversible de la tenacidad.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Suero lácteo

Suero lácteo

[ˈswe.ɾo ˈlak.te.o]

El suero lácteo (o lactosuero) es la fracción líquida coloidal y traslúcida que se separa de la masa coagulada (cuajada) durante los procesos de coagulación enzimática o isoeléctrica de la leche. Representa aproximadamente entre el 85% y el 90% del volumen inicial de la leche tratada y retiene cerca del 55% de sus nutrientes originales, incluyendo la totalidad de la lactosa soluble (aproximadamente 45 a 50 g/L), minerales iónicos (calcio, magnesio, cloruros y fosfatos solubles) y un complejo macromolecular de proteínas globulares solubles de alto valor biológico que no precipitan en el cuajado. Estas seroproteínas hidrosolubles (peso molecular conjunto de 14 a 80 kDa) están compuestas principalmente por β-lactoglobulina (~50%), α-lactoalbúmina (~20%), albúmina de suero bovino (BSA, ~5%), e inmunoglobulinas (~10%). En la física culinaria de vanguardia, el lactosuero es un ingrediente funcional reactivo de altísima gama: posee una capacidad excepcional para formar geles térmicos irreversibles transparentes por despliegue de puentes disulfuro a temperaturas críticas (>70 °C), estabilizar espumas de alta densidad de burbuja (por adsorción interfacial veloz) y catalizar reacciones de Maillard controladas debido a su densa concentración de lactosa y lisina disponible.

Temperatura de transición vítrea

Temperatura de transición vítrea

[tempeɾaˈtuɾa ðe tɾansiˈθjon ˈβitɾea]

La temperatura de transición vítrea (Tg) es la coordenada pseudo-termodinámica de segundo orden en la que una matriz amorfa metaestable pasa de un estado sólido vítreo, rígido y frágil a un estado gomoso, deformable y viscoso (leathery/rubbery state). Este fenómeno cinético no involucra un calor latente de cambio de fase propiamente dicho (entalpía de fusión ΔH = 0), sino un salto discontinuo en la capacidad calorífica a presión constante (ΔCp) y en el coeficiente de expansión térmica volumétrica (α). En gastronomía de vanguardia y tecnología de alimentos, la Tg gobierna de forma absoluta la estabilidad textural, la higroscopicidad, el colapso estructural y la vida útil de productos deshidratados, crujientes liofilizados, caramelos amorfos, velos moleculares y polvos encapsulados. Cuando la temperatura de almacenamiento supera la Tg (T > Tg), la viscosidad local decae drásticamente desde órdenes de magnitud de 10^12 Pa·s hasta menos de 10^7 Pa·s, incrementando exponencialmente la movilidad molecular y desencadenando procesos degenerativos como sinéresis, aglomeración, cristalización y colapso reológico.

Triglicéridos saturados

Triglicéridos saturados

/tɾiɣliˈseɾiðos satuˈɾaðos/

Los triglicéridos saturados son triésteres derivados de una molécula de glicerol unida covalentemente mediante enlaces éster a tres cadenas hidrocarbonadas acíclicas lineales que carecen de dobles enlaces carbono-carbono (sp³ puros). Presentan una conformación espacial completamente extendida en zigzag termodinámicamente favorable, permitiendo un empaquetamiento intermolecular compacto de alta densidad mediante interacciones electrostáticas dispersivas de London y fuerzas de Van der Waals. Esta geometría regular eleva significativamente sus temperaturas de fusión (habitualmente entre 45 °C y 65 °C para cadenas de C16:0 a C18:0), constituyendo matrices semisólidas o sólidas cristalinas a temperatura de servicio culinario (18-22 °C). En gastronomía de vanguardia, determinan la plasticidad, el polimorfismo cristalino (formas α, β′ y β) y la curva de contenido de grasa sólida (SFC, Solid Fat Content), factores rectores de la viscoelasticidad en emulsiones complejas, chocolates finos, mantecas anhidras y pralinés. Su presencia condiciona la fusión endotérmica lingual, la retención de compuestos aromáticos lipofílicos no polares y el brillo superficial de preparaciones estructuradas, evitando la migración lipídica (oil-off) pero exigiendo un estricto control térmico para eludir una cristalización heterogénea y astringente al paladar.

Velo de flor

Velo de flor

[ˈbe.lo ðe ˈfloɾ]

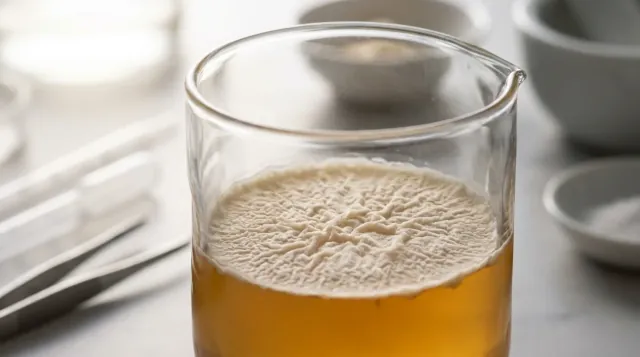
El velo de flor es una biopelícula hidrofóbica multicelular flotante (biofilm) conformada por razas especializadas de levaduras de la especie Saccharomyces cerevisiae (principalmente las variedades beticus, cheresiensis, montuliensis y rouxii). Este ecosistema de superficie se autoensambla en la interfaz líquido-gas de matrices hidroalcohólicas (típicamente vinos fortificados a un título alcométrico de 15.0-15.5% v/v) cuando se agotan los azúcares fermentables hexosas (D-glucosa y D-fructosa) y los microorganismos realizan una transición diaúxica hacia una respiración estrictamente aeróbica basada en el consumo oxidativo del etanol y del glicerol endógeno disuelto. En la alta gastronomía contemporánea y enología de culto (crianza biológica en el sistema de Criaderas y Soleras, vinos amarillos de Jura 'vin jaune', o el desarrollo de velos de levadura cultivados sobre caldos, infusiones de algas y destilados gastronómicos), el velo de flor ejerce dos funciones físico-químicas cardinales: actúa como una barrera física aislante absoluta frente al oxígeno que bloquea el pardeamiento oxidativo enzimático y no enzimático de los polifenoles, e impulsa una metamorfosis organoléptica profunda mediante la hipersecreción de acetaldehído libre, acetales, sotolón y lactonas, produciendo texturas extraordinariamente secas, afiladas, minerales y de una persistencia en boca salina y umami inigualable.

Ácido alfa-linolénico

Ácido alfa-linolénico

/ˈasiðo ˈalfa linoˈleniko/

El ácido alfa-linolénico (ALA) es un ácido graso poliinsaturado trienoico esencial perteneciente a la serie omega-3 (n-3), con fórmula molecular C18H30O2 (MW 278.43 g/mol) y configuración estereoquímica estricta all-cis-9,12,15-octadecatrienoico. Al integrar tres dobles enlaces cis secuenciales separados por dos centros metilénicos bis-alílicos independientes, su cadena acíclica adopta una conformación curvada y sumamente dinámica en el espacio tridimensional. Esta conformación perturba cualquier intento de agregación hidrofóbica cristalina, determinando un punto de fusión extremadamente bajo (-11 °C) y una fluidez membranaria y coloidal superior. En la alta cocina, el ALA es el componente biomolecular insignia de aceites de linaza virgen, nuez, perilla, chía y extractos cloroplásticos de hojas tiernas, exhibiendo notas aromáticas verdes, herbáceas y terrosas refinadas. Representa el sustrato biológico por excelencia para la lipoxigenasa vegetal que da origen a los aldehídos de seis y nueve carbonos típicos del 'aroma verde fresco' (como cis-3-hexenal). Su extrema labilidad termodinámica exige que jamás sea sometido a calentamiento convectivo directo, reservándose para emulsiones en frío, gelatinizaciones lípido-gelificadas y espumas presurizadas bajo gas inerte.

Ácido linoleico poliinsaturado

Ácido linoleico poliinsaturado

/ˈasiðo linoˈlejko polijnssatuˈɾaðo/

El ácido linoleico es un ácido graso poliinsaturado dienoico esencial de la serie omega-6 (n-6), con fórmula molecular C18H32O2 (MW 280.44 g/mol) y estructura canónica sistemática cis,cis-9,12-octadecadienoico. Presenta dos dobles enlaces cis interrumpidos por un grupo metileno (-CH=CH-CH2-CH=CH-), una configuración conformacional que introduce una doble torsión espacial acentuada en la cola hidrofóbica, impidiendo el ordenamiento reticular y deprimiendo su punto de fusión hasta los -5 °C, lo que lo mantiene en un estado intensamente móvil y no viscoso a temperaturas de refrigeración convencionales (4 °C). En el ecosistema culinario contemporáneo, se encuentra predominantemente en aceites de semillas (girasol, pepita de uva, sésamo, maíz) y frutos secos, proporcionando una sensación bucal extraordinariamente liviana, libre de empalago ceroso y dotada de una rápida velocidad de liberación retronasal para volátiles aromáticos florales o herbáceos. Sin embargo, su arquitectura química impone una extrema susceptibilidad a la cascada de autooxidación radicalaria, condicionando las vidas útiles organolépticas, la técnica de deshidratación por liofilización y los límites térmicos de salteados y frituras técnicas.