La estacionalidad culinaria ha sido relegada con frecuencia a una consigna poética o a un mero compromiso de proximidad ecológica, despojándola de su núcleo verdaderamente trascendente: la variabilidad biofísica del tejido vegetal a lo largo de su ciclo biológico. En la alta gastronomía de vanguardia, el ingrediente no es un absoluto invariable, sino un sistema dinámico en perpetua oscilación química. Tratar una raíz de primavera saturada de savia y pectina soluble bajo idénticos parámetros cinéticos que un tubérculo recolectado tras las primeras heladas invernales supone un error estructural. El fuego no debe domesticar a ciegas; debe interrogar la arquitectura celular del insumo para descifrar el estado exacto de sus polímeros estructurales, sus reservas de almidón y la osmolaridad de sus vacuolas.
Comprender la madurez celular implica adentrarse en la microestructura vegetal, un laberinto donde la turgencia hídrica ejerce presiones hidrostáticas formidables contra paredes formadas por microfibrillas de celulosa, hemicelulosa y láminas medias cementadas por protopectina. A medida que el fruto o la raíz madura, el metabolismo de la planta activa enzimas endógenas como la pectina metilesterasa y la poligalacturonasa, transformando la rigidez primigenia en una flexibilidad soluble. Este declive estructural no es una pérdida, sino una redistribución cromatográfica y sápida de azúcares simples, ácidos orgánicos y compuestos fenólicos volátiles. El cocinero científico no impone una técnica fija; modula la entalpía del medio de cocción para sincronizarse milimétricamente con esta evolución biológica intrínseca.
El propósito supremo de este compendio enciclopédico es proporcionar las claves termodinámicas y cinéticas para transformar la fluctuación estacional en una herramienta de precisión organoléptica inquebrantable. Al coordinar la temperatura de transición vítrea de los carbohidratos, la gelificación controlada del almidón y la degradación selectiva de las sustancias pécticas con la cronología fisiológica de la cosecha, el maestro culinario adquiere la capacidad de alcanzar la textura ideal: aquella que no sucumbe al colapso purulento de una sobrecocción ni se atrinchera en la fibrosidad refractaria. Adentrarse en este tratado es reclamar la maestría técnica absoluta sobre el reino vegetal, donde cada variación de grado centígrado responde a un diálogo íntimo con el tiempo cósmico y molecular de la tierra.
Ficha Técnica & Principio Físico-Químico
Termólisis selectiva de protopectinas y modulación cinética de la gelatinización del almidón en función de la turgencia vacuolar y el pH celular
Maestro
Variables según matriz (de 12 minutos en escalfado de choque a 180 minutos en maduración sous-vide a baja temperatura)
Preservación íntegra de la turgencia celular con licuefacción intramural sedosa y retención absoluta de compuestos aromáticos volátiles
Termocirculador de inmersión hidrostática de alta precisión (±0.05 °C) y refractómetro digital de grados Brix con compensación de temperatura
La Dinámica de la Lámina Media y la Disolución de Pectinas
La arquitectura del tejido vegetal encuentra su pilar de cohesión intercelular en la lámina media, una matriz amorfa compuesta predominantemente por sustancias pécticas que actúa como el cemento biofísico entre células adyacentes. En fases tempranas de maduración vegetal —características de las cosechas de brotes primaverales o primicias—, la protopectina insoluble domina el paisaje histológico, entrelazada fuertemente con iones de calcio divalentes que generan puentes iónicos de carboxilato extraordinariamente resistentes al calor suave. Aplicar una cocción a baja temperatura a un vegetal verde incipiente no logra reblandecer esta red tridimensional; por el contrario, activa la pectina metilesterasa endógena a 50-60 °C, eliminando los grupos metilo de las cadenas pécticas y permitiendo que el calcio disponible forme aún más enlaces cruzados, fijando de manera irreversible una textura coriácea e indomable para el paladar refinado.
A medida que avanza el ciclo estacional y la maduración fisiológica alcanza su clímax estival o tardío, las poligalacturonasas y pectatoliasas naturales despolimerizan de forma intrínseca estas cadenas lineales de ácido alfa-D-galacturónico. El vegetal entra en un estado donde la protopectina ha transmutado en pectina hidrosoluble y azúcares neutros, lo que reduce drásticamente la resistencia mecánica de los tejidos frente a la cizalladura masticatoria. Si en este estadio terminal de madurez se somete la materia prima a un hervor convulso o a una ebullición clásica a 100 °C, la disolución instantánea y violenta de la lámina media provoca la separación catastrófica de las células intactas —fenómeno conocido como desorganización tisular—, transformando una pieza prometedora en una masa informe, acuosa y carente de cohesión geométrica.
Por consiguiente, el control estacional impone una termometría bifásica rigurosamente inversa: los tejidos tempranos e inmaduros requieren cocciones cortas pero de choque térmico abrupto por encima de los 88 °C para inactivar rápidamente las enzimas fijadoras de pectina y provocar una escisión hidrolítica limpia de los enlaces glucosídicos; alternativamente, los productos en plenitud de temporada o sobremaduros demandan rangos isotérmicos ultraprecisos entre los 62 °C y 68 °C, combinados con soluciones tampón que estabilicen el pH extracelular y eviten la solubilización descontrolada del cemento péctico restante. El punto óptimo sensorial se define precisamente en esa frontera fisicoquímica donde la célula vegetal cede bajo el diente con una resistencia aterciopelada sin liberar prematuramente su citoplasma antes de la masticación activa.
Termodinámica de la Turgencia Vacuolar y Presión Osmótica
El fenómeno del mordisco crujiente y suculento reside enteramente en el gradiente de presión osmótica que ejerce la vacuola central sobre el protoplasto, empujando la membrana plasmática contra la pared celular primaria, una fuerza que la biofísica vegetal cuantifica como presión de turgencia hidrostática. En los productos recolectados en el alba de la primavera, con acuíferos saturados y tejidos hidrófilos, las vacuolas se hallan en su máxima hipertonicidad, repletas de agua y sales minerales con baja concentración relativa de carbohidratos libres. Al exponer estos órganos juveniles a fuentes de calor seco sin protección lipídica o barrera de vapor, la deshidratación periférica rápida causa la plasmólisis destructiva: el agua huye hacia el exterior por gradiente de vapor, la membrana colapsa, y el tejido pierde su elasticidad hidrodinámica de forma irremediable antes de que acontezca cualquier cocción interna.
Conforme el calendario avanza hacia las sequías estivales y la maduración senescente, la planta ajusta su equilibrio hídrico mediante la concentración de solutos osmoprotectores, disminuyendo el volumen hídrico vacuolar e incrementando la osmolaridad por la acumulación de polioles, monosacáridos y aminoácidos libres. Esta transformación disminuye la presión mecánica intrínseca sobre la pared primaria, otorgando al vegetal una plasticidad maleable que cambia fundamentalmente la conductividad térmica del ingrediente. Un vegetal otoñal posee una difusividad térmica mucho más densa y homogénea que un vegetal joven colmado de microporos de aire intracelular desecable, exigiendo al cocinero de alta gama ajustar el tiempo de penetración del calor basándose en la densidad de masa seca y no en el volumen geométrico aparente del corte.
Para domesticar este gradiente a lo largo del año, la culinaria de precisión interviene el medio circundante mediante inmersiones osmóticas calibradas previas a la transferencia calórica. Mientras que las cosechas de alta turgencia agradecen tratamientos en salmueras isotónicas débiles (del 1.5% al 2.5% de cloruro sódico a 4 °C) para reforzar la integridad electroquímica de las acuaporinas y retener la humedad citoplasmática durante el choque de calor, los ejemplares concentrados de recolección tardía responden con mayor elocuencia al escalfado en medios grasos hidrófugos como mantequillas clarificadas o aceites monovarietales a 72 °C, donde la nula actividad de agua del medio térmico prohíbe la fuga de los escasos solutos concentrados en la vacuola hacia el exterior.
La Transición del Almidón: De Amilosa Amorfa a Gel Dextrinado
La metamorfosis fisiológica de los órganos de almacenamiento subterráneos y semillas —desde las raíces tuberosas de invierno hasta las leguminosas primigenias— está regida por la biosíntesis y posterior degradación del almidón en sus dos fracciones macromoleculares: la amilosa lineal y la amilopectina ramificada. En las fases tempranas del tubérculo o bulbo, el almidón se encuentra empaquetado en amiloplastos semicristalinos de altísima densidad con una proporción de amilosa superior, lo que exige umbrales calóricos elevados (entre 68 °C y 75 °C) en presencia de suficiente agua libre para superar la energía de activación que permite la ruptura de los puentes de hidrógeno intermoleculares, provocando el hinchamiento y la gelatinización sin la cual el almidón resulta biológicamente indigesto y astringente al paladar.
Sin embargo, el reloj estacional de los tubérculos sometidos al reposo invernal en tierra fría desencadena un proceso fascinante denominado endulzamiento por frío: para protegerse de la congelación tisular, la planta incrementa la transcripción de amilasas que hidrolizan el almidón de reserva, transformándolo espontáneamente en sacarosa, glucosa y fructosa libres. Si el cocinero intenta cocinar una patata, una chirivía o un tupinambo tras semanas de heladas con el mismo método empleado en la recolección temprana de finales de verano, los azúcares reductores libres sufrirán una reacción de Maillard descontrolada y prematura en la superficie a apenas 140 °C, carbonizando la corteza exterior mucho antes de que el núcleo alcance los 85 °C necesarios para flexibilizar la celulosa interna.
El protocolo técnico maestro exige una lectura analítica de la densidad de almidón mediante densimetría o refractometría de extracto refractario: ante productos invernales ricos en azúcares reductores derivados de la amilólisis natural, se debe optar por cocciones al vacío en dos etapas térmicas. Una primera meseta enzimática a 52-55 °C activa de manera residual la maltasa sin desintegrar la matriz física, permitiendo estabilizar los azúcares antes de someter la pieza a una segunda fase a 85 °C donde la amilopectina remanente forma un gel tridimensional suave y continuo, impidiendo la exudación sinérida y asegurando una textura con untuosidad molecular similar a la de un puré emulsionado mecánicamente, pero conservando la morfología externa milimétrica del corte.
Balance Ácido-Brix y la Cinética de Caramelización Intrínseca
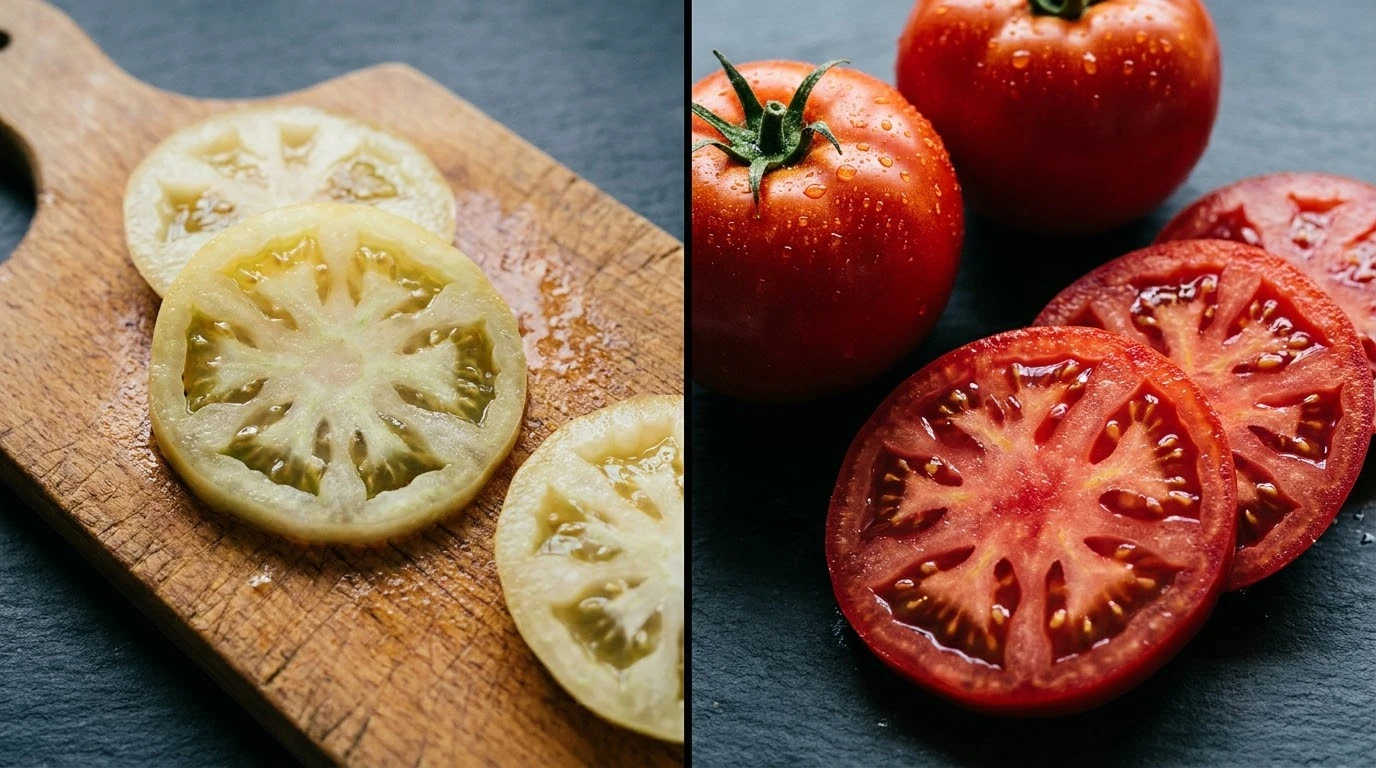
El vector de maduración sensorial está indeleblemente marcado por la evolución del índice de madurez, expresado como el cociente termodinámico entre los sólidos solubles totales (medidos en grados Brix) y la acidez titulable total (dominada por los ácidos málico, cítrico o tartárico). En frutos botánicos tratados como vegetales de alta cocina —como tomates heirloom, berenjenas japonesas o pimientos de romesco—, el estadio temprano exhibe un pH marcadamente ácido (incluso inferior a 3.8) con abundancia de clorofilas y taninos polifenólicos que actúan como protectores celulares pero confieren una astringencia que resiste a la caramelización térmica convencional, dado que los ácidos en exceso inhiben y retardan la enolización requerida para iniciar las rutas avanzadas de Maillard.
Cuando el cénit solar propicia la degradación respiratoria de los ácidos orgánicos en los ciclos de Krebs de la planta madura, los azúcares reductores se incrementan exponencialmente, alterando de raíz la cinética de las reacciones cromógenas durante la aplicación de energía calórica. El cocinero percibe que el vegetal no requiere adición de grasas saturadas ni de agentes azucarados externos para generar notas a avellana tostada, corteza de pan horneado y umami profundo; el propio citoplasma vegetal contiene la estequiometría perfecta de aminoácidos libres (especialmente asparagina y ácido glutámico) y hexosas para autodirigir su caramelización interna a partir de los 115 °C bajo condiciones de deshidratación superficial controlada.
La transgresión culinaria de vanguardia radica en modular la termodinámica del plato manipulando esta acidez intrínseca según el punto estacional: si el ingrediente es de recolección precoz, se introduce en un ambiente alcalinizado sutilmente mediante bicarbonato sódico microdosificado al 0.2% en el agua de escaldado para elevar el pH superficial a 7.2, acelerando violentamente la caramelización y ablandando la hemicelulosa sin tiempos prolongados de exposición destructiva; inversamente, cuando el vegetal rebosa de fructosa libre por maduración extrema, la técnica impone la vaporización de nieblas ácidas o cocciones en atmósfera saturada de ácido ascórbico para amortiguar el colapso osmótico y preservar la tensión gustativa frente al exceso de empalago que arruina el perfil organoléptico.
Degradación de Pigmentos y Retención de Clorofila vs. Carotenoides
El cromatismo vegetal es el testigo ocular indiscutible de su estado citológico y requiere un tratamiento cinético diametralmente opuesto según la naturaleza química de sus cromóforos activos. En los estados tempranos y primaverales, la clorofila a y b domina los tilacoides del cloroplasto celular, caracterizada por un anillo porfirínico que alberga en su centro coordinado un ion de magnesio bioactivo extraordinariamente lábil. Cuando el tejido vegetal es sometido a calor prolongado o a un medio de cocción cerrado con vapores ácidos condensados, el magnesio es desalojado y sustituido por dos protones hidrógeno libres, dando lugar a la feofitina a (de tonalidad grisácea oliva) y la feofitina b (amarillo parduzco), aniquilando de inmediato la luminosidad esmeralda que comunica frescura y juventud estacional.
Por el contrario, los órganos otoñales e invernales desplazan su maquinaria fotosintética hacia los cromoplastos, donde los tetraterpenos lipófilos —como el beta-caroteno, el licopeno y las xantofilas— asumen la primacía tintórea del vegetal en formas globulares extraordinariamente termoestables y refractarias a la degradación hidrolítica ácida. No obstante, los carotenoides poseen dobles enlaces conjugados que son profundamente susceptibles a la fotooxidación y a la isomerización térmica de conformaciones trans a cis en presencia de oxígeno atmosférico a altas temperaturas, lo que apaga el brillo vívido y genera compuestos aldehídicos secundarios con notas a heno seco, cartón envejecido y aromas terrosos no deseados en una preparación purista.
Para salvaguardar la clorofila en el cenit de la juventud vegetal, la técnica impele al uso de una relación volumétrica de líquido a sólido mínima de 10:1 en ebullición turbulenta desprovista de tapa (permitiendo la volatilización de los ácidos carboxílicos volátiles expulsados por las vacuolas), seguida de un enfriamiento criogénico instantáneo en salmuera con hielo para detener la desesterificación de la clorofila mediada por la clorofilasa. En marcado contraste, la domesticación culinaria de los carotenoides en vegetales maduros demanda la ausencia total de aire libre: la técnica de vacío profundo a 99.8% combinada con cocción por convección de vapor a 83 °C solubiliza los pigmentos en la propia fase lipídica intracelular, provocando una transiluminación donde el caroteno impregna la pectina hidratada con un fulgor casi traslúcido y deslumbrante.
Protocolos de Escaldado y Reposo Térmico Diferencial
La transferencia de energía calórica hacia un tejido vegetal nunca concluye en el instante en que la pieza es retirada del medio de cocción; la inercia térmica y la conductividad del agua confinada en las paredes celulares dictan una propagación retardada de ondas de calor hacia el centro geométrico que puede arruinar irreparablemente la textura lograda si no se calcula con precisión milimétrica. En vegetales jóvenes de primavera, de paredes delgadas y escasa inercia por su alta proporción de área superficial respecto al volumen, el calor residual se disipa rápidamente al aire, pero sufre de un riesgo crítico de sobrecocción interna por conducción súbita hacia el corazón vascular durante los primeros 45 segundos posteriores a la inmersión térmica.
En contrapartida, las raíces invernales macizas y los tallos densificados por la senescencia estacional presentan coeficientes de difusión térmica significativamente menores; acumulan calor en la corteza externa actuando como un condensador térmico que sigue cocinando la médula interior durante más de diez a quince minutos tras cesar el aporte exterior de vatios de energía. Ignorar esta termodinámica conduce indefectiblemente a uno de los dos desastres canónicos de la cocina no científica: un exterior sobrecocinado, desleído y harinoso con un núcleo fibroso y semicrudo, o un vegetal que, sacado presuntamente 'al punto' del baño termorregulado, se desmorona en el plato de servicio por efecto del calor latente durante el transporte a la mesa.
El protocolo culinario de alta precisión implementa, por ende, el reposo térmico diferencial modulado por escaneo de gradiente: para elementos juveniles, se prescribe la interrupción cinética por inmersión de exactamente 1.2 veces el tiempo de cocción en agua saturada de cloruro a 0 °C, seguida de una atemperación a 20 °C previa al emplatado con rocío de grasa templada; para los elementos de madurez tardía, se aplica la técnica de cocción por pulsos o calor intermitente, retirando la pieza del medio a una temperatura interna 6 °C por debajo del objetivo final, permitiendo que la curva de equilibrio adiabático eleve el núcleo sin degradar el exterior, seguido de un reposo en cámara de aire quieto a 60 °C que relaja las tensiones tensionales de las fibrillas de celulosa.
Secretos de Ejecución & Claves Maestras del Truco
Monitoreo refractométrico estacional: Mida los grados Brix del jugo celular antes de decidir el método; si el valor supera los 9° Brix en un tubérculo o raíz, descarte el asado directo a alta temperatura para evitar la carbonización de azúcares reductores libres y opte por un pochado previo en medio ácido ligero a 68 °C.
La regla del pH en la lámina media: Añada 0.5 g de ácido málico o ascórbico por litro en cocciones de vegetales sobremaduros para retardar la hidrólisis beta-eliminativa de la pectina, conservando la arquitectura de la pieza sin recurrir al endurecimiento indeseable por sales minerales excesivas.
Activación estratégica de la PME (Pectina Metilesterasa): Para otorgar a raíces otoñales de textura maleable una resistencia elástica única al morder sin añadir aditivos, sométalas a un precalentamiento isotérmico a 55 °C durante 30 minutos antes de la cocción principal a alta temperatura; las enzimas nativas desesterificarán las pectinas permitiendo que el calcio propio las reticule covalentemente.
Vacío hiperbárico para restituir turgencia senescente: Si se enfrenta a un vegetal recolectado al final de la temporada con estrés hídrico y pérdida de turgencia vacuolar, sométalo a impregnación al vacío en campana (99.9% a -1 bar) sumergido en caldo vegetal clarificado aromatizado a 3 °C durante tres ciclos continuos; restaurará la presión hidrostática intramural antes de aplicar calor.
Preguntas y Respuestas Frecuentes (8 Claves)
Respuestas a las preguntas y aspectos técnicos más consultados sobre esta investigación gastronómica.
Porque en fases de juventud biológica, los vegetales poseen una concentración preponderante de protopectina insolubilizada y un sistema enzimático donde la pectina metilesterasa (PME) está altamente disponible. Si se somete el vegetal a temperaturas templadas (entre 50 °C y 65 °C) durante tiempos extensos en sous-vide, la PME no se desnaturaliza y cataliza la desesterificación de la pectina, la cual reacciona de inmediato con los abundantes iones de calcio libres en la célula vegetal. Este fenómeno genera una red de pectato cálcico ultra-resistente que 'calcifica' biológicamente las paredes celulares. El resultado organoléptico es un tejido gomoso, astringente y desagradablemente duro que jamás se ablandará, careciendo del mordisco quebradizo y crujiente característico de una cocción de choque térmico breve a más de 90 °C que inactive la enzima al instante.
El almacenamiento a temperaturas inferiores a 4-6 °C induce en las raíces y tubérculos la conversión biológica de almidón en sacarosa, glucosa y fructosa a través de la vía de las amilasas endógenas como mecanismo anticongelante natural. Si se introducen estos vegetales directamente en grasas a 180 °C para freír o se asan a 200 °C, los azúcares reductores libres colisionan de manera violenta con los aminoácidos libres (como la asparagina) mediante la reacción de Maillard en milisegundos. Esto desencadena un pardeamiento periférico no homogéneo, notas organolépticas amargas por sobrecaramelización y la peligrosa formación de acrilamida, mientras el interior permanece coloidal y crudo. El protocolo exige someter el tubérculo a un blanqueado previo en agua templada a 65 °C para lixiviar por difusión osmótica el exceso de azúcares libres de la superficie antes del choque calórico graso final.
La presión atmosférica determina directamente la temperatura a la cual el agua entra en transición de fase a vapor (ebullición). A mayor altitud o en frentes meteorológicos de baja presión barométrica estacional, el agua hierve a temperaturas significativamente inferiores a los 100 °C (por ejemplo, a 90-92 °C en zonas montañosas de alta cocina). Dado que la solubilización de las hemicelulosas y protopectinas más rebeldes exige una energía de activación termodinámica vinculada a los enlaces éster que se hidrolizan de forma óptima a partir de los 95 °C, el hervido a gran altitud no logra reblandecer la matriz intercelular de vegetales con madurez tardía, evaporando el agua antes de romper la resistencia del tejido. Se hace obligatorio en estos casos el uso de recipientes hiperbáricos controlados (ollas de presión calibradas) para restaurar la temperatura de hidrólisis necesaria.
Hacia el final del ciclo vegetativo, los vegetales verdes reducen la síntesis de clorofila a favor de pigmentos senescentes y acumulan un mayor tenor de ácidos orgánicos libres en sus vacuolas por estrés ambiental. Cuando se aplica calor, las membranas celulares se vuelven permeables y liberan estos ácidos endógenos directamente sobre el anillo de porfirina de la clorofila restante, acelerando la pérdida del magnesio y convirtiéndola velozmente en feofitina grisácea. La compensación técnica consiste en minimizar el volumen de condensación ácida aplicando una cocción en agua con una microdosis de sales de sodio y potasio alcalinizantes que eleven el medio a un pH estricto de 7.5 a 8.0, reduciendo el tiempo de escaldado a menos de 90 segundos y procediendo a un drenado y abatimiento térmico inmediato en salmuera con infusión de clorofila fresca extraída en frío de hojas ricas en pigmentos tiernos.
Este fenómeno se conoce como sinéresis del tejido vegetal y es consecuencia directa de la lisis proteica y péctica que acompaña a la senescencia celular. En vegetales madurados en exceso, las paredes primarias y la lámina media se hallan prácticamente disueltas por acción metabólica natural; el agua ya no está atrapada por fuerzas capilares de turgencia hidrostática ni inmovilizada en geles macromoleculares de pectina hydration-stable. Al aplicar calor, las membranas celulares desprovistas de soporte estructural experimentan una ruptura generalizada. Si la pieza no se estabiliza térmicamente por debajo de 70 °C o no se le permite un reposo adiabático que equilibre las tensiones mecánicas antes de la sección con cuchillo, el gradiente de presión atmosférica colapsa las cámaras intracelulares rotas, provocando el desangrado masivo del jugo hacia la tabla de corte y dejando una pulpa deshidratada y fibrosa.
Aunque químicamente ambas son polímeros lineales de unidades de beta-D-glucosa unidas por enlaces glucosídicos beta-1,4, la diferencia radica en el grado de polimerización, la cristalinidad y, crucialmente, la lignificación adyacente. En primavera, los tallos jóvenes contienen celulosa primordial amorfa intercalada con abundante hemicelulosa hidratada (xiloglucanos) que es plástica y flexible, susceptible a la plasticidad térmica mediante cocciones húmedas suaves. En invierno, para proteger al vegetal de heladas mecánicas y cargas de viento, la planta deposita lignina —un polímero polifenólico tridimensional hidrofóbico y amorfo altamente complejo— en los intersticios entre las microfibrillas de celulosa. La lignina no se gelatiniza, no se hidroliza con agua caliente ni se disuelve en los rangos térmicos de la gastronomía; un tallo lignificado jamás adquirirá terneza por cocción, por lo que debe ser pelado mecánicamente por debajo del haz vascular periférico.
Los vegetales recolectados en periodos cálidos de verano tienen una tasa de respiración celular intrínseca extremadamente alta (consumo acelerado de O2 y liberación de CO2 y agua metabólica), lo que vacía vertiginosamente sus reservas de azúcares simples si no se cocinan inmediatamente, sustituyendo su dulzor por acidez e incrementando el aire intercelular en sus tejidos. Al saltearlos en una sartén a alta temperatura, ese aire atrapado actúa como un potente aislante térmico que retrasa la conducción de calor hacia el centro mientras que la superficie se quema. Por el contrario, los vegetales de invierno entran en letargo con tasas de respiración mínimas, manteniendo tejidos densos, compactos y saturados de savia fría, lo que genera una conducción de calor rápida y uniforme que requiere sartenes de mayor masa térmica y fuegos moderados para evitar caídas súbitas de temperatura por liberación de vapor denso.
El agua dura con alto contenido de iones de calcio (Ca2+) y magnesio (Mg2+) interactúa iónicamente con los carboxilos libres de las cadenas de ácido galacturónico en la pared celular vegetal. En vegetales tempranos o poco maduros, donde la densidad de pectina sin metilar es reducida, el calcio del agua refuerza positivamente la estructura celular, permitiendo que vegetales que tienden a deshacerse mantengan su integridad física y un mordisco terso. Por el contrario, en vegetales de madurez tardía con desmetoxilación avanzada, el exceso de calcio libre en el agua penetra ávidamente en la lámina media, formando una costra reticulada insoluble de pectato de calcio que endurece irremediablemente el exterior del vegetal, haciéndolo parecer cuero impenetrable mientras el interior puede estar blando. Para productos maduros se debe emplear invariablemente agua desmineralizada, osmotizada o con bajo residuo seco.