En el universo de la alta gastronomía, pocas tragedias culinarias son tan elocuentes y visualmente desoladoras como un vegetal marchito, desprovisto de tersura y sumido en un tono verde oliva terroso que denota negligencia técnica. Aquellos tallos de espárragos flácidos, tirabeques correosos o floretes de brócoli parduzcos que con frecuencia invaden los platos domésticos son el resultado directo de someter la materia vegetal a una cocción empírica descontrolada. El cocinero aficionado suele concebir el hervido como una mera inmersión en agua caliente hasta que el elemento cede mecánicamente al tenedor; sin embargo, para el cocinero de vanguardia, el agua en ebullición es un reactor termodinámico donde cada segundo transcurrido altera irreversiblemente los enlaces de la pectina, las cadenas de celulosa y la estructura molecular de los pigmentos.
El blanqueado enzimático (blanching) trasciende la noción ordinaria de cocer; se trata de una intervención físico-química quirúrgica de choque. Al someter el tejido vegetal a una transferencia de calor ultraveloz en un medio hídrico masivo, logramos tres objetivos biofísicos simultáneos: colapsar y expulsar las microburbujas de aire atrapadas en los espacios intercelulares —revelando la vibrante arquitectura cromática subyacente—, provocar la desnaturalización irreversible de las enzimas destructoras como la polifenoloxidasa, la peroxidasa y la clorofilasa, y ablandar selectivamente las protopectinas de la lámina media sin destruir la integridad celulósica que otorga la codiciada textura crujiente (croquant-tendre). No es magia culinaria ni artesanía intuitiva: es cinemática de fluidos y bioquímica vegetal aplicada con exactitud milimétrica.
Comprender la termodinámica del escaldado y el posterior baño de choque térmico (glacage) emancipa al gastrónomo de la incertidumbre. Ya no se trata de adivinar si los guisantes lágrima, las judías haricots verts o los brotes de salicornia perderán su esencia al entrar en contacto con el fuego, sino de gobernar las leyes del calor específico, el pH del medio acuoso y la fijación del ion magnesio en el núcleo porfirínico de la clorofila. Al dominar los tiempos de inmersión, la densidad osmótica del agua y las transiciones de fase, transformarás cualquier ingrediente silvestre u hortícola en una joya vegetal de porte editorial, elevando la estética y la experiencia sensorial de tu mesa a la cúspide de la elegancia culinaria.
Ficha Técnica & Principio Físico-Químico
Inactivación desnaturalizante de la polifenoloxidasa y clorofilasa, expulsión de gases intercelulares y fijación del ion magnesio en el anillo de porfirina de la clorofila mediante choque térmico controlado.
Media / Precisión Técnica Culinaria
45 segundos a 3 minutos según calibre botánico
Pigmentación verde esmeralda radiante, preservación del 92% de la turgencia celular y retención óptima de micronutrientes termolábiles.
Olla de gran capacidad térmica (acero triple fondo o cobre), termómetro de inmersión digital, araña espumadera de malla fina y bol criogénico con salmuera helada.
Anatomía de la Célula Vegetal y la Fisiología del Pigmento
Para gobernar el comportamiento de un vegetal delicado en el fuego, es perentorio comprender la arquitectura histológica de los tejidos parenquimatosos. A diferencia de las fibras animales, donde el colágeno y la miosina dictan las transformaciones mecánicas, las células vegetales se encuentran confinadas dentro de paredes celulares rígidas compuestas por microfibrillas de celulosa embebidas en una matriz viscoelástica de hemicelulosa y protopectinas. Estas células mantienen una presión hidrostática interna descomunal denominada turgor, sostenida por vacuolas centrales repletas de agua y solutos. Cuando mordemos una vaina de tirabeque o un tallo de espárrago crudo, esa resistencia inicial y la posterior fractura resonante corresponden a la ruptura repentina de estas paredes cargadas a presión.
Entre las células vegetales, no obstante, existen bolsas de gas intersticial microscópicas que actúan como difusores de luz. En estado crudo, este aire intercelular refracta las ondas electromagnéticas, confiriendo a los vegetales verdes una apariencia opaca, casi escarchada o lechosa. Justo en el interior del citoplasma se encuentran los cloroplastos, orgánulos ovoides que resguardan la maquinaria fotosintética del reino verde: las moléculas de clorofila a (verde azulado profundo) y clorofila b (verde amarillento luminoso). Ambas moléculas comparten una estructura simétrica fascinante: un anillo tetrapirrólico hidrófilo conocido como anillo de porfirina, coronado exactamente en su núcleo geométrico por un átomo de magnesio coordinado (Mg²⁺), extendiéndose hacia un extremo una larga cola hidrófoba de fitol.
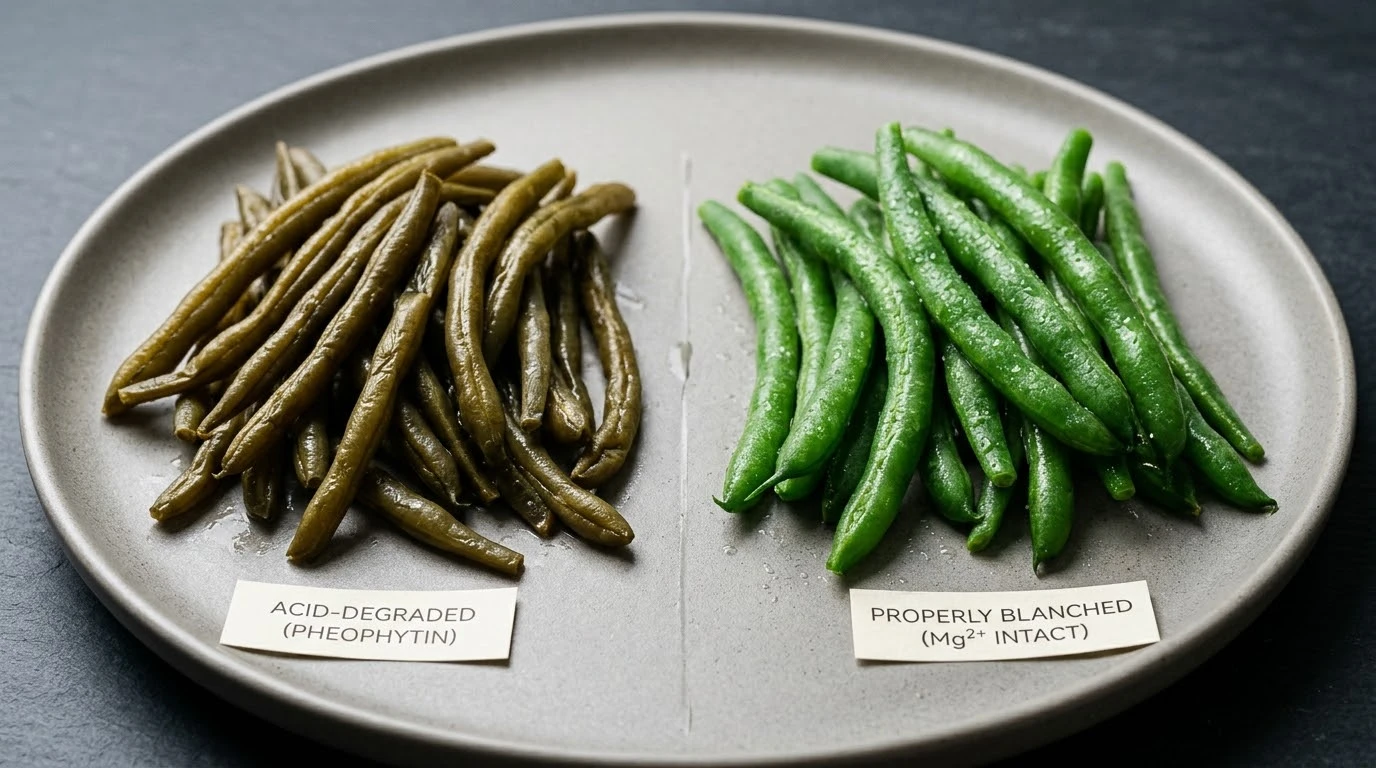
El gran drama botánico en la cocina radica en la fragilidad inherente a este átomo central de magnesio. Si las paredes celulares sufren una degradación desmedida o prolongada bajo temperaturas subóptimas (entre 60 °C y 75 °C), las vacuolas celulares colapsan, liberando una torrente de ácidos orgánicos celulares (como el ácido málico, oxálico y cítrico) hacia el citoplasma. En este entorno ácido descontrolado, dos iones de hidrógeno (H⁺) desplazan con violencia molecular al ion magnesio del anillo porfirínico. La molécula resultante de esta sustitución electroquímica se denomina feofitina, un pigmento químicamente degradado de tonalidad pardusca, verde oliva opaca y apagada, sinónimo inequívoco de sobrecocción y decadencia gastronómica.
La Guerra Enzimática: Desactivación Térmica de Polifenoloxidasas y Clorofilasas
Todo tejido vegetal vivo continúa metabólicamente activo tras la cosecha, respirando a un ritmo que consume lentamente sus carbohidratos solubles y aminoácidos. Entre las proteínas catalizadoras más reactivas que anidan en el parénquima vegetal se encuentran las enzimas oxidativas: la polifenoloxidasa (PPO), la lipoxigenasa (LOX), la peroxidasa (POD) y la temida clorofilasa. Esta última actúa como una tenaza hidrolítica que escinde la cadena fitólica de la clorofila, volviéndola extremadamente soluble en agua y propensa a una degradación acelerada. Por su parte, la lipoxigenasa oxida los ácidos grasos insaturados de las membranas celulares, generando hidroperóxidos volátiles responsables de las notas a 'heno húmedo', cartón rancio y vejez organoléptica.
El propósito cardinal del blanqueado enzimático reside en alcanzar con celeridad fulminante la temperatura crítica de desnaturalización proteica antes de que dichas enzimas generen un daño irreparable. Las proteínas enzimáticas son cadenas polipeptídicas plegadas en conformaciones terciarias termodinámicamente sensibles; a temperaturas superiores a los 82 °C —y de forma instantánea a los 100 °C— los puentes de hidrógeno y los enlaces disulfuro colapsan, la proteína se desenrolla y su sitio activo queda neutralizado para siempre. Este proceso confiere al vegetal una estabilidad química casi perpetua, paralizando los relojes catabólicos que conducen al amarilleamiento y la fermentación interna.
Existe un dilema técnico que desafía al cocinero inexperto: si se introduce el vegetal en agua templada o que pierde el hervor de inmediato, la masa vegetal transitará lentamente por el intervalo térmico de 50 °C a 75 °C. Esta franja es conocida en bioquímica de los alimentos como la 'zona de activación hiperenzimática', un régimen térmico donde enzimas como la clorofilasa no solo no se mueren, sino que multiplican su velocidad catalítica por cuatro. El resultado de un escaldado que arranca en agua tibia o en ollas con escasa inercia calórica es la devastación cromática antes de que el vegetal alcance si quiera el punto de ternura. La desnaturalización debe ser un acto de agresión térmica fulminante.
La Física del Choque Osmótico y la Óptica de la Expulsión de Gases
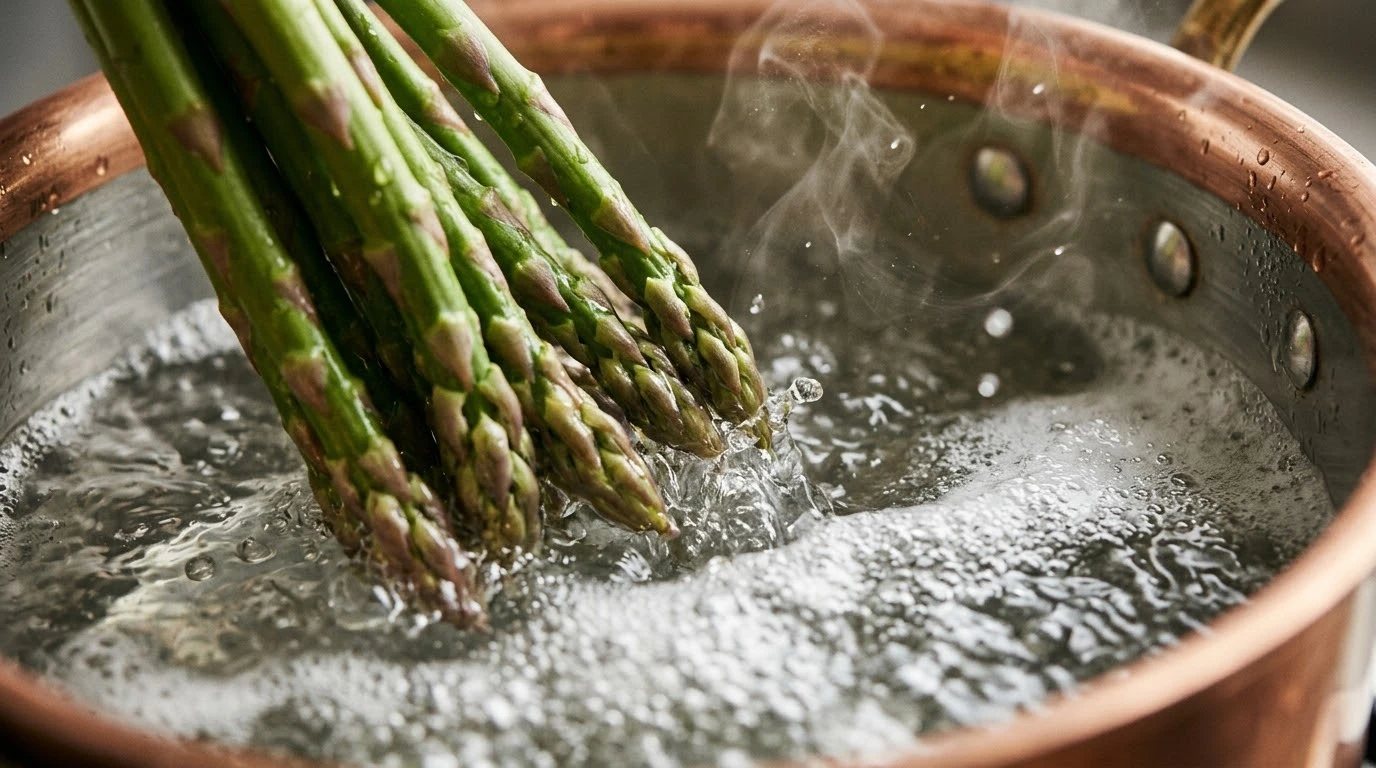
Uno de los momentos más deslumbrantes en la cocina profesional tiene lugar durante los primeros diez a quince segundos tras sumergir un vegetal crudo en agua hirviendo: de pronto, el verde apagado parece encenderse como si recibiera corriente eléctrica interna, transformándose en una esmeralda resplandeciente. Este fenómeno no es atribuible a una síntesis repentina de nuevo pigmento —las células ya no pueden sintetizar clorofila— sino a un fenómeno estrictamente físico de alteración óptica. El choque de calor a 100 °C provoca la expansión súbita de los microgases contenidos en los canales intersticiales entre las paredes celulares de celulosa. Estos gases, al dilatarse rápidamente, rompen la tensión superficial del agua adherida y son expulsados hacia la atmósfera en forma de diminutas microburbujas invisibles.
Al evaporarse y escapar este aire intercelular difusor, el agua de cocción inunda instantáneamente los espacios intersticiales vacíos. El índice de refracción del agua (n \approx 1.33) es mucho más cercano al índice de refracción de las paredes de celulosa y del citoplasma que el del aire (n \approx 1.00). En términos ópticos, el tejido vegetal pierde su opacidad lechosa y se torna translúcido, actuando como una lente convergente que permite a la luz incidir directamente sobre los tilacoides de los cloroplastos sin dispersarse. Vemos, por primera vez, el color puro de la clorofila intacta magnificado por la transparencia acuosa del tejido hidratado.
Sin embargo, este estado de gloria visual es efímero y extraordinariamente frágil. Si la inmersión se prolonga más allá del umbral cinético, las membranas de los cloroplastos se desintegran por completo, permitiendo el contacto íntimo entre los protones ácidos de las vacuolas rotas y el núcleo de magnesio de la molécula verde, reiniciando la degradación a feofitina. El arte del escaldado maestro radica en retirar el alimento en la cresta de esta ola luminosa: el punto exacto donde el aire ha sido purgado, las enzimas han sido aniquiladas, y la acidez intracelular aún no ha logrado protonar la porfirina.
El Medio Acuoso: Termodinámica, Relación de Masa y Regulación de pH
El mayor error que perpetúan los recetarios domésticos es la indicación genérica de 'hervir en agua abundante'. En la cocina molecular y de precisión, el volumen de agua no es una sugerencia de conveniencia, sino una constante termodinámica irrenunciable. La masa térmica del agua (Cp \approx 4.184 \text{ J/g K}) debe superar de forma aplastante la masa y el calor específico del vegetal introducido. La regla de oro inquebrantable de MomenFress dicta una proporción mínima de 10 a 1: diez litros de agua hirviendo vigorosamente por cada kilogramo de masa vegetal procesada (o un litro por cada cien gramos).
Cuando se vierte un lote de vegetales a temperatura ambiente (20,^{\circ}\mathrm{C}) en una cazuela que contiene apenas el doble de su volumen en agua, el calor latente se drena de inmediato; la temperatura del medio se desploma instantáneamente hasta los 70 °C u 80 °C, deteniendo la ebullición turbulenta. El vegetal queda atrapado en esa mortífera meseta de catálisis enzimática durante dos o tres minutos cruciales, sangrando solutos hidrosolubles y empalideciendo. Por el contrario, con una proporción de 10:1 y una fuente de energía de alto poder calorífico (inducción masiva o quemadores de alta potencia térmica), el agua reanuda su ebullición caótica en menos de diez a quince segundos, garantizando un perfil de calentamiento vertical.
Asimismo, el pH del medio acuoso desempeña un papel de árbitro supremo en la conservación del color y la estructura de la textura. La clorofila es infinitamente más estable en un medio ligeramente alcalino (pH \approx 7.5 - 8.2) que en uno ácido (pH < 6.0). Aunque en el siglo XIX los cocineros recurrían al bicarbonato de sodio para forzar la alcalinidad, la gastronomía moderna desaconseja tajantemente su uso indiscriminado: los iones sodio en medio fuertemente básico degradan de forma prematura las pectinas por beta-eliminación, transformando el vegetal en una papilla insustancial y viscosa con sabor amargo. La solución técnica reside en asegurar un agua neutra o sutilmente mineralizada y mantener la cazuela rigurosamente destapada durante todo el hervor, permitiendo que los ácidos orgánicos volátiles expulsados por la planta se evaporen con el vapor hacia el extractor en lugar de condensar en la tapa y gotear nuevamente sobre el caldo, autoacidificando el baño.
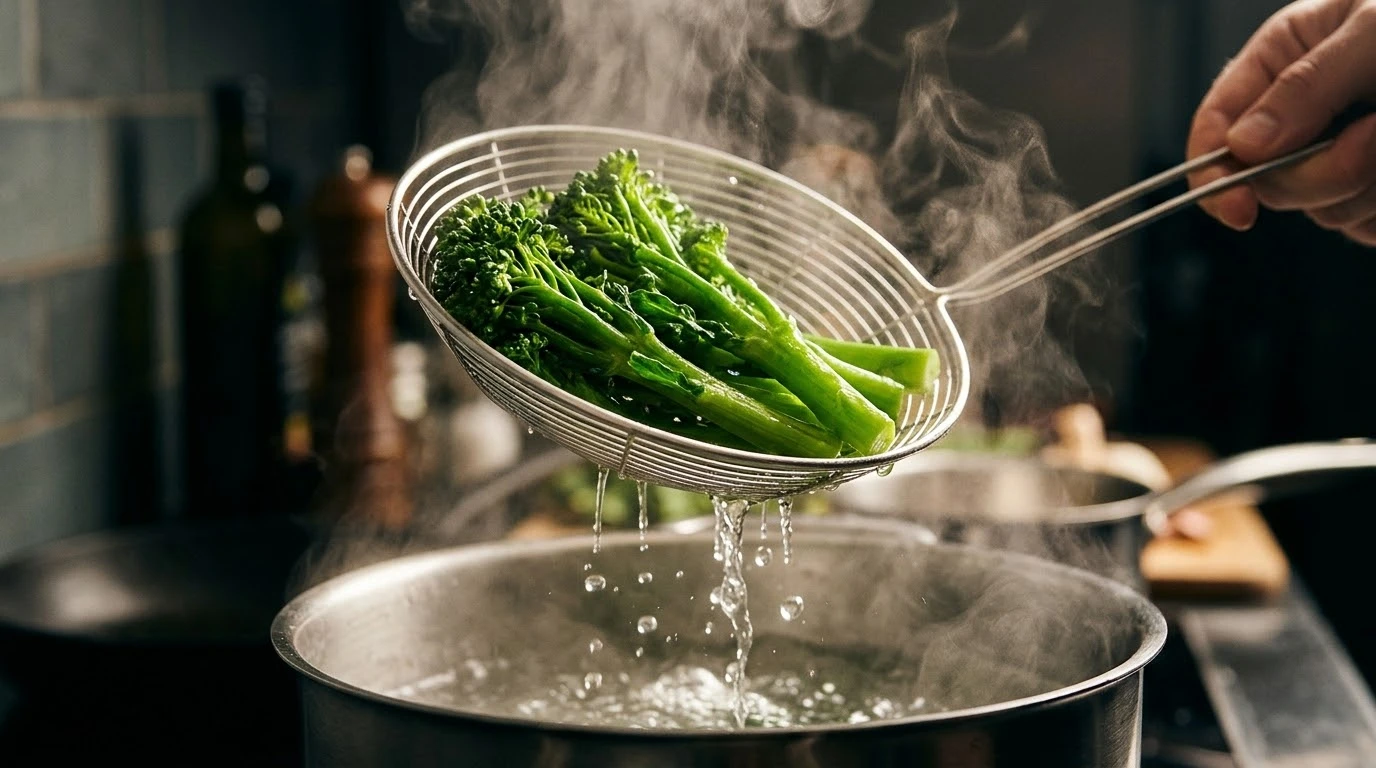
El Choque Criogénico: Termocinética del Glacage Inmediato
Retirar los vegetales del agua hirviendo mediante una araña de alambre es solo la mitad del protocolo termodinámico; la verdadera maestría se dirime en la velocidad del enfriamiento. Muchos cocineros cometen el disparate técnico de escurrir los vegetales calientes en un colador y dejarlos enfriar a temperatura ambiente. En física aplicada a los alimentos, este error se conoce como 'cocción residual' o inercia térmica. La masa interior del vegetal, cargada de calor a 98 °C, continúa conduciendo energía hacia el exterior, autodestruyendo su estructura celulósica y feofitinizando los pigmentos durante largos minutos mientras reposa a la vista del comensal.
Para detener este frente térmico de forma implacable se recurre al glacage o choque criogénico: la inmersión inmediata en un baño de agua con hielo y salmuera a 0 °C. Este baño debe contener una proporción equilibrada de agua helada y cubos de hielo flotantes; una cubeta repleta de hielo seco o cubos sin agua es inútil, pues el aire circundante actúa como un aislante térmico deficiente. Es el agua líquida a temperatura de congelación la que proporciona el coeficiente de transferencia térmica por convección líquida requerido para absorber instantáneamente los julios térmicos retenidos en los tejidos del vegetal.
No obstante, este paso encierra un peligro insidioso que pocos manuales revelan: la sobreextracción osmótica. Dejar los vegetales sumergidos en el agua helada durante media hora o hasta que el servicio comience es un crimen contra el sabor. Al haberse alterado la permeabilidad selectiva de las membranas celulares por el calor previo, el agua pura del baño penetra por gradiente osmótico, diluyendo azúcares, ácidos fólicos y sales minerales hidrosolubles, al tiempo que lava los aromas volátiles. El tiempo de permanencia en el baño de hielo debe ser exactamente igual al tiempo transcurrido en el agua hirviendo. Ni un segundo más. Tan pronto como el núcleo del vegetal alcanza los 4 °C, debe ser retirado y extendido sobre paños de lino o papel secante estéril.
La Salinidad Dinámica: Osmolalidad y Fijación de Textura
¿Por qué es imperativo que el agua del blanqueado esté generosamente salada, asemejándose a la salinidad del agua de mar (30 a 35\text{ g} de sal marina por cada litro de agua)? La respuesta no radica únicamente en sazonar el vegetal desde su interior —lo cual es un beneficio sensorial secundario fundamental— sino en salvaguardar la turgencia celular a través de equilibrios físico-químicos de presión osmótica. Si escaldamos vegetales en agua totalmente desmineralizada o dulce, la diferencia de potencial químico empuja violentamente el agua hacia el interior de las células mediante endósmosis, provocando que las paredes celulares se hinchen de forma asimétrica y estallen antes de que las protopectinas alcancen su gelatinización elástica.
Al conferir al agua una concentración de cloruro sódico del 3% al 3.5%, creamos un entorno osmótico equilibrado o ligeramente hipertónico respecto al citoplasma celular. Esto evita el estallido masivo de las vacuolas y retarda la solubilización de las hemicelulosas estructurales. Asimismo, los iones de sodio (Na⁺) interactúan electrostáticamente con los grupos carboxilo negativamente cargados de las pectinas en la lámina media, reduciendo las repulsiones moleculares entre cadenas polisacáridas y estabilizando mecánicamente la firmeza del tejido.
Adicionalmente, el agua salada posee una temperatura de ebullición marginalmente superior debido al aumento ebulloscópico, lo que permite transferir energía térmica a una tasa ligeramente más elevada sin necesidad de aumentar la presión manométrica. El resultado directo en boca tras un blanqueado con salinidad rigurosa es un bocado de resistencia elástica inmaculada: un mordisco crujiente pero exento de notas leñosas o astillosas, con una conductividad sápida que hace innecesario el uso excesivo de aderezos posteriores.
Cronotablas Culinarias de Precisión según Morfología Botánica
Cada estructura vegetal presenta un coeficiente de conductividad térmica distinto en función de su densidad celular, su contenido en lípidos superficiales (como la cutícula cerosa de las hojas) y su diámetro transversal. No es admisible unificar los tiempos de escaldado bajo una regla empírica universal; hacerlo equivale a condenar al desastre a los elementos más delicados o dejar crudo y fibroso el núcleo de los más robustos. A continuación, se presenta la taxonomía cronométrica de precisión para los vegetales verdes más emblemáticos de la alta gastronomía, considerando agua en ebullición turbulenta a 100 °C a nivel del mar y enfriamiento criogénico simétrico:
- Micro-vegetales y Hojas Prístinas (Espinaca baby, acedera silvestre, berro de agua): 10 a 20 segundos de inmersión. Requieren apenas una zambullida guiada con la espumadera para purgar gases y estabilizar clorofilas sin disolver la frágil monocapa epidérmica.
- Inflorescencias Complejas (Floretes de brócoli, Romanesco, brocolini): 90 a 120 segundos. Las inflorescencias atrapan enormes volúmenes de aire en sus botones florales inmaduros. La penetración del calor debe equilibrar el grosor del tallo fibroso con la vulnerabilidad extrema de las cabezuelas.
- Tallos Cilíndricos y Gemas (Espárragos verdes finos, tallos de bimi, puntas de lúpulo): 60 a 90 segundos para calibres inferiores a 8 mm; 120 a 150 segundos para espárragos de calibre superior a 14 mm.
- Leguminosas Verdes Frescas (Guisantes tiernos, habitas repeladas, tirabeques): 30 a 45 segundos para el tirabeque y el guisante lágrima; 60 a 75 segundos para habitas medianas. El objetivo es ablandar la cáscara externa de celulosa sin inducir la gelatinización harinosa de los almidones internos.
Para las judías verdes francesas (haricots verts extra finos), el cronómetro no debe sobrepasar bajo ninguna circunstancia los 2 minutos y 30 segundos. El criterio analítico para determinar el final de la cocción es la prueba sensorial táctil y auditiva: al extraer una muestra del agua hirviendo y morderla transversalmente, debe ofrecer una rotura limpia con un sonido nítido (snap), pero sin resistencia coriácea en la hiladura lateral. Dominar estas fracciones temporales es el sello distintivo del verdadero chef de brigada.
Secretos de Ejecución & Claves Maestras del Truco
Ratio calórico inquebrantable de 10:1: Emplea sin excepciones un mínimo de 10 litros de agua por cada kilogramo de vegetales para garantizar que la ebullición no decaiga más de 2 °C tras la inmersión.
Salinidad osmótica marina: Añade entre 30 y 35 g de sal marina no yodada por cada litro de agua; sella la estructura de las pectinas, fija el sabor y evita la hinchazón osmótica de los tejidos celulares.
Mantenimiento abierto y desgasificación activa: Jamás coloques la tapa sobre la cazuela durante el blanqueado. Es imprescindible facilitar la libre evaporación de los ácidos orgánicos volátiles para que no acidifiquen el caldo por condensación.
Simetría temporal criogénica estricta: El tiempo en el baño de agua con hielo y salmuera debe ser exactamente idéntico al tiempo en agua hirviendo. Retira y seca inmediatamente sobre paños para evitar la extracción de solutos y la dilución aromática.
Preguntas y Respuestas Frecuentes (10 Claves)
Respuestas a las preguntas y aspectos técnicos más consultados sobre esta investigación gastronómica.
Se debe a la formación de feofitina. Las altas temperaturas prolongadas rompen las vacuolas celulares y liberan ácidos orgánicos nativos. Los iones de hidrógeno (H⁺) de estos ácidos atacan la clorofila y desplazan el átomo central de magnesio (Mg²⁺) de su anillo porfirínico, transformándolo irreversiblemente en feofitina a y b, de color marrón oliváceo.
En la alta gastronomía moderna está contraindicado para vegetales finos. Aunque el bicarbonato eleva el pH e impide la formación de feofitina (preservando un verde fosforescente), acelera la despolimerización alcalina de las hemicelulosas y pectinas mediante una reacción de beta-eliminación. Esto convierte el vegetal en una masa fofa, papilla viscosa y le confiere un regusto jabonoso y metálico.
Aunque a menudo se usan como sinónimos, en el vocabulario técnico culinario el escaldado suele referirse a una inmersión ultracorta (de 10 a 30 segundos) con el propósito mecánico de pelar pieles (tomates, melocotones) o higienizar superficies. El blanqueado enzimático persigue una meta metabólica y físico-química: desactivar permanentemente enzimas específicas (lipoxigenasa, clorofilasa) y fijar pigmentos y texturas.
Porque el calor se transfiere por conducción y convección con mucha mayor eficiencia a través de un medio líquido que gaseoso. Los cubos de hielo flotantes en agua mantienen la mezcla a una temperatura constante de transición de fase (0,^{\circ}\mathrm{C}). Si solo hubiera hielo sin líquido, los espacios de aire circundantes actuarían como aislantes térmicos, ralentizando el enfriamiento.
Sí, de hecho es el paso técnico obligatorio antes de la ultracongelación doméstica o industrial. Al haber neutralizado la polifenoloxidasa y la lipoxigenasa durante el blanqueado, el vegetal congelado no desarrollará sabores rancios, olores a paja seca ni perderá su color durante meses de almacenamiento en el congelador.
Nunca mediante una segunda ebullición prolongada. El método de los grandes restaurantes consiste en un salteado ultrarrápido al minuto (glacer à blanc) con una emulsión de mantequilla francesa derretida, una gota de caldo vegetal y sal en escamas durante 45 segundos, o bien una regeneración en vapor seco a 85 °C por un minuto escaso.
Para vegetales tuberosos o raíces, el vapor es excelente porque minimiza el lixiviado de nutrientes. Sin embargo, para vegetales verdes finos ricos en clorofila, el agua en ebullición sumergida sigue siendo superior: la inmersión líquida desgasifica los espacios intercelulares diez veces más rápido y diluye inmediatamente los ácidos emitidos por el vegetal, impidiendo que el vapor circundante concentre acidez superficial.
Las hojas de espinaca contienen más de un 90% de agua y un enorme volumen de aire en su esponjoso tejido parenquimatoso. El calor desnaturaliza al instante las proteínas de la membrana celular y evacua ese aire en menos de 15 segundos, colapsando el volumen foliar a una décima parte de su tamaño original.
Se produce una pérdida masiva por lixiviación osmótica. Aunque las enzimas estén inactivas, las membranas celulares quedaron porosas por el choque térmico; si el vegetal permanece 20 o 30 minutos flotando en agua helada, sus azúcares naturales, minerales hidrosolubles y notas aromáticas se difundirán hacia el baño exterior, dejando un vegetal insípido y 'aguado'.
Rotundamente sí. A mayor altitud, la presión atmosférica es inferior y el punto de ebullición del agua desciende (por ejemplo, a 2.000 metros hierve a unos 93,^{\circ}\mathrm{C}). A esa temperatura la inactivación enzimática es más lenta y la energía calórica es menor, por lo que es necesario prolongar el tiempo de inmersión entre un 20% y un 35% dependiendo del calibre del vegetal.