Clorofilasa hidrolítica

(EC 3.1.1.14 / Clorofila clorofilidohidrolasa)

Transcripción IPA: [klo.ɾo.fiˈla.sa i.ðɾoˈli.ti.ka]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

La clorofilasa hidrolítica (clorofila clorofilidohidrolasa, EC 3.1.1.14) es una glicoproteína globular intrínseca unida a las membranas tilacoidales del cloroplasto con función catalítica de serina esterasa hidrolasa. Su función biomolecular primordial consiste en catalizar la escisión hidrolítica irreversible del enlace carboxi-éster situado en la posición C17(3) del anillo de propionato del macrociclo tetrapirrólico de la clorofila a y b, separando el anillo hidrófilo de clorofilida (que conserva el ion Mg²⁺ quelado) de la cadena apolar lipófila hidrofóbica de fitilo (alcohol diterpénico C₂₀H₃₉OH).

En gastronomía molecular y ciencia de alimentos, su modulación enzimática altera drásticamente la polaridad de las dispersiones culinarias. Al despojar al pigmento de su cola hidrofóbica de fitilo, transforma un cromóforo intrínsecamente insoluble en agua en una clorofilida hidrosoluble y altamente reactiva. Si la clorofilasa es activada controladamente mediante perfiles de temperatura moderada en maceraciones o trituraciones vegetales, el verde se vuelve susceptible a teñir fases acuosas límpidas, pero si no se inactiva oportunamente, deja el macrociclo vulnerable a un rápido ataque por protones y desmetalación espontánea.

II. Etimología e Historia Gastronómica

La existencia de esta enzima fue reportada formalmente en 1913 por Richard Willstätter y Arthur Stoll durante sus monumentales investigaciones sistemáticas sobre la asimilación del carbono y la purificación de pigmentos vegetales fotosintéticos. Los investigadores observaron que suspensiones de hojas maceradas en solventes orgánicos polares hidrolizaban la clorofila rindiendo clorofilida libre y fitol en ausencia de calor extremo, atribuyendo el fenómeno a un catalizador biológico termolábil específico que denominaron 'Chlorophyllase'.

Posteriormente, a lo largo de las décadas de 1960 y 1970, bioquímicos vegetales como Holden, Drazic y Terpstra purificaron la enzima a partir de plantas superiores como Chenopodium album y Citrus sinensis, desentrañando su naturaleza dependiente de detergentes y su topología en las membranas tilacoides. En la historia contemporánea de la vanguardia culinaria, el entendimiento de su ventana óptima de termorresistencia (60-82 °C) permitió a pioneros como Ferran Adrià y el equipo técnico de elBulli perfeccionar procesos de clarificación de clorofila líquida y jugos verdes hiperestables sin turbidez oleosa ni coalescencia lipídica.


III. Ciencia Culinaria y Bioquímica

La clorofilasa hidrolítica es una enzima anclada en la membrana que posee un peso molecular que oscila entre 30 y 45 kDa según la especie botánica (con frecuencia tetramérica in vivo). Funciona a través de una tríada catalítica típica de serina esterasas (Ser-His-Asp), donde el grupo hidroxilo activado de la serina realiza un ataque nucleofílico sobre el carbono carbonílico del enlace éster C17(3) entre la propil-clorofila y el fitol. El pH óptimo de esta catálisis enzimática se sitúa estrictamente en el intervalo neutro a ligeramente alcalino de pH 7.0 a 8.5, perdiendo actividad drásticamente a pH < 5.5 debido a la desnaturalización conformacional del sitio activo.

Cinéticamente, la enzima exhibe una temperatura de activación paradójica: permanece inactiva o latente dentro del cloroplasto intacto, pero tras la alteración mecánica celular se activa con vigor dentro del rango de 60 °C a 75 °C, con una temperatura de desnaturalización térmica irreversible (Tm) que supera los 82-85 °C bajo condiciones normales de fuerza iónica. Su constante de Michaelis-Menten (Km) frente a clorofila a oscila en torno a 10-25 μM. En medios bifásicos agua/solvente orgánico (o agua/lípido celular), la adición de pequeñas cantidades de acetona o lípidos libres (0.5-2%) incrementa alostéricamente su velocidad máxima (Vmax) al solubilizar el sustrato apolar para permitir el acceso al sitio catalítico hidrófobo.

IV. Protocolo de Ejecución y Precisión Técnica

Para un aislamiento funcional y aprovechamiento catalítico de la clorofilasa en la producción de 'jugo verde hidrosoluble puro' de espinaca sin turbidez grasa, se procede al pesaje analítico de 500 g de hojas frescas desvenadas. Las hojas se suspenden en 500 mL de solución tampón Tris-HCl 50 mM (pH 8.0) enriquecida con cloruro potásico (KCl 0.1 M) y se trituran en vaso refrigerado. La masa celular resultante se somete a activación enzimática selectiva sumergiéndola en un baño termostático calibrado con recirculación a 68.0 °C (±0.1 °C) durante exactamente 8 minutos, monitoreando el pH con electrodo de penetración para mantenerlo en 7.8 mediante microadiciones de NaOH 0.1 M.

Finalizado el periodo catalítico (donde la clorofilasa ha desesterificado más del 70% del fitol sin desnaturalizarse por calor), se traslada la dispersión de inmediato a un baño a 90 °C durante 60 segundos para inactivar letalmente la enzima antes de que actúen las peroxidasas o lipoxigenasas, seguido de un enfriamiento criogénico a 2 °C. La solución se somete a centrifugación a 8.000 × g durante 10 minutos a 4 °C para decantar la pulpa insoluble y la cadena de fitilo hidrofóbica que coalescen en el pellet, recuperando un sobrenadante translúcido y brillante cargado de clorofilida soluble con absorbancia cuantificada a 660 nm mediante espectrofotómetro digital.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Operar la maceración a temperaturas subóptimas prolongadas entre 45 °C y 55 °C a pH natural ligeramente ácido (pH 5.8-6.2), lo que activa parcialmente la enzima pero simultáneamente permite la entrada masiva de protones, generando feoforbiba (clorofilina desmetalada y sin fitilo) que precipita como un lodo pardo oscuro totalmente inservible.

Error #2

Blanquear a temperatura de esterilización por encima de 85 °C desde el primer instante creyendo conservar el pigmento, lo que desnaturaliza la clorofilasa en milisegundos e impide la solubilización acuosa del colorante verde, dejando la clorofila anclada al fitilo y atrapada en membranas insolubles.

Error #3

Falta de inactivación térmica final: dejar el preparado enfriar lentamente después de los 68 °C, permitiendo que la clorofilasa residual siga operando mientras el pH decae, desestabilizando coloidalmente la matriz y facilitando reacciones de pardeamiento enzimático adyacentes por polifenoloxidasas residuales.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Coacervación compleja

Coacervación compleja

[ko.a.seɾ.βaˈsjon komˈple.xa]

La coacervación compleja es un fenómeno termodinámico de separación asociativa de fases líquido-líquido que ocurre espontáneamente en soluciones que contienen dos o más biopolímeros hidrófilos con cargas netas opuestas (típicamente una proteína anfótera y un polisacárido aniónico). El sistema se separa en dos fases líquidas inmiscibles en equilibrio: una fase densa, viscosa y concentrada en el complejo macromolecular denominada 'coacervado' (o fase coacervada), y una fase acuosa sobrenadante altamente diluida, prácticamente desprovista de polímeros. En la gastronomía de vanguardia y la biofísica de texturas, la coacervación compleja constituye el mecanismo biofísico de referencia para la microencapsulación sinérgica de moléculas aromáticas volátiles, aceites esenciales termosensibles y lípidos hidrófobos, protegiéndolos contra la oxidación y degradación térmica. Asimismo, modula de manera determinante la astringencia, la untuosidad y la sensación en boca (mouthfeel) de emulsiones fluidas, néctares y salsas mediante el control micrométrico de gotas suspendidas de coacervado que mimetizan la lubricidad de las partículas de grasa sin aportar densidad calórica.

Coeficiente de Partición

Coeficiente de Partición

[ko.e.fiˈθjen.te ðe paɾ.tiˈθjon / loɡ pe]

El coeficiente de partición (comúnmente expresado como P o su logaritmo decimal Log P, o específicamente como el coeficiente de partición octanol-agua K_ow) es una constante físico-química adimensional que mide el equilibrio de concentración de un soluto no ionizado entre dos fases líquidas inmiscibles en estado de equilibrio termodinámico. Representa cuantitativamente la lipofilia o hidrofobicidad relativa de una especie química; un valor de Log P positivo y elevado denota un soluto marcadamente apolar y lipófilo que prefiere solvatarse en la fase orgánica, mientras que un Log P negativo indica un soluto netamente hidrófilo y polar afin a los dominios acuosos. En la ciencia gastronómica de vanguardia, el coeficiente de partición rige de manera inexorable la cinética de liberación de los compuestos bioactivos, pigmentos y moléculas de sabor entre las matrices alimentarias lipídicas y acuosas (emulsiones O/W o W/O). Dicta si una especia, un aceite esencial o un agente colorante difundirá primordialmente hacia los glóbulos grasos de una salsa o si permanecerá en el suero lácteo acuoso, controlando la persistencia retronasal, la velocidad de disolución lingual y la percepción de astringencia o dulzor.

Cristales sub-alfa

Cristales sub-alfa

[kɾisˈta.les subˈal.fa]

Los cristales sub-alfa (sub-α, también referidos en la literatura técnica como formas γ o fases intermedias de súper-enfriamiento criogénico) constituyen un estado estructural altamente metaestable y transitorio en matrices de triacilgliceroles. Esta fase ocurre exclusivamente cuando una grasa fundida es expuesta a velocidades de enfriamiento hiper-rápidas (superiores a 50-100 °C/min) hasta temperaturas criogénicas inferiores a -20 °C o cercanas a la temperatura de transición vítrea (Tg). Estructuralmente, presentan un empaquetamiento lamelar con cadenas hidrocarbonadas prácticamente congeladas en un estado de desorden pseudo-amorfo. En la gastronomía hipermodernista y el tratamiento criogénico de lípidos (mediante inmersión directa en nitrógeno líquido a -196 °C o el uso de rotores criogénicos como el Pacojet en combinación con sales refrigerantes), la fase sub-alfa representa la frontera física donde el crecimiento cristalino es anulado cinéticamente por la viscosidad extrema del medio. Los alimentos grasos procesados en estas condiciones presentan una ausencia casi total de sensaciones granulosas al paladar, fundiendo en boca con una rapidez termodinámica instantánea debido al minúsculo tamaño de los dominios ordenados (escala manométrica < 100 nm).

Cristalización vítrea

Cristalización vítrea

[kɾis.ta.li.saˈsjon ˈbi.tɾe.a]

La vitrificación o estado vítreo es un estado termodinámico metaestable de no-equilibrio en el cual un fluido superenfriado o una solución de carbohidratos concentrada experimenta un incremento exponencial de su viscosidad cinética (>10¹² Pa·s), inmovilizando el desorden molecular traslacional sin adoptar una red periódica cristalina tridimensional. A diferencia de la cristalización estricta (que implica nucleación y crecimiento ordenado con calor latente de fusión), la transición vítrea ocurre a una temperatura crítica (Tg) dependiente de la plasticidad del solvente, consolidando una fase sólida amorfa isotrópica, transparente y frágil. En la alta gastronomía molecular, el control de este estado permite la génesis de vidrios de azúcar, encapsulaciones bioactivas, crujientes liofilizados y caramelos de alta densidad sin recristalización indeseada. Cuando el sistema supera la temperatura de transición vítrea (T > Tg) por absorción higroscópica de vapor de agua (aumento de la actividad de agua, aw) o por elevación térmica, la viscosidad cae abruptamente según la cinética de Williams-Landel-Ferry (WLF), activando la movilidad rotacional del agua plastificante, la pegajosidad interfacial (stickiness) y la eventual cristalización catastrófica del soluto que destruye la textura vítrea característica.

Cruz de Malta

Cruz de Malta

[ˈkɾuθ ðe ˈmal.ta]

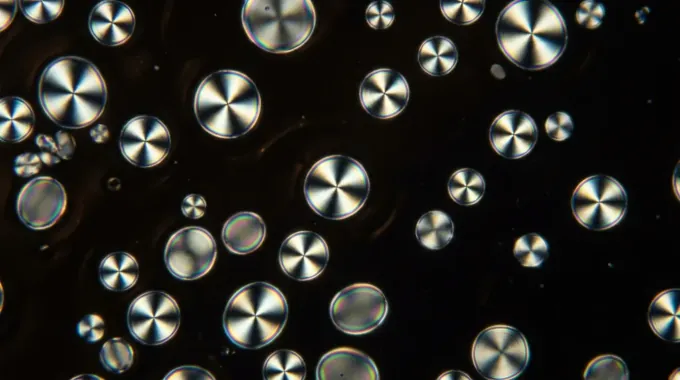
Patrón óptico interferencial de extinción cruciforme característico observado mediante microscopía óptica de polarización (PLM) en gránulos nativos de almidón intactos. Este fenómeno es el resultado directo de la birrefringencia positiva intrínseca exhibida por el empaquetamiento radial y altamente ordenado de las dobles hélices de amilopectina, las cuales configuran una estructura semicristalina cuasi-esférica con anisotropía óptica pronunciada. En gastronomía molecular y ciencia de los alimentos, la desaparición progresiva o súbita de la cruz de Malta define con absoluta exactitud analítica el rango de temperatura de gelatinización (T_o, T_p, T_c, típicamente entre 55 °C y 75 °C según el origen botánico). Su pérdida irreversible marca el colapso del orden mesomorfo y la transición de fase vítrea-cristalina a un gel amorfo viscoelástico, alterando radicalmente la viscosidad cinemática, la transparencia coloidal y la textura final del sistema alimentario.

Enlaces de hidrógeno

Enlaces de hidrógeno

[enˈlaθes ðe iˈðɾoχeno]

El enlace de hidrógeno es una interacción electrostática atractiva dipolo-dipolo no covalente que se establece entre un átomo de hidrógeno unido covalentemente a un elemento altamente electronegativo (típicamente oxígeno, nitrógeno o flúor) y un par de electrones solitarios de otro átomo electronegativo adyacente. En sistemas bioalimentarios acuosos, presenta una longitud de enlace promedio de 0.17 a 0.20 nm y una energía de disociación que oscila entre 8 y 40 kJ/mol (2 a 10 kcal/mol), situándose en una magnitud intermedia que otorga una extrema plasticidad dinámica a las macromoléculas nativas. En gastronomía de vanguardia y física de polímeros culinarios, los enlaces de hidrógeno rigen la viscoelasticidad de geles termorreversibles (como agar-agar, gelatina y almidón retrogradado), la hidratación macromolecular y la estabilización estructural secundaria de proteínas (hélices alfa y láminas beta). Su rotura cooperativa por calor por encima de transiciones conformacionales específicas conduce a la fluidificación térmica de matrices coloidales, mientras que su reconstitución durante el atemperado o enfriamiento controla fenómenos críticos como la gificación elástica, la viscosidad intrínseca y la retención neta de agua libre en hidrogeles.