Coagulación por renina

(Quimosina EC 3.4.23.4 / Escisión específica Phe105-Met106)

Transcripción IPA: [ko.a.ɣu.laˈsjon poɾ reˈni.na]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

La coagulación enzimática mediada por renina (quimosina) es una transición de fase sol-gel inducida proteolíticamente, caracterizada por la escisión selectiva del enlace peptídico fenilalanina 105 - metionina 106 de la kappa-caseína (κ-caseína) en la periferia de las micelas de caseína bovina (peso molecular aparente de 30 a 300 kDa). Esta hidrólisis catalítica elimina el macropeptídeo hidrofílico C-terminal glicosilado (caseinoglicomacropéptido, residuos 106-169), anulando la repulsión electrostática y el impedimento estérico que estabilizan la suspensión coloidal de la leche cruda o pasteurizada.

Como resultado biofísico, el potencial zeta de la micela se reduce desde aproximadamente -15 a -20 mV hasta valores cercanos a -5 mV, permitiendo que las fuerzas atractivas de Van der Waals y las interacciones hidrofóbicas desestabilicen el sistema. A temperaturas fisiológicas (>18 °C, óptimo de 30 a 36 °C) y en presencia de iones calcio divalentes libres (Ca²⁺ > 1,5 mM), las micelas desnudas colisionan e interaccionan formando un retículo tridimensional viscoelástico estructurado, el cual ocluye glóbulos grasos y fase acuosa con una firmeza de gel superior y menor tendencia a la sinéresis espontánea en comparación con los cuajos puramente ácidos.

II. Etimología e Historia Gastronómica

El uso del cuajo animal para solidificar la leche se remonta al Neolítico y se menciona explícitamente en la Ilíada de Homero (siglo VIII a.C.), donde se describe el jugo de higuera (ficina) y el estómago de rumiante lactante para cuajar leche. Sin embargo, la formalización mecanicista no llegó hasta 1874, cuando el químico danés Christian Hansen purificó la quimosina a partir del abomaso de terneros lactantes, comercializando el primer preparado enzimático estandarizado que sentó las bases de la quesería industrial analítica.

En la segunda mitad del siglo XX, investigadores como David Green y Douglas Dalgleish aplicaron la microscopía electrónica de criotransmisión (Cryo-TEM) y la dispersión dinámica de luz (DLS) para elucidar la arquitectura del 'cepillo peludo' de la κ-caseína. En la gastronomía de vanguardia contemporánea, Ferran Adrià, Heston Blumenthal y los laboratorios de Basque Culinary Center adoptaron el control termocinético de la renina recombinante (producida por Kluyveromyces lactis) para sintetizar cuajadas enzimáticas ultrasedosas, texturas semilíquidas de leche de oveja y texturas lácticas de descompresión controlada servidas a temperatura de degustación de 38 °C sin fractura de la matriz micelar.


III. Ciencia Culinaria y Bioquímica

El proceso se rige por una cinética bifásica: la fase primaria enzimática y la fase secundaria coloidal. En la fase primaria, la quimosina (endopeptidasa aspártica con dos residuos catalíticos Asp32 y Asp215, peso molecular aproximado de 35,6 kDa) se une con afinidad submicromolar al sustrato. La hidrólisis específica del enlace Phe105-Met106 ocurre a pH óptimo de 5,8 a 6,4, con una energía de activación de hidrólisis de aproximadamente 40 a 50 kJ/mol. La reacción sigue una cinética de Michaelis-Menten clásica, donde la estabilidad micelar colapsa de forma crítica cuando se ha hidrolizado más del 85-90% de la κ-caseína superficial.

La fase secundaria se inicia de manera espontánea por encima de una temperatura umbral estricta de 18 °C, exhibiendo una dependencia extrema de la temperatura con un Q10 superior a 10 y una energía de activación de agregación (ΔG‡) que supera los 150 kJ/mol, lo que evidencia que la agregación es impulsada por un incremento de entropía hidrofóbica compensada por entalpía (ΔH > 0). Los iones de calcio libre (Ca²⁺) actúan como puentes electrostáticos divalentes entre los grupos carboxilato (Glu, Asp) y fosfoserina (SerP) desprotegidos de las para-κ-caseínas y αs1/β-caseínas expuestas. Las mediciones reológicas revelan que el módulo de almacenamiento elástico (G') supera al módulo de pérdida viscoso (G'') en el punto de gelificación (tg), escalando asintóticamente hasta alcanzar mesetas elásticas de entre 50 y 300 Pa según el contenido de materia grasa y proteína láctea.

IV. Protocolo de Ejecución y Precisión Técnica

1. Estandarización del sustrato y activación catiónica: Calentar en baño termostático con recirculación continua leche entera ultra-fresca (o pasteurizada a baja temperatura, HTST 72 °C por 15 s; nunca UHT) a 32,5 °C ± 0,2 °C. Medir el pH inicial con pH-metro digital provisto de compensación automática de temperatura (ATC), asegurando un valor de 6,55 a 6,60. En caso de leche pasteurizada industrial con depleción de calcio iónico soluble, dosificar cloruro cálcico anhidro (CaCl₂) de grado alimentario a razón de 0,20 g/kg (200 ppm), homogeneizando durante 120 s a 150 rpm para restablecer la fuerza iónica libre.

2. Inoculación enzimática y monitorización reológica: Diluir quimosina recombinante pura (título 1000 IMCU/mL) en agua desionizada a 20 °C en proporción 1:10 inmediatamente antes de su adición. Dosificar exactamente 0,035 mL de solución diluida por litro de leche (equivalente a 35 IMCU/L) bajo agitación laminar suave durante 60 s; detener de inmediato toda turbulencia hidrodinámica. Mantener la suspensión en reposo cinético absoluto dentro del baño termostático a 32,5 °C durante 30 a 35 minutos. El punto de corte óptimo se determina mediante reometría oscilatoria o prueba instrumental de ruptura por tracción superficial cuando el módulo elástico G' alcanza ≥ 80 Pa.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Inoculación de la enzima en leche tratada térmicamente a temperaturas superiores a 75 °C (UHT o pasteurización prolongada): la formación del complejo irreversible por enlace disulfuro entre la β-lactoglobulina desnaturalizada y la κ-caseína impide estéricamente el anclaje de la quimosina en Phe105-Met106, provocando una ausencia total de gelificación o un coágulo flóculo-esponjoso incapaz de retener suero.

Error #2

Agitación o vibración mecánica del recipiente durante la fase secundaria de agregación coloidal (minutos 10 a 25 post-inoculación): ruptura irreversible de los microagregados primarios de para-caseína, generando una coalescencia asimétrica, fractura estructural de la red tridimensional y una sinéresis catastrófica e incontrolada con textura harinosa.

Error #3

Dosificación excesiva de cuajo por encima de 100 IMCU/L combinada con temperaturas de coagulación mayores a 40 °C: hidrólisis proteolítica inespecífica de las fracciones β-caseína y αs1-caseína, liberando péptidos hidrofóbicos amargos de bajo peso molecular (especialmente fragmentos N-terminales ricos en leucina y prolina) que arruinan el perfil sensorial con amargor astringente persistente.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Coeficiente de Partición

Coeficiente de Partición

[ko.e.fiˈθjen.te ðe paɾ.tiˈθjon / loɡ pe]

El coeficiente de partición (comúnmente expresado como P o su logaritmo decimal Log P, o específicamente como el coeficiente de partición octanol-agua K_ow) es una constante físico-química adimensional que mide el equilibrio de concentración de un soluto no ionizado entre dos fases líquidas inmiscibles en estado de equilibrio termodinámico. Representa cuantitativamente la lipofilia o hidrofobicidad relativa de una especie química; un valor de Log P positivo y elevado denota un soluto marcadamente apolar y lipófilo que prefiere solvatarse en la fase orgánica, mientras que un Log P negativo indica un soluto netamente hidrófilo y polar afin a los dominios acuosos. En la ciencia gastronómica de vanguardia, el coeficiente de partición rige de manera inexorable la cinética de liberación de los compuestos bioactivos, pigmentos y moléculas de sabor entre las matrices alimentarias lipídicas y acuosas (emulsiones O/W o W/O). Dicta si una especia, un aceite esencial o un agente colorante difundirá primordialmente hacia los glóbulos grasos de una salsa o si permanecerá en el suero lácteo acuoso, controlando la persistencia retronasal, la velocidad de disolución lingual y la percepción de astringencia o dulzor.

Cristales sub-alfa

Cristales sub-alfa

[kɾisˈta.les subˈal.fa]

Los cristales sub-alfa (sub-α, también referidos en la literatura técnica como formas γ o fases intermedias de súper-enfriamiento criogénico) constituyen un estado estructural altamente metaestable y transitorio en matrices de triacilgliceroles. Esta fase ocurre exclusivamente cuando una grasa fundida es expuesta a velocidades de enfriamiento hiper-rápidas (superiores a 50-100 °C/min) hasta temperaturas criogénicas inferiores a -20 °C o cercanas a la temperatura de transición vítrea (Tg). Estructuralmente, presentan un empaquetamiento lamelar con cadenas hidrocarbonadas prácticamente congeladas en un estado de desorden pseudo-amorfo. En la gastronomía hipermodernista y el tratamiento criogénico de lípidos (mediante inmersión directa en nitrógeno líquido a -196 °C o el uso de rotores criogénicos como el Pacojet en combinación con sales refrigerantes), la fase sub-alfa representa la frontera física donde el crecimiento cristalino es anulado cinéticamente por la viscosidad extrema del medio. Los alimentos grasos procesados en estas condiciones presentan una ausencia casi total de sensaciones granulosas al paladar, fundiendo en boca con una rapidez termodinámica instantánea debido al minúsculo tamaño de los dominios ordenados (escala manométrica < 100 nm).

Cristalización vítrea

Cristalización vítrea

[kɾis.ta.li.saˈsjon ˈbi.tɾe.a]

La vitrificación o estado vítreo es un estado termodinámico metaestable de no-equilibrio en el cual un fluido superenfriado o una solución de carbohidratos concentrada experimenta un incremento exponencial de su viscosidad cinética (>10¹² Pa·s), inmovilizando el desorden molecular traslacional sin adoptar una red periódica cristalina tridimensional. A diferencia de la cristalización estricta (que implica nucleación y crecimiento ordenado con calor latente de fusión), la transición vítrea ocurre a una temperatura crítica (Tg) dependiente de la plasticidad del solvente, consolidando una fase sólida amorfa isotrópica, transparente y frágil. En la alta gastronomía molecular, el control de este estado permite la génesis de vidrios de azúcar, encapsulaciones bioactivas, crujientes liofilizados y caramelos de alta densidad sin recristalización indeseada. Cuando el sistema supera la temperatura de transición vítrea (T > Tg) por absorción higroscópica de vapor de agua (aumento de la actividad de agua, aw) o por elevación térmica, la viscosidad cae abruptamente según la cinética de Williams-Landel-Ferry (WLF), activando la movilidad rotacional del agua plastificante, la pegajosidad interfacial (stickiness) y la eventual cristalización catastrófica del soluto que destruye la textura vítrea característica.

Cruz de Malta

Cruz de Malta

[ˈkɾuθ ðe ˈmal.ta]

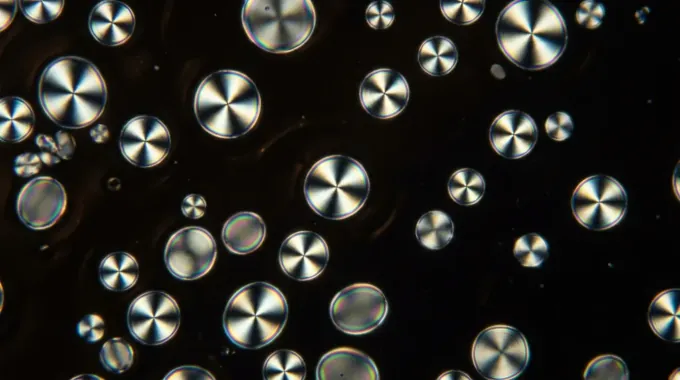
Patrón óptico interferencial de extinción cruciforme característico observado mediante microscopía óptica de polarización (PLM) en gránulos nativos de almidón intactos. Este fenómeno es el resultado directo de la birrefringencia positiva intrínseca exhibida por el empaquetamiento radial y altamente ordenado de las dobles hélices de amilopectina, las cuales configuran una estructura semicristalina cuasi-esférica con anisotropía óptica pronunciada. En gastronomía molecular y ciencia de los alimentos, la desaparición progresiva o súbita de la cruz de Malta define con absoluta exactitud analítica el rango de temperatura de gelatinización (T_o, T_p, T_c, típicamente entre 55 °C y 75 °C según el origen botánico). Su pérdida irreversible marca el colapso del orden mesomorfo y la transición de fase vítrea-cristalina a un gel amorfo viscoelástico, alterando radicalmente la viscosidad cinemática, la transparencia coloidal y la textura final del sistema alimentario.

Enlaces de hidrógeno

Enlaces de hidrógeno

[enˈlaθes ðe iˈðɾoχeno]

El enlace de hidrógeno es una interacción electrostática atractiva dipolo-dipolo no covalente que se establece entre un átomo de hidrógeno unido covalentemente a un elemento altamente electronegativo (típicamente oxígeno, nitrógeno o flúor) y un par de electrones solitarios de otro átomo electronegativo adyacente. En sistemas bioalimentarios acuosos, presenta una longitud de enlace promedio de 0.17 a 0.20 nm y una energía de disociación que oscila entre 8 y 40 kJ/mol (2 a 10 kcal/mol), situándose en una magnitud intermedia que otorga una extrema plasticidad dinámica a las macromoléculas nativas. En gastronomía de vanguardia y física de polímeros culinarios, los enlaces de hidrógeno rigen la viscoelasticidad de geles termorreversibles (como agar-agar, gelatina y almidón retrogradado), la hidratación macromolecular y la estabilización estructural secundaria de proteínas (hélices alfa y láminas beta). Su rotura cooperativa por calor por encima de transiciones conformacionales específicas conduce a la fluidificación térmica de matrices coloidales, mientras que su reconstitución durante el atemperado o enfriamiento controla fenómenos críticos como la gificación elástica, la viscosidad intrínseca y la retención neta de agua libre en hidrogeles.

Enzimas proteolíticas endógenas

Enzimas proteolíticas endógenas

[enˈzimas pɾoteoˈlitikas enˈdoxenas]

Las enzimas proteolíticas endógenas son biocatalizadores peptídicos preexistentes en el citosol y orgánulos del tejido muscular animal, cuya función post-mortem primaria es la hidrólisis selectiva de uniones peptídicas específicas en proteínas miofibrilares y del citoesqueleto. Las dos familias enzimáticas dominantes en la maduración y terneza cárnica son las calpaínas (cisteín-proteasas neutras dependientes de iones Ca²⁺ citoplasmáticos) y las catepsinas (hidrolasas ácidas de origen lisosomal, destacando las catepsinas B, D, H y L). En gastronomía de precisión y maduración avanzada (dry aging / wet aging), estas enzimas dirigen la proteólisis del citoesqueleto celular degradando titina, nebulina, desmina y troponina T, debilitando la rigidez sarcomérica sin romper masivamente las cadenas gruesas de miosina ni la actina. Esta acción controlada produce un ablandamiento textural exponencial, incrementa el agua retenida por capilaridad y libera pequeños péptidos sapídicos y aminoácidos libres (como glutamato y arginina) inductores de sabor umami de alta intensidad.