Óxido de trimetilamina

(TMAO, N,N-dimetilmetanamina N-óxido, C3H9NO)

Transcripción IPA: [ˈoksiðo ðe tɾimetiˈlamina]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

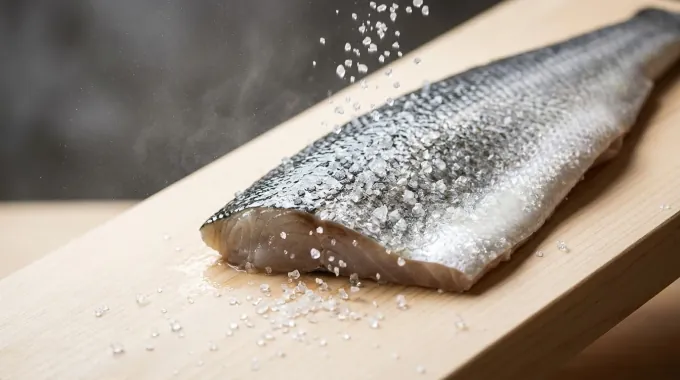
El óxido de trimetilamina (TMAO) es un osmolito zwitteriónico cuaternario y soluto compatibilizador piezo-protector sintetizado primariamente en el tejido muscular de teleósteos y elasmobranquios marinos de aguas frías y profundas. Su función biológica radica en contrarrestar el estrés osmótico salino y neutralizar los efectos desnaturalizantes de la elevada presión hidrostática (baroprotección de la conformación de la actomiosina) y de la urea celular. En el músculo intacto y fresco, el TMAO se presenta como un soluto incoloro, inodoro e insípido que estabiliza el plegamiento nativo macromolecular mediante el incremento del efecto hidrofóbico en la superficie proteica.

En la ciencia gastronómica de vanguardia, el contenido basal de TMAO (que oscila entre 20 y 150 mmol/kg en peces óseos bentónicos y hasta 400 mmol/kg en elasmobranquios) es el precursor crítico de los metabolitos volátiles de degradación post-mortem. Su retención y estabilidad química determinan el umbral organoléptico prístino del pescado crudo en preparaciones como sashimi, ikejime o maduraciones dry-aging hiperbáricas, donde la degradación de esta molécula hacia aminas volátiles marca la frontera entre un perfil mineral-umami elegante y la aparición de defectos aminados de descomposición.

II. Etimología e Historia Gastronómica

El aislamiento sistemático del óxido de trimetilamina se atribuye a los estudios pioneros de Suwa en 1909 y posteriormente a las investigaciones del químico británico H. L. A. Tarr en las décadas de 1930 y 1940 sobre la geoquímica y bacteriología marina en la Fisheries Research Board of Canada. Tarr demostró concluyentemente que el TMAO muscular servía de sustrato primordial aceptor terminal de electrones para las bacterias heterótrofas anaerobias psicrófilas residentes en la mucosa cutánea y tracto intestinal de los peces tras la captura.

A finales del siglo XX e inicios del XXI, la gastronomía molecular impulsada por Nicholas Kurti y Harold McGee, junto a la adopción occidental de técnicas tradicionales japonesas de sacrificio compasivo y sangrado como el ikejime (estudiadas por científicos sensoriales del Tsukiji y centros de I+D como el Culinary Institute of America), reclasificó el TMAO. Pasó de ser un mero descriptor de descomposición a un parámetro termodinámico de osmoprotección que debe preservarse intacto mediante choques térmicos controlados (crust-freezing a -1.5 °C) para evitar su clivaje catabólico y sostener la turgencia miofibrilar prístina.
III. Ciencia Culinaria y Bioquímica

A nivel molecular, el TMAO presenta una estructura bipolar dipolar con un enlace de coordinación N⁺–O⁻ fuertemente polarizado (momento dipolar μ ≈ 4.4 Debye) y un peso molecular de 75.11 g/mol. En solución acuosa actúa como un kosmotropo de Hofmeister de extrema potencia, reduciendo el volumen de exclusión del agua, aumentando la tensión superficial interfacial y rigidizando la red de enlaces de hidrógeno solvente-solvente. Esta propiedad excluye energéticamente al TMAO del dominio peptídico desnaturalizado, favoreciendo la compactación conformacional de las cadenas de actina y miosina (ΔGdesnaturalización > 0).

El TMAO permanece químicamente estable dentro de rangos fisiológicos de pH 6.2–7.4 y temperaturas inferiores a 0 °C. No obstante, frente a la actividad microbiana o acción de enzimas tisulares endógenas bajo una disminución del potencial redox (Eh < -150 mV), la molécula actúa como aceptor exógeno de electrones en la respiración anaerobia. La rotura del enlace coordinado dador de electrones N–O presenta una entalpía de disociación relativamente baja frente a reductores biológicos como el NADH catalizado por la TMAO-reductasa, iniciando su clivaje a trimetilamina (TMA), con cinéticas que se aceleran logarítmicamente si la actividad de agua (aw) supera el 0.95 en presencia de cationes divalentes como Fe²⁺.

IV. Protocolo de Ejecución y Precisión Técnica

Para monitorizar y conservar el reservorio de TMAO intacto en el obrador de I+D de alta cocina, el tratamiento inicia post-captura inmediata mediante la técnica de punción medular ikejime y sangrado en salmuera isotónica a 0 °C, reduciendo la carga de hierro libre hémico. El músculo del espécimen (ej. Merluccius merluccius o Gadus morhua) debe recepcionarse a una temperatura de núcleo estrictamente controlada entre -0.5 °C y +0.5 °C, monitorizada mediante termómetro de penetración de termopar tipo K de calibración multipunto con resolución de 0.01 °C.

La cuantificación analítica en crudo se realiza mediante extracción ácida con ácido tricloroacético (TCA) al 5% w/v (proporción 1:2 tejido/solvente) homogeneizado con sonicador de titanio a 24 kHz durante 60 segundos en baño de hielo. Se centrífuga a 4000 rpm durante 15 minutos a 2 °C y el sobrenadante neutralizado a pH 7.0 (empleando tampón fosfato y verificado con electrodo de vidrio combinado de micropenetración) se somete a reducción colorimétrica o HPLC en fase reversa acoplada a detector de conductividad para asegurar concentraciones basales de TMAO residuales superiores a 80 mmol/kg, garantizando la ausencia total de volátiles aminados antes de someter el pescado a maduraciones estáticas con aw controlada a 0.88.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Permitir un incremento térmico en la cadena de frío de +0.5 °C a +4 °C durante el almacenamiento inicial, lo que cataliza la proliferación de Shewanella putrefaciens e incrementa exponencialmente la actividad de la TMAO-reductasa, generando la reducción irreversible a trimetilamina volátil con hedor rancio amoniacal.

Error #2

Lavar las piezas evisceradas con agua desionizada o hipoosmótica no tamponada, induciendo un gradiente que extrae el TMAO intracelular por lisis osmótica celular e hidroliza el retículo sarcoplasmático, ocasionando sinéresis masiva y ablandamiento irrecuperable de la textura miofibrilar.

Error #3

Emplear recipientes de contacto con aleaciones metálicas no pasivadas que liberen trazas de iones Fe²⁺ o Cu²⁺, actuando como catalizadores rédox inorgánicos que degradan el TMAO por descomposición química directa no enzimática incluso a temperaturas de subcongelación (-2 °C).

Malla Viva Editorial MomenFress

Dónde cobra vida «Óxido de trimetilamina» en nuestra web

Recetas, bodegas, quesos y queserías D.O.P., tratados científicos y grandes chefs donde este concepto se aplica en la práctica.

3 publicaciones relacionadas

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Pectato cálcico

Pectato cálcico

[pekˈta.to ˈkal.si.ko]

El pectato cálcico es una sal polimérica insoluble e hidrogel termoirreversible formado por la reticulación electrostática de cadenas desmetoxiladas de ácido poligalacturónico mediante puentes de coordinación con iones divalentes de calcio (Ca2+). Es el componente bioquímico responsable de la rigidez estructural de la lámina media en los tejidos parenquimatosos vegetales y el agente rector en las técnicas de esferificación directa, esferificación inversa y texturización crujiente en frutas termoprocesadas. En la alta cocina, la inducción controlada de pectato cálcico permite preservar o restaurar la firmeza turgente de vegetales sometidos a cocciones prolongadas al vacío (sous-vide), evitando el colapso celular y la flacidez tisular. Asimismo, determina la viscoelasticidad elástica (módulo de almacenamiento G' significativamente superior al módulo de pérdida G'') de membranas esferificadas estables a temperaturas de servicio de hasta 80 °C.

Peroxidación lipídica

Peroxidación lipídica

[peɾoksiðaˈθjon liˈpiðika]

La peroxidación lipídica es el proceso oxidativo en cadena, mediado fundamentalmente por especies reactivas de oxígeno (ROS) o intermediarios radicalarios, a través del cual los ácidos grasos poliinsaturados (PUFAs) que contienen sistemas dieno conjugados o grupos metileno bis-alílicos (-CH=CH-CH2-CH=CH-) sufren una sustracción homolítica de hidrógeno, dando lugar a hidroperóxidos lipídicos primarios (ROOH) altamente inestables. En matrices biológicas complejas y emulsiones culinarias, esta cascada puede ser desencadenada tanto por mecanismos enzimáticos (vía lipoxigenasas activas) como no enzimáticos (iniciada por radicales hidroxilo •OH, superóxido O2•- o fotoactivación por singlete de oxígeno 1O2 mediada por clorofilas y riboflavinas). En la ciencia gastronómica, este fenómeno es el responsable último de la senescencia química irreversible de grasas nobles (aceites de oliva virgen extra monovarietales, mantecas maduradas, grasa intramuscular de buey Wagyu o pescados azules como caballa y sardina). La descomposición secundaria de los hidroperóxidos genera una constelación de aldehídos de bajo umbral de detección olfativa (como (E,Z)-2,4-decadienal, malondialdehído, hexanal y 4-hidroxi-2-nonenal), los cuales destruyen las notas frescas o herbáceas, imprimiendo defectos sensoriales de rancio, barniz, pintura o grasa metálica oxidada (WOF, 'warmed-over flavor'), además de comprometer la salubridad nutricional al reaccionar los compuestos electrofílicos con aminas primarias de proteínas.

Polifenoles condensados

Polifenoles condensados

/polifeˈnoles kondenˈsados/

Los polifenoles condensados, universalmente conocidos como taninos condensados, son polímeros bioflavonoides biológicamente inertes respecto a la hidrólisis ácida simple, constituidos por el acoplamiento covalente de subunidades de flavan-3-ol (como (+)-catequina, (-)-epicatequina, galocatequina y sus derivados 3-O-galato). A diferencia de los taninos hidrolizables (galotaninos y elagitaninos), los condensados carecen de un núcleo central de carbohidrato (como D-glucosa) unido por enlaces éster, presentando en su lugar enlaces interflavanoides carbono-carbono extremadamente resistentes. En gastronomía molecular y ciencia de los alimentos, los polifenoles condensados dictan la longevidad sensorial, el perfil de color pardo-rojizo y el cuerpo de alimentos fermentados y añejados como el cacao criollo, las semillas de uva, el café y la corteza de canela. Son potentes agentes antioxidantes endógenos que modulan la oxidación lipídica mediante la desactivación de especies reactivas de oxígeno (ROS) y la quelación de iones metálicos redox-activos (Fe²⁺, Cu²⁺), jugando un papel crítico en el desarrollo de notas amargas refinadas versus amargos punzantes.

Proteínas miofibrilares

Proteínas miofibrilares

[pɾoteˈinas mjofiβɾiˈlaɾes]

Las proteínas miofibrilares representan aproximadamente el 55% al 65% de la masa proteica muscular y conforman la arquitectura contráctil y sarcomérica fundamental. Este grupo está dominado por la miosina (molécula asimétrica hexamérica de 520 kDa) y la actina (actina globular G de 42 kDa polimerizada en filamentos de actina F), junto con proteínas reguladoras menores como la tropomiosina, las troponinas (T, I, C) y la titina (3800 kDa). En gastronomía física y culinaria molecular, estas proteínas son las responsables primarias de la formación del gel térmico cárnico tridimensional (sol-gel), la elasticidad (firmeza de mordida) y la retención neta de agua (CRA) en farsas finas, patés, embutidos emulsionados y elaboraciones sous-vide. La solubilización selectiva de la actomiosina mediante fuerza iónica moderada o alta (NaCl entre 1.5% y 3.0% p/p) es el principio fisicoquímico esencial que permite unir fragmentos de músculo sin colágeno ni hidrocoloides exógenos.

Proteínas sarcoplásmicas

Proteínas sarcoplásmicas

[pɾoteˈinas saɾkoˈplazmikas]

Las proteínas sarcoplásmicas constituyen entre el 30% y el 35% del contenido proteico total del miocito esquelético, englobando a más de un centenar de especies macromoleculares solubles en disoluciones acuosas de baja fuerza iónica (I < 0.1 M). Entre sus componentes mayoritarios destacan la mioglobina monomérica (16.7 kDa), responsable cromófora del tejido muscular, enzimas de la glucólisis anaeróbica como la fosfofructocinasa y la lactato deshidrogenasa, así como creatina cinasa y citocromos hemínicos. En la gastronomía de vanguardia y la ciencia de la carne, esta fracción soluble dicta la exudación inicial, la formación de espuma o escoria en caldos térmicos de clarificación y el desarrollo del color post-cocción. Su temprana desnaturalización térmica entre los 40 °C y los 65 °C determina la formación de geles endebles hidrofílicos, afectando directamente la retención hídrica capilar y liberando iones metálicos catalizadores de reacciones de degradación oxidativa de lípidos intramusculares.

Protopectina insoluble

Protopectina insoluble

/pɾotopekˈtina insoˈluble/

La protopectina insoluble es el complejo macromolecular nativo de alta masa molar presente en la lámina media y en la pared celular primaria de tejidos vegetales inmaduros o fisiológicamente firmes. Está constituida por largas cadenas de ácido poligalacturónico de alto peso molecular (frecuentemente superior a 200-500 kDa) densamente metilesterificadas y covalentemente o mecánicamente interconectadas con microfibrillas de celulosa, hemicelulosas (xiloglucanos, arabinogalactanos) y glicoproteínas estructurales ricas en hidroxiprolina (extensinas), lo que impide su solubilización espontánea en medio acuoso frío. En la gastronomía de precisión, la protopectina es la responsable directa de la turgencia, la rigidez osteo-mecánica y la fracturabilidad crujiente de frutas y verduras crudas. Su transición hacia pectinas solubles de menor peso molecular durante la maduración fisiológica o mediante procesos térmicos, hidrolíticos o alcalinos define el límite exacto entre una textura crocante elástica y un ablandamiento celular con colapso estructural irreversible.