Pectato liasa (EC 4.2.2.2, Poli(1,4-α-D-galacturonido) liasa)

Transcripción IPA: /pekˈtato ˈljasa/

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

La pectato liasa es una enzima liasa que cataliza la ruptura eliminativa no hidrolítica de los enlaces glicosídicos α-(1→4) en pectatos desesterificados (poligalacturonatos), mediante un mecanismo de trans-eliminación β dependiente estrictamente de cationes calcio bivalentes (Ca²⁺). A diferencia de las hidrolasas, esta escisión endo-catalítica genera un doble enlace carbono-carbono insaturado entre C4 y C5 en el extremo no reductor de los fragmentos resultantes, rindiendo 4-desoxi-L-treo-hex-4-enopiranosiluronatos que presentan una absorción espectrofotométrica distintiva a 235 nm.

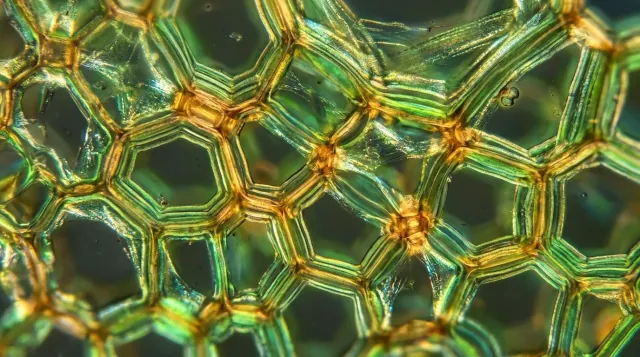
En gastronomía de vanguardia, la pectato liasa es una herramienta bio-nanotecnológica de altísima precisión para la disgregación celular controlada en tejidos vegetales sensibles a pH neutro o ligeramente alcalino. Permite separar células parenquimatosas individuales intactas sin perforar la membrana plasmática, obteniendo suspensiones celulares esféricas aterciopeladas ('caviar celular' microscópico) imposibles de lograr con estrés mecánico o hidrolasas convencionales que romperían la vacuola liberando acidez y fenoles.

II. Etimología e Historia Gastronómica

El término integra 'pectato' (la sal o forma ionizada del ácido péctico) y 'liasa' (enzima que cataliza la rotura de enlaces químicos por vías distintas a la hidrólisis o la oxidación, introduciendo a menudo dobles enlaces). Fue descubierta en 1961 por Starr y Moran durante el estudio de fitopatógenos bacterianos como Erwinia carotovora (actualmente Pectobacterium carotovorum), organismos capaces de provocar una maceración tisular masiva y ultrarrápida conocida como 'podredumbre blanda'.

En el contexto culinario contemporáneo, la introducción de enzimas recombinantes liasas fue adoptada por los laboratorios de vanguardia vinculados al elBulli Taller y The Fat Duck a principios de los años 2000, explorando el aislamiento de células vegetales vivas e intactas. Este enfoque superó las limitaciones de las enzimas fúngicas tradicionales (que operaban solo a pH muy ácido), abriendo la puerta a modificar texturas en raíces amiláceas, legumbres y hortalizas a pH fisiológico (6.5-8.0) sin comprometer su color verde por feofitinización clorofílica.


III. Ciencia Culinaria y Bioquímica

El mecanismo catalítico de la pectato liasa requiere la presencia de iones Ca²⁺ coordinados en el sitio activo por cadenas laterales de aspartato, que neutralizan la carga negativa del grupo carboxilato en C6 del sustrato y acidifican el protón C5. Un residuo de arginina o lisina actúa como base general, abstrayendo el protón en C5, lo que induce la transferencia de electrones y la consecuente expulsión eliminativa del oxígeno glicosídico unido a C4, forzando la formación del doble enlace C4=C5 conjugado (eliminación β). La actividad es nula sobre homogalacturonanos metilados; requiere carboxilatos libres contiguos.

La cinética de la enzima muestra un pH óptimo alcalino inusual en el rango de 7.5 a 9.0, y una dependencia crítica de la concentración de calcio libre ([Ca²⁺] óptima entre 0.5 y 2.0 mM). A concentraciones submilimolares de Ca²⁺ o en presencia de agentes quelantes como EDTA o citrato en exceso, la actividad cae a cero debido a la alteración del plegamiento del dominio catalítico en hélice paralela β. Su energía libre de activación (ΔG‡) es sensible a la fuerza iónica del medio, mostrando máxima tasa de recambio catalítico (kcat > 200 s⁻¹) a fuerza iónica I ≈ 0.05-0.1 M.

IV. Protocolo de Ejecución y Precisión Técnica

Para la desorganización de lámina media y producción de células parenquimatosas libres (maceración unicelular) en tubérculos y hortalizas verdes (ej. apio nabo, calabacín): Cortar el tejido vegetal en cubos micrométricos uniformes de 2.0 mm con cuchilla microtoma de precisión. Preparar una solución tampón de Tris-HCl o bicarbonato de sodio 25 mM a pH 8.0 ± 0.05 a 20 °C, verificada con pH-metro digital calibrado. Suplementar la solución con CaCl₂ anhidro a una concentración final de 1.0 mM (111 mg/L).

Dispersar el tejido en el tampón en relación 1:4 (p/v) dentro de un reactor de borosilicato termostatizado a 37.0 °C. Inocular pectato liasa purificada a razón de 120 mg/kg de biomasa vegetal. Aplicar agitación mecánica suave a 40 rpm durante 60 minutos para evitar la lisis celular por cizallamiento. Monitorear la formación de dobles enlaces por espectrofotometría UV-Vis a 235 nm en alícuotas del sobrenadante clarificado. Una vez alcanzada la disgregación de la lámina media, colar la suspensión a través de una malla de nailon monofilamento de 150 µm para separar las células intactas libres del tejido no macerado, lavando con solución isotónica salina al 0.9% de NaCl a 4 °C.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Utilizar la enzima en matrices que contienen altas concentraciones de quelantes naturales de calcio, como ácido fítico o exceso de ácido cítrico no neutralizado, lo que secuestra el catión Ca²⁺ cofactor y bloquea completamente la eliminación β.

Error #2

Trabajar en medios no tamponados por debajo de pH 6.8, donde la desprotonación del residuo básico catalítico es insuficiente, reduciendo la velocidad de reacción en más de un 95% y fracasando en la maceración celular.

Error #3

Aplicar agitación por ultrasonidos de alta intensidad o mezcla con cuchillas durante la digestión enzimática, provocando la rotura por cizallamiento de las paredes primarias debilitadas y la consiguiente extravasación del contenido vacuolar, formando una papilla viscosa con liberación de polifenoloxidasas que pardea el producto.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Peroxidación lipídica

Peroxidación lipídica

[peɾoksiðaˈθjon liˈpiðika]

La peroxidación lipídica es el proceso oxidativo en cadena, mediado fundamentalmente por especies reactivas de oxígeno (ROS) o intermediarios radicalarios, a través del cual los ácidos grasos poliinsaturados (PUFAs) que contienen sistemas dieno conjugados o grupos metileno bis-alílicos (-CH=CH-CH2-CH=CH-) sufren una sustracción homolítica de hidrógeno, dando lugar a hidroperóxidos lipídicos primarios (ROOH) altamente inestables. En matrices biológicas complejas y emulsiones culinarias, esta cascada puede ser desencadenada tanto por mecanismos enzimáticos (vía lipoxigenasas activas) como no enzimáticos (iniciada por radicales hidroxilo •OH, superóxido O2•- o fotoactivación por singlete de oxígeno 1O2 mediada por clorofilas y riboflavinas). En la ciencia gastronómica, este fenómeno es el responsable último de la senescencia química irreversible de grasas nobles (aceites de oliva virgen extra monovarietales, mantecas maduradas, grasa intramuscular de buey Wagyu o pescados azules como caballa y sardina). La descomposición secundaria de los hidroperóxidos genera una constelación de aldehídos de bajo umbral de detección olfativa (como (E,Z)-2,4-decadienal, malondialdehído, hexanal y 4-hidroxi-2-nonenal), los cuales destruyen las notas frescas o herbáceas, imprimiendo defectos sensoriales de rancio, barniz, pintura o grasa metálica oxidada (WOF, 'warmed-over flavor'), además de comprometer la salubridad nutricional al reaccionar los compuestos electrofílicos con aminas primarias de proteínas.

Polifenoles condensados

Polifenoles condensados

/polifeˈnoles kondenˈsados/

Los polifenoles condensados, universalmente conocidos como taninos condensados, son polímeros bioflavonoides biológicamente inertes respecto a la hidrólisis ácida simple, constituidos por el acoplamiento covalente de subunidades de flavan-3-ol (como (+)-catequina, (-)-epicatequina, galocatequina y sus derivados 3-O-galato). A diferencia de los taninos hidrolizables (galotaninos y elagitaninos), los condensados carecen de un núcleo central de carbohidrato (como D-glucosa) unido por enlaces éster, presentando en su lugar enlaces interflavanoides carbono-carbono extremadamente resistentes. En gastronomía molecular y ciencia de los alimentos, los polifenoles condensados dictan la longevidad sensorial, el perfil de color pardo-rojizo y el cuerpo de alimentos fermentados y añejados como el cacao criollo, las semillas de uva, el café y la corteza de canela. Son potentes agentes antioxidantes endógenos que modulan la oxidación lipídica mediante la desactivación de especies reactivas de oxígeno (ROS) y la quelación de iones metálicos redox-activos (Fe²⁺, Cu²⁺), jugando un papel crítico en el desarrollo de notas amargas refinadas versus amargos punzantes.

Proteínas miofibrilares

Proteínas miofibrilares

[pɾoteˈinas mjofiβɾiˈlaɾes]

Las proteínas miofibrilares representan aproximadamente el 55% al 65% de la masa proteica muscular y conforman la arquitectura contráctil y sarcomérica fundamental. Este grupo está dominado por la miosina (molécula asimétrica hexamérica de 520 kDa) y la actina (actina globular G de 42 kDa polimerizada en filamentos de actina F), junto con proteínas reguladoras menores como la tropomiosina, las troponinas (T, I, C) y la titina (3800 kDa). En gastronomía física y culinaria molecular, estas proteínas son las responsables primarias de la formación del gel térmico cárnico tridimensional (sol-gel), la elasticidad (firmeza de mordida) y la retención neta de agua (CRA) en farsas finas, patés, embutidos emulsionados y elaboraciones sous-vide. La solubilización selectiva de la actomiosina mediante fuerza iónica moderada o alta (NaCl entre 1.5% y 3.0% p/p) es el principio fisicoquímico esencial que permite unir fragmentos de músculo sin colágeno ni hidrocoloides exógenos.

Proteínas sarcoplásmicas

Proteínas sarcoplásmicas

[pɾoteˈinas saɾkoˈplazmikas]

Las proteínas sarcoplásmicas constituyen entre el 30% y el 35% del contenido proteico total del miocito esquelético, englobando a más de un centenar de especies macromoleculares solubles en disoluciones acuosas de baja fuerza iónica (I < 0.1 M). Entre sus componentes mayoritarios destacan la mioglobina monomérica (16.7 kDa), responsable cromófora del tejido muscular, enzimas de la glucólisis anaeróbica como la fosfofructocinasa y la lactato deshidrogenasa, así como creatina cinasa y citocromos hemínicos. En la gastronomía de vanguardia y la ciencia de la carne, esta fracción soluble dicta la exudación inicial, la formación de espuma o escoria en caldos térmicos de clarificación y el desarrollo del color post-cocción. Su temprana desnaturalización térmica entre los 40 °C y los 65 °C determina la formación de geles endebles hidrofílicos, afectando directamente la retención hídrica capilar y liberando iones metálicos catalizadores de reacciones de degradación oxidativa de lípidos intramusculares.

Protopectina insoluble

Protopectina insoluble

/pɾotopekˈtina insoˈluble/

La protopectina insoluble es el complejo macromolecular nativo de alta masa molar presente en la lámina media y en la pared celular primaria de tejidos vegetales inmaduros o fisiológicamente firmes. Está constituida por largas cadenas de ácido poligalacturónico de alto peso molecular (frecuentemente superior a 200-500 kDa) densamente metilesterificadas y covalentemente o mecánicamente interconectadas con microfibrillas de celulosa, hemicelulosas (xiloglucanos, arabinogalactanos) y glicoproteínas estructurales ricas en hidroxiprolina (extensinas), lo que impide su solubilización espontánea en medio acuoso frío. En la gastronomía de precisión, la protopectina es la responsable directa de la turgencia, la rigidez osteo-mecánica y la fracturabilidad crujiente de frutas y verduras crudas. Su transición hacia pectinas solubles de menor peso molecular durante la maduración fisiológica o mediante procesos térmicos, hidrolíticos o alcalinos define el límite exacto entre una textura crocante elástica y un ablandamiento celular con colapso estructural irreversible.

Puentes disulfuro

Puentes disulfuro

[ˈpwentes ðisulˈfuɾo]

El puente disulfuro es un enlace covalente simple (-S-S-) resultante de la oxidación de dos grupos tiol o sulfhidrilo (-SH) pertenecientes a residuos de L-cisteína, formando una unidad condensada de cistina. Con una longitud de enlace de aproximadamente 0.205 nm y una notable energía de enlace covalente de 250 a 270 kJ/mol (60 a 65 kcal/mol), constituye la interacción estructural de orden superior más robusta y energéticamente exigente en la estabilización de conformaciones terciarias y cuaternarias de biopolímeros alimentarios. En gastronomía de vanguardia, panificación de alta hidratación y procesado térmico de ovoproductos y cárnicos, los puentes disulfuro son los garantes primarios de la retención viscoelástica del gluten (glutenina y gliadina), la irreversibilidad mecánica de la coagulación térmica del albumen avícola y la resistencia a la deformación de emulsiones cárnicas trituradas (embutidos finos, terrinas al vacío). Su formación controlada fija de modo permanente las texturas alimentarias rígidas, mientras que su ruptura química o térmica altera radicalmente el umbral de masticabilidad y la liberación de notas aromáticas sulfurosas volátiles.