Pérdida de birrefringencia

(Colapso de la anisotropía óptica y fusión cristalina; desestructuración de la Cruz de Malta)

Transcripción IPA: /ˈpeɾ.ði.ða ðe bi.re.fɾiŋˈxen.sja/

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

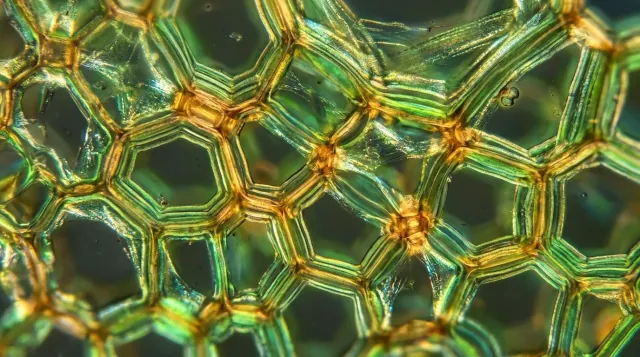
La pérdida de birrefringencia en el almidón es la desaparición irreversible de la anisotropía óptica característica del gránulo nativo cuando se observa bajo luz polarizada cruzada, manifestada físicamente por la extinción de la 'Cruz de Malta' centrada en el hilio del gránulo. Este fenómeno físico-óptico representa el marcador termodinámico y biofísico inequívoco y definitivo de que ha ocurrido la transición de fase vítrea-cristalina a un estado amorfo (gelatinización); es decir, el momento exacto en el que el empaquetamiento cuasicristalino ordenado de las dobles hélices de amilopectina se desorganiza por ruptura de sus puentes de hidrógeno intermoleculares ante la entrada cooperativa del agua.

En la ciencia gastronómica de precisión, determinar el rango térmico de pérdida de birrefringencia define la temperatura exacta a la cual un almidón pierde su rusticidad granular y se vuelve perfectamente digerible, elástico y culinariamente activo. Funciona como el estándar de oro en I+D culinario para calibrar cocciones sous-vide de vegetales, granos y cereales, garantizando que el almidón no quede semi-crudo (astringente, de textura arenosa y baja retención hídrica) ni sobrecocinado hasta el colapso del gel.

II. Etimología e Historia Gastronómica

El descubrimiento de la birrefringencia en los gránulos de almidón y el análisis de la Cruz de Malta polarizada fue realizado por el pionero de la microscopía escocés David Brewster en la década de 1830, quien aplicó por primera vez prismas de Nicol polarizadores a muestras biológicas vegetales. Posteriormente, a principios del siglo XX, físicos como Arthur Ling y botánicos estructurales refinaron la técnica, determinando que la extinción de dicho patrón constituía el límite exacto de la transición de fase termotrópica del grano almidonáceo.

En la gastronomía de vanguardia contemporánea, el uso de la microscopía de polarización acoplada a pletinas térmicas (Hot-Stage Microscopy) fue introducido en laboratorios de cocina de élite por divulgadores y científicos como Nicholas Kurti, Hervé This y el equipo científico de Modernist Cuisine liderado por Nathan Myhrvold. Este rigor permitió mapear el perfil térmico exacto de pérdida de birrefringencia de variedades tradicionales y exóticas de tubérculos y arroces, permitiendo diseñar tratamientos térmicos sub-ebullición que preservan la integridad de paredes celulares mientras se logra una gelatinización microscópica total.


III. Ciencia Culinaria y Bioquímica

Biofísicamente, el gránulo de almidón nativo es un esferulito parcialmente cristalino (cristalinidad que varía del 15% al 45% según la fuente botánica, clasificado en patrones de difracción de rayos X tipo A en cereales, tipo B en tubérculos y tipo C en legumbres). Debido a que las dobles hélices de amilopectina están orientadas radialmente desde el hilio hacia la periferia perpendicular a la superficie granular, la luz linealmente polarizada que atraviesa el gránulo se divide en dos rayos refractados que viajan a diferentes velocidades de propagación (refracción doble o birrefringencia intrínseca positiva: Δn = nextraordinario - nordinario ≈ 0.015).

Al superponer filtros polarizadores cruzados a 90°, la interferencia constructiva genera cuatro cuadrantes brillantes separados por dos planos de extinción ortogonales oscuros que forman la clásica Cruz de Malta. Al calentar la dispersión acuosa granular dentro del rango de gelatinización (To: inicio, Tp: pico, Tc: conclusión; comúnmente entre 58 °C y 72 °C), el hinchamiento endotérmico induce un desorden entrópico masivo. Las dobles hélices cristalinas se desacoplan, desenrollándose en ovillos aleatorios amorfos solvatados por agua. En este punto exacto, el índice de refracción se vuelve idéntico e isotrópico en todas las direcciones espaciales (Δn → 0); la interferencia de fase cesa y la Cruz de Malta se desvanece por completo. Esta transición de fase de primer orden exhibe una marcada correlación con el pico endotérmico obtenido mediante calorimetría diferencial de barrido (DSC).

IV. Protocolo de Ejecución y Precisión Técnica

Para determinar analíticamente la temperatura crítica de pérdida de birrefringencia (Tp) de un almidón destinado a una formulación de alta cocina: preparar una suspensión microscópica al 1% p/v de almidón purificado en agua desionizada (conductividad < 2 μS/cm). Depositar 20 μL de la suspensión sobre un portaobjetos de cuarzo y colocar un cubreobjetos sellado perimetralmente con grasa de silicona para evitar la evaporación de agua durante el ensayo (manteniendo aw constante de 1.0).

Montar la muestra en una pletina termostatizada controlada por software (Hot-Stage) acoplada a un microscopio óptico con analizador y polarizador cruzados a 90° e iluminación halógena o LED calibrada a 550 nm. Iniciar una rampa de calentamiento térmico lineal de 1.0 °C/min desde 40.0 °C hasta 85.0 °C. Registrar mediante captura microfotográfica continua la intensidad de luminancia relativa de la Cruz de Malta; registrar To cuando el 10% de los gránulos del campo visual pierden la cruz, Tp cuando el 50% la ha extinguido, y Tc cuando el 100% del campo es ópticamente isotrópico (negro). Establecer este rango Tc como la temperatura mínima irrevocable de cocción para el protocolo del obrador.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Asumir que un alimento rico en almidón está listo basándose exclusivamente en el incremento aparente de viscosidad macrorreológica, sin alcanzar la temperatura de conclusión de pérdida de birrefringencia (Tc), resultando en digestiones pesadas, almidón retrógrado precoz y amargor por microcristales crudos.

Error #2

Trabajar en soluciones con déficit severo de agua libre (aw < 0.80, como en medios con exceso de polioles o lípidos), lo que desplaza la pérdida de birrefringencia a temperaturas superiores a los 110 °C; someter la mezcla a calentamiento ordinario (80 °C) deja las estructuras cristalinas intactas e inflexibles.

Error #3

Calentamiento heterogéneo y excesivamente rápido (>15 °C/min) en sistemas de inducción sin agitación continua, generando gradientes espaciales donde la periferia sufre colapso térmico destructivo mientras el núcleo de la preparación aún conserva la birrefringencia nativa (textura heterogénea y defectuosa).

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Peroxidación lipídica

Peroxidación lipídica

[peɾoksiðaˈθjon liˈpiðika]

La peroxidación lipídica es el proceso oxidativo en cadena, mediado fundamentalmente por especies reactivas de oxígeno (ROS) o intermediarios radicalarios, a través del cual los ácidos grasos poliinsaturados (PUFAs) que contienen sistemas dieno conjugados o grupos metileno bis-alílicos (-CH=CH-CH2-CH=CH-) sufren una sustracción homolítica de hidrógeno, dando lugar a hidroperóxidos lipídicos primarios (ROOH) altamente inestables. En matrices biológicas complejas y emulsiones culinarias, esta cascada puede ser desencadenada tanto por mecanismos enzimáticos (vía lipoxigenasas activas) como no enzimáticos (iniciada por radicales hidroxilo •OH, superóxido O2•- o fotoactivación por singlete de oxígeno 1O2 mediada por clorofilas y riboflavinas). En la ciencia gastronómica, este fenómeno es el responsable último de la senescencia química irreversible de grasas nobles (aceites de oliva virgen extra monovarietales, mantecas maduradas, grasa intramuscular de buey Wagyu o pescados azules como caballa y sardina). La descomposición secundaria de los hidroperóxidos genera una constelación de aldehídos de bajo umbral de detección olfativa (como (E,Z)-2,4-decadienal, malondialdehído, hexanal y 4-hidroxi-2-nonenal), los cuales destruyen las notas frescas o herbáceas, imprimiendo defectos sensoriales de rancio, barniz, pintura o grasa metálica oxidada (WOF, 'warmed-over flavor'), además de comprometer la salubridad nutricional al reaccionar los compuestos electrofílicos con aminas primarias de proteínas.

Polifenoles condensados

Polifenoles condensados

/polifeˈnoles kondenˈsados/

Los polifenoles condensados, universalmente conocidos como taninos condensados, son polímeros bioflavonoides biológicamente inertes respecto a la hidrólisis ácida simple, constituidos por el acoplamiento covalente de subunidades de flavan-3-ol (como (+)-catequina, (-)-epicatequina, galocatequina y sus derivados 3-O-galato). A diferencia de los taninos hidrolizables (galotaninos y elagitaninos), los condensados carecen de un núcleo central de carbohidrato (como D-glucosa) unido por enlaces éster, presentando en su lugar enlaces interflavanoides carbono-carbono extremadamente resistentes. En gastronomía molecular y ciencia de los alimentos, los polifenoles condensados dictan la longevidad sensorial, el perfil de color pardo-rojizo y el cuerpo de alimentos fermentados y añejados como el cacao criollo, las semillas de uva, el café y la corteza de canela. Son potentes agentes antioxidantes endógenos que modulan la oxidación lipídica mediante la desactivación de especies reactivas de oxígeno (ROS) y la quelación de iones metálicos redox-activos (Fe²⁺, Cu²⁺), jugando un papel crítico en el desarrollo de notas amargas refinadas versus amargos punzantes.

Proteínas miofibrilares

Proteínas miofibrilares

[pɾoteˈinas mjofiβɾiˈlaɾes]

Las proteínas miofibrilares representan aproximadamente el 55% al 65% de la masa proteica muscular y conforman la arquitectura contráctil y sarcomérica fundamental. Este grupo está dominado por la miosina (molécula asimétrica hexamérica de 520 kDa) y la actina (actina globular G de 42 kDa polimerizada en filamentos de actina F), junto con proteínas reguladoras menores como la tropomiosina, las troponinas (T, I, C) y la titina (3800 kDa). En gastronomía física y culinaria molecular, estas proteínas son las responsables primarias de la formación del gel térmico cárnico tridimensional (sol-gel), la elasticidad (firmeza de mordida) y la retención neta de agua (CRA) en farsas finas, patés, embutidos emulsionados y elaboraciones sous-vide. La solubilización selectiva de la actomiosina mediante fuerza iónica moderada o alta (NaCl entre 1.5% y 3.0% p/p) es el principio fisicoquímico esencial que permite unir fragmentos de músculo sin colágeno ni hidrocoloides exógenos.

Proteínas sarcoplásmicas

Proteínas sarcoplásmicas

[pɾoteˈinas saɾkoˈplazmikas]

Las proteínas sarcoplásmicas constituyen entre el 30% y el 35% del contenido proteico total del miocito esquelético, englobando a más de un centenar de especies macromoleculares solubles en disoluciones acuosas de baja fuerza iónica (I < 0.1 M). Entre sus componentes mayoritarios destacan la mioglobina monomérica (16.7 kDa), responsable cromófora del tejido muscular, enzimas de la glucólisis anaeróbica como la fosfofructocinasa y la lactato deshidrogenasa, así como creatina cinasa y citocromos hemínicos. En la gastronomía de vanguardia y la ciencia de la carne, esta fracción soluble dicta la exudación inicial, la formación de espuma o escoria en caldos térmicos de clarificación y el desarrollo del color post-cocción. Su temprana desnaturalización térmica entre los 40 °C y los 65 °C determina la formación de geles endebles hidrofílicos, afectando directamente la retención hídrica capilar y liberando iones metálicos catalizadores de reacciones de degradación oxidativa de lípidos intramusculares.

Protopectina insoluble

Protopectina insoluble

/pɾotopekˈtina insoˈluble/

La protopectina insoluble es el complejo macromolecular nativo de alta masa molar presente en la lámina media y en la pared celular primaria de tejidos vegetales inmaduros o fisiológicamente firmes. Está constituida por largas cadenas de ácido poligalacturónico de alto peso molecular (frecuentemente superior a 200-500 kDa) densamente metilesterificadas y covalentemente o mecánicamente interconectadas con microfibrillas de celulosa, hemicelulosas (xiloglucanos, arabinogalactanos) y glicoproteínas estructurales ricas en hidroxiprolina (extensinas), lo que impide su solubilización espontánea en medio acuoso frío. En la gastronomía de precisión, la protopectina es la responsable directa de la turgencia, la rigidez osteo-mecánica y la fracturabilidad crujiente de frutas y verduras crudas. Su transición hacia pectinas solubles de menor peso molecular durante la maduración fisiológica o mediante procesos térmicos, hidrolíticos o alcalinos define el límite exacto entre una textura crocante elástica y un ablandamiento celular con colapso estructural irreversible.

Puentes disulfuro

Puentes disulfuro

[ˈpwentes ðisulˈfuɾo]

El puente disulfuro es un enlace covalente simple (-S-S-) resultante de la oxidación de dos grupos tiol o sulfhidrilo (-SH) pertenecientes a residuos de L-cisteína, formando una unidad condensada de cistina. Con una longitud de enlace de aproximadamente 0.205 nm y una notable energía de enlace covalente de 250 a 270 kJ/mol (60 a 65 kcal/mol), constituye la interacción estructural de orden superior más robusta y energéticamente exigente en la estabilización de conformaciones terciarias y cuaternarias de biopolímeros alimentarios. En gastronomía de vanguardia, panificación de alta hidratación y procesado térmico de ovoproductos y cárnicos, los puentes disulfuro son los garantes primarios de la retención viscoelástica del gluten (glutenina y gliadina), la irreversibilidad mecánica de la coagulación térmica del albumen avícola y la resistencia a la deformación de emulsiones cárnicas trituradas (embutidos finos, terrinas al vacío). Su formación controlada fija de modo permanente las texturas alimentarias rígidas, mientras que su ruptura química o térmica altera radicalmente el umbral de masticabilidad y la liberación de notas aromáticas sulfurosas volátiles.