Transglutaminasa endógena

(EC 2.3.2.13, Protein-glutamina γ-glutamiltransferasa muscular dependiente de Ca²⁺)

Transcripción IPA: /tɾanzɡlutamiˈnasa enˈdoxena/

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

La transglutaminasa endógena (TGasa del tejido muscular esquelético, EC 2.3.2.13) es una enzima transferasa citoplasmática dependiente de cationes de calcio (Ca²⁺) que desempeña un rol bioquímico capital en la remodelación post-mortem de la arquitectura cárnica. Su acción molecular cataliza la formación de enlaces covalentes cruzados inter e intramoleculares entre el grupo gamma-carboxamida de un residuo de L-glutamina (aceptor de acilo) y el grupo épsilon-amino de un residuo de L-lisina (donador de acilo), liberando una molécula estequiométrica de amoníaco (NH₃).

En gastronomía de precisión, a diferencia de la transglutaminasa bacteriana exógena microbiana (MTGasa de Streptomyces mobaraensis, la cual es Ca²⁺-independiente y se añade externamente en polvos comerciales), la transglutaminasa endógena está fisiológicamente presente en el miocito intacto. Su activación modulada in situ es el secreto detrás de la cohesión elástica prístina, la formación de láminas de músculo autorreticuladas y la creación de texturas cárnicas de elasticidad hiperbólica sin la necesidad de añadir aditivos industriales declarables.

II. Etimología e Historia Gastronómica

La denominación «transglutaminasa» responde a las directrices de nomenclatura de la Comisión de Enzimas (EC 2.3.2.13), compuesta por el prefijo latino trans- (a través de, más allá), el sustrato aceptor glutamina y el sufijo catalítico -asa, describiendo su función como protein-glutamina γ-glutamiltransferasa. El descubrimiento sistemático de esta familia enzimática ocurrió en 1957 en los laboratorios de Heinrich Waelsch en la Universidad de Columbia, cuando se detectó la incorporación de aminas marcadas radiactivamente en proteínas tisulares mediante extractos solubles de hígado de cobayo, revelando la formación de enlaces covalentes isopeptídicos catalizados biológicamente sin el concurso directo del ribosoma.

En la ciencia de los alimentos, el reconocimiento de la transglutaminasa tisular muscular endógena y su estricta dependencia de concentraciones micromolares a milimolares de calcio ionizado (Ca²⁺) tuvo lugar en Japón a principios de los años 90. Trabajos pioneros de Seki, Kumazawa y colaboradores demostraron que la formación del entramado insoluble en el fenómeno del suwari en especies como el colín de Alaska (Gadus chalcogrammus) no respondía exclusivamente a interacciones no covalentes, sino a la actividad de una transglutaminasa conservada en el sarcoplasma muscular que cataliza enlaces cruzados ε-(γ-glutamil)lisina. Este hallazgo redefinió por completo la bioquimica de la gelificación proteica e impulsó el posterior desarrollo industrial de homólogos bacterianos recombinantes dependientes e independientes de calcio.
III. Ciencia Culinaria y Bioquímica

La transglutaminasa tisular de peces y vertebrados posee un peso molecular que ronda entre 75 y 85 kDa, organizada como una cadena polipeptídica monomérica con cuatro dominios funcionales: un dominio N-terminal tipo sándwich beta, un dominio central catalítico con la tríada clásica Cys-His-Asp (habitualmente Cys-277, His-335, Asp-358) y dos dominios C-terminales beta-barrel. En estado de reposo muscular, la enzima se encuentra en una conformación catalíticamente inactiva debido a concentraciones micromolares sub-umbral de Ca²⁺ libre intracelular (< 0.1 µM).

Para desatar la cascada catalítica se requiere una unión alostérica coordinada de cationes Ca²⁺ en sitios específicos de unión de alta afinidad (típicamente entre 1 y 5 mM de Ca²⁺ libre en solución). Esto gatilla una alteración conformacional dramática de bisagra molecular que abre la hendidura catalítica, exponiendo el tiol catalítico de la cisteína al solvente. La reacción transcurre a través de un intermediario covalente tioéster acil-enzima formado con el residuo de glutamina del sustrato miofibrilar; posteriormente, el ataque nucleofílico del grupo épsilon-amino de la lisina resuelve el enlace, forjando el puente isopeptídico ε-(γ-Glu)-Lys. La energía libre de Gibbs para la formación de este enlace es favorable (-ΔG), constituyendo una soldadura covalente inmune a la desnaturalización térmica por debajo de 100 °C y refractaria a solventes que disuelven enlaces no covalentes.

IV. Protocolo de Ejecución y Precisión Técnica

1. Extracción y cuantificación de actividad transglutaminásica endógena: Preparar un homogenizado muscular a partir de tejido magro fresco en tampón homogeneizador frío (Tris-HCl 50 mM, sacarosa 0.25 M, EDTA 1 mM, fluoruro de fenilmetilsulfonilo [PMSF] 0.1 mM para frenar proteasas, pH 7.5). Centrifugar a 20000 g durante 30 minutos a 4 °C para colectar la fracción soluble sarcoplásmica. Cuantificar la actividad catalítica mediante el ensayo hidroxamato-colorimétrico utilizando como sustrato N-alfa-CBZ-Gln-Gly y clorhidrato de hidroxilamina en presencia de CaCl₂ 5 mM a 37 °C; la formación de ácido hidroxámico se mide tras complexación con tricloruro férrico (FeCl₃) a 525 nm en espectrofotómetro calibrado.

2. Activación in situ en preparaciones gastronómicas: Para activar la TGasa endógena nativa en una formulación culinaria de pescado picado o pasta miofibrilar sin adición de enzimas externas, dosificar con precisión micrométrica cloruro de calcio bihidrato grado analítico a razón de 0.8 g a 1.2 g por cada kg de pasta cárnica (0.08–0.12% m/m, asegurando una fuerza de calcio libre de 5 a 8 mM). Ajustar el pH de la masa a 7.2–7.5 mediante la adición de microgotas de carbonato de sodio 0.5 M. Mantener la masa desaireada al vacío a 25.0 °C en incubadora climática o baño maría de precisión durante 120 minutos continuos para otorgar el tiempo de residencia requerido por la cinética de transferencia de acilo antes de proceder a cualquier procesado térmico secundario.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Adición indiscriminada de quelantes de calcio como polifosfatos alcalinos (tripolifosfato o hexametafosfato de sodio) o EDTA en proporciones excesivas sin considerar la presencia de la TGasa endógena, lo que secuestra estequiométricamente todos los iones Ca²⁺ libres y apaga irreversiblemente la activación alostérica de la enzima.

Error #2

Someter la matriz cárnica a un calentamiento por encima de 55 °C al inicio del proceso sin haber otorgado el tiempo de residencia isotérmico de catálisis a temperatura ambiente (25–35 °C), inactivando y desnaturalizando termoplásticamente la enzima antes de que logre ensamblar los puentes ε-(γ-Glu)-Lys.

Error #3

Trabajar en medios excesivamente ácidos (pH < 6.0), lo que protona completamente tanto el imidazol catalítico de la histidina como el grupo épsilon-amino nucleófilo de la lisina sustrato, impidiendo el ataque al intermediario acil-enzima y anulando la formación de la red polimérica.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Triglicéridos saturados

Triglicéridos saturados

/tɾiɣliˈseɾiðos satuˈɾaðos/

Los triglicéridos saturados son triésteres derivados de una molécula de glicerol unida covalentemente mediante enlaces éster a tres cadenas hidrocarbonadas acíclicas lineales que carecen de dobles enlaces carbono-carbono (sp³ puros). Presentan una conformación espacial completamente extendida en zigzag termodinámicamente favorable, permitiendo un empaquetamiento intermolecular compacto de alta densidad mediante interacciones electrostáticas dispersivas de London y fuerzas de Van der Waals. Esta geometría regular eleva significativamente sus temperaturas de fusión (habitualmente entre 45 °C y 65 °C para cadenas de C16:0 a C18:0), constituyendo matrices semisólidas o sólidas cristalinas a temperatura de servicio culinario (18-22 °C). En gastronomía de vanguardia, determinan la plasticidad, el polimorfismo cristalino (formas α, β′ y β) y la curva de contenido de grasa sólida (SFC, Solid Fat Content), factores rectores de la viscoelasticidad en emulsiones complejas, chocolates finos, mantecas anhidras y pralinés. Su presencia condiciona la fusión endotérmica lingual, la retención de compuestos aromáticos lipofílicos no polares y el brillo superficial de preparaciones estructuradas, evitando la migración lipídica (oil-off) pero exigiendo un estricto control térmico para eludir una cristalización heterogénea y astringente al paladar.

Velo de flor

Velo de flor

[ˈbe.lo ðe ˈfloɾ]

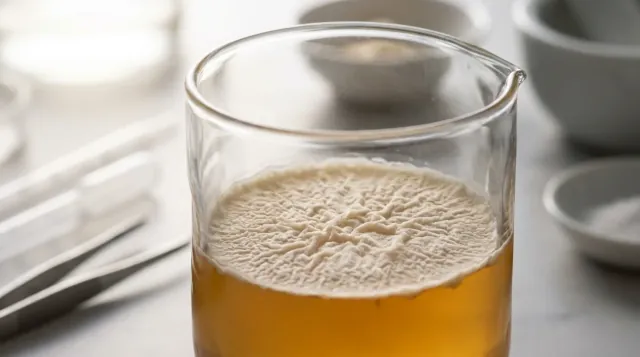
El velo de flor es una biopelícula hidrofóbica multicelular flotante (biofilm) conformada por razas especializadas de levaduras de la especie Saccharomyces cerevisiae (principalmente las variedades beticus, cheresiensis, montuliensis y rouxii). Este ecosistema de superficie se autoensambla en la interfaz líquido-gas de matrices hidroalcohólicas (típicamente vinos fortificados a un título alcométrico de 15.0-15.5% v/v) cuando se agotan los azúcares fermentables hexosas (D-glucosa y D-fructosa) y los microorganismos realizan una transición diaúxica hacia una respiración estrictamente aeróbica basada en el consumo oxidativo del etanol y del glicerol endógeno disuelto. En la alta gastronomía contemporánea y enología de culto (crianza biológica en el sistema de Criaderas y Soleras, vinos amarillos de Jura 'vin jaune', o el desarrollo de velos de levadura cultivados sobre caldos, infusiones de algas y destilados gastronómicos), el velo de flor ejerce dos funciones físico-químicas cardinales: actúa como una barrera física aislante absoluta frente al oxígeno que bloquea el pardeamiento oxidativo enzimático y no enzimático de los polifenoles, e impulsa una metamorfosis organoléptica profunda mediante la hipersecreción de acetaldehído libre, acetales, sotolón y lactonas, produciendo texturas extraordinariamente secas, afiladas, minerales y de una persistencia en boca salina y umami inigualable.

Ácido alfa-linolénico

Ácido alfa-linolénico

/ˈasiðo ˈalfa linoˈleniko/

El ácido alfa-linolénico (ALA) es un ácido graso poliinsaturado trienoico esencial perteneciente a la serie omega-3 (n-3), con fórmula molecular C18H30O2 (MW 278.43 g/mol) y configuración estereoquímica estricta all-cis-9,12,15-octadecatrienoico. Al integrar tres dobles enlaces cis secuenciales separados por dos centros metilénicos bis-alílicos independientes, su cadena acíclica adopta una conformación curvada y sumamente dinámica en el espacio tridimensional. Esta conformación perturba cualquier intento de agregación hidrofóbica cristalina, determinando un punto de fusión extremadamente bajo (-11 °C) y una fluidez membranaria y coloidal superior. En la alta cocina, el ALA es el componente biomolecular insignia de aceites de linaza virgen, nuez, perilla, chía y extractos cloroplásticos de hojas tiernas, exhibiendo notas aromáticas verdes, herbáceas y terrosas refinadas. Representa el sustrato biológico por excelencia para la lipoxigenasa vegetal que da origen a los aldehídos de seis y nueve carbonos típicos del 'aroma verde fresco' (como cis-3-hexenal). Su extrema labilidad termodinámica exige que jamás sea sometido a calentamiento convectivo directo, reservándose para emulsiones en frío, gelatinizaciones lípido-gelificadas y espumas presurizadas bajo gas inerte.

Ácido linoleico poliinsaturado

Ácido linoleico poliinsaturado

/ˈasiðo linoˈlejko polijnssatuˈɾaðo/

El ácido linoleico es un ácido graso poliinsaturado dienoico esencial de la serie omega-6 (n-6), con fórmula molecular C18H32O2 (MW 280.44 g/mol) y estructura canónica sistemática cis,cis-9,12-octadecadienoico. Presenta dos dobles enlaces cis interrumpidos por un grupo metileno (-CH=CH-CH2-CH=CH-), una configuración conformacional que introduce una doble torsión espacial acentuada en la cola hidrofóbica, impidiendo el ordenamiento reticular y deprimiendo su punto de fusión hasta los -5 °C, lo que lo mantiene en un estado intensamente móvil y no viscoso a temperaturas de refrigeración convencionales (4 °C). En el ecosistema culinario contemporáneo, se encuentra predominantemente en aceites de semillas (girasol, pepita de uva, sésamo, maíz) y frutos secos, proporcionando una sensación bucal extraordinariamente liviana, libre de empalago ceroso y dotada de una rápida velocidad de liberación retronasal para volátiles aromáticos florales o herbáceos. Sin embargo, su arquitectura química impone una extrema susceptibilidad a la cascada de autooxidación radicalaria, condicionando las vidas útiles organolépticas, la técnica de deshidratación por liofilización y los límites térmicos de salteados y frituras técnicas.

Ácido oleico monoinsaturado

Ácido oleico monoinsaturado

/ˈasiðo oˈlejko monojnssatuˈɾaðo/

El ácido oleico es un ácido graso monoinsaturado de cadena larga (18 átomos de carbono) con fórmula molecular C18H34O2 (MW 282.46 g/mol) caracterizado por la presencia de un único doble enlace en configuración cis ubicado en el carbono 9 contando desde el grupo carboxilo (Δ9, o n-9/omega-9). Esta estereoquímica rígida genera un ángulo de flexión estructural intrínseco de aproximadamente 120° en la cadena hidrocarbonada, interrumpiendo el empaquetamiento denso intermolecular y confiriéndole un estado líquido fluido a temperatura ambiente con un punto de fusión bajo comprendido entre 13 °C y 14 °C. En gastronomía de alto nivel, el ácido oleico es la columna vertebral fisicoquímica del aceite de oliva virgen extra (AOVE) y grasas de frutos secos nobles, gobernando las propiedades de lubricidad palatal, la tensión interfacial en emulsiones de tipo agua en aceite (W/O) o aceite en agua (O/W), y actuando como solvente no polar preferente para la captura por maceración de terpenos, aldehídos aromáticos y carotenoides liposolubles. Su equilibrio entre fluidez y resistencia a la oxidación térmica lo convierte en el estándar de oro para cocciones grasas de precisión y texturas untuosas aterciopeladas.

Actividad de agua

Actividad de agua

/aktiβiˈðað de ˈaɣwa/

Magnitud termodinámica adimensional que cuantifica el estado energético del agua dentro de una matriz alimentaria y su grado de interacción con los solutos y macromoléculas del medio, definida matemáticamente como la relación entre la presión parcial de vapor de agua en equilibrio sobre el alimento (p) y la presión de vapor de saturación del agua destilada pura (p₀) a la misma temperatura absoluta: a_w = p / p₀ = %HR_equilibrio / 100. En la ciencia gastronómica de precisión, la actividad de agua dicta el umbral termodinámico para la reactividad química y biológica: no representa el contenido porcentual de humedad total, sino el potencial químico del solvente disponible para facilitar la proliferación microbiológica (bacterias patógenas detenidas a a_w < 0.85, hongos xerófilos a a_w < 0.60), la cinética de la reacción de Maillard (máxima entre 0.65 y 0.75 a_w), la hidrólisis lipídica enzimática y el estado textural vítreo o gomoso de sistemas deshidratados o liofilizados.