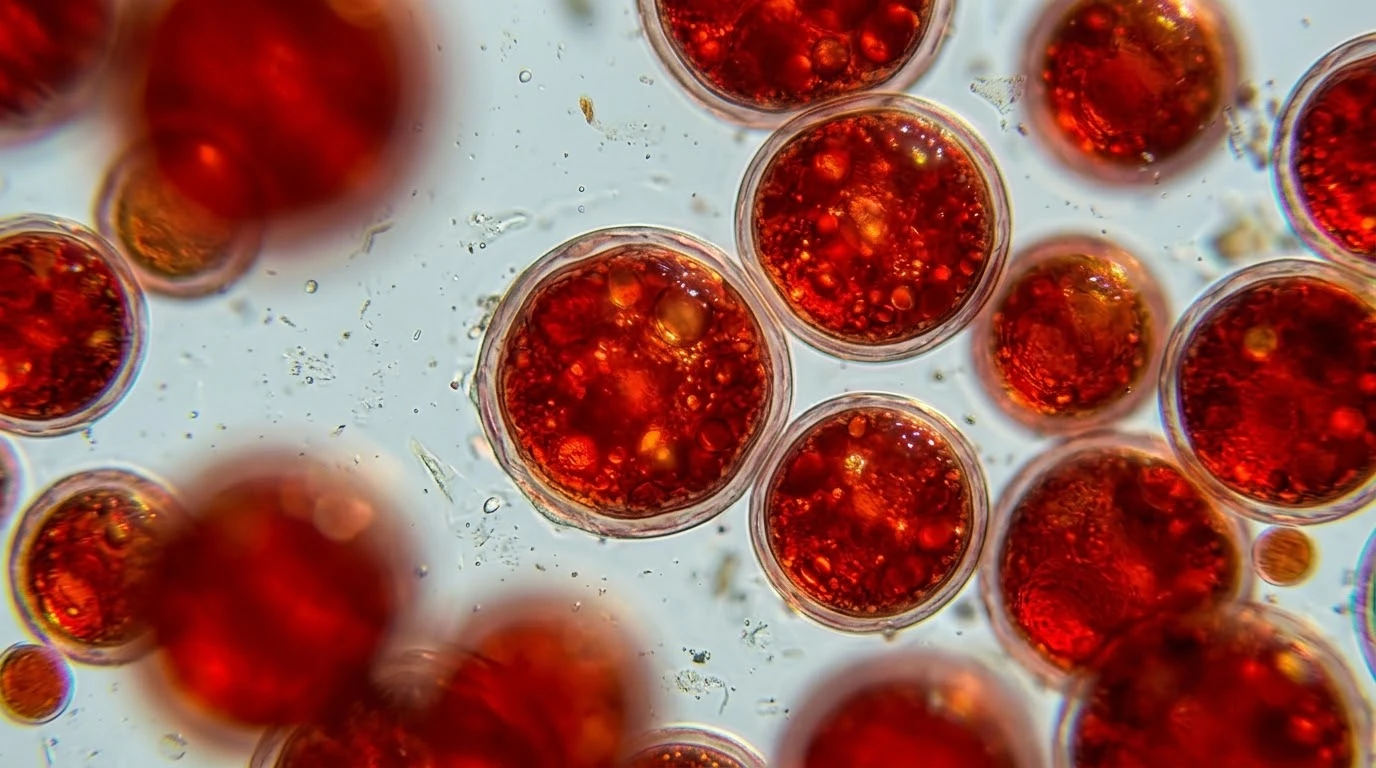
En las profundidades del lecho marino y en los nichos acuáticos sometidos a un estrés lumínico implacable, la naturaleza diseñó una de sus arquitecturas moleculares más sofisticadas: la astaxantina (3,3'-dihidroxi-β,β-caroteno-4,4'-diona). Este xantófilo carotenoide, responsable de la hipnótica coloración escarlata que tiñe los tejidos del salmón salvaje, el krill del océano austral y los exoesqueletos de los crustáceos decápodos, no constituye un mero artificio cromático. A nivel celular, la astaxantina representa una muralla bioquímica concebida para salvaguardar las estructuras biológicas más sensibles frente a la agresividad destructiva de las especies reactivas de oxígeno y la radiación ultravioleta extrema.
A diferencia de otros antioxidantes clásicos como la vitamina C, que opera estrictamente en compartimentos acuosos, o el beta-caroteno y la vitamina E, confinados al interior de las matrices lipófilas, la astaxantina posee una configuración espacial singular determinada por sus anillos de ionona polares terminales y una cadena poliénica conjugada central. Esta simetría anfipática le confiere la capacidad termodinámica única de atravesar de lado a lado la bicapa lipídica de las membranas biológicas. No obstante, su extraordinaria potencia molecular permanece inerte o se degrada si el sistema gastrointestinal carece de los vectores moleculares correctos: al ser una molécula hidrófoba de elevado peso molecular, su absorción y biodisponibilidad demandan una orquestación precisa con lípidos específicos que induzcan la formación de micelas mixtas en el duodeno.
Comprender la bioquímica de la astaxantina desde la alta nutrición implica desterrar las aproximaciones reduccionistas de la suplementación sintética para abrazar la sinergia culinaria de matriz. En este tratado exploraremos cómo la interacción entre este carotenoide rojo, los triglicéridos de cadena media, los ácidos grasos monoinsaturados y los fosfolípidos marinos no solo transforma la biodisponibilidad de un principio activo, sino que redefine la salud mitocondrial, protegiendo las centrales energéticas del organismo frente al deterioro oxidativo y abriendo una nueva era en la longevidad fisiológica aplicada al placer gastronómico riguroso.
Ficha de Valor Nutricional & Evidencia Científica
Nutrición celular marina, bioenergética mitocondrial y optimización lipídica funcional
3,3'-dihidroxi-β,β-caroteno-4,4'-diona (Astaxantina), ácidos grasos omega-3 de cadena muy larga (EPA y DHA), fosfolípidos polares (fosfatidilcolina)
Anclaje transmembrana en la doble capa fosfolipídica mitocondrial, neutralización de especies reactivas de oxígeno (ROS), preservación del potencial de membrana (ΔΨm) e inhibición de la peroxidación lipídica
Ensayos clínicos aleatorizados en humanos (RCTs), estudios metabolómicos de fosforilación oxidativa mitocondrial y metaanálisis de biodisponibilidad carotenoide (The American Journal of Clinical Nutrition / Marine Drugs)
La Geometría Molecular de la Astaxantina y su Anclaje Transmembrana
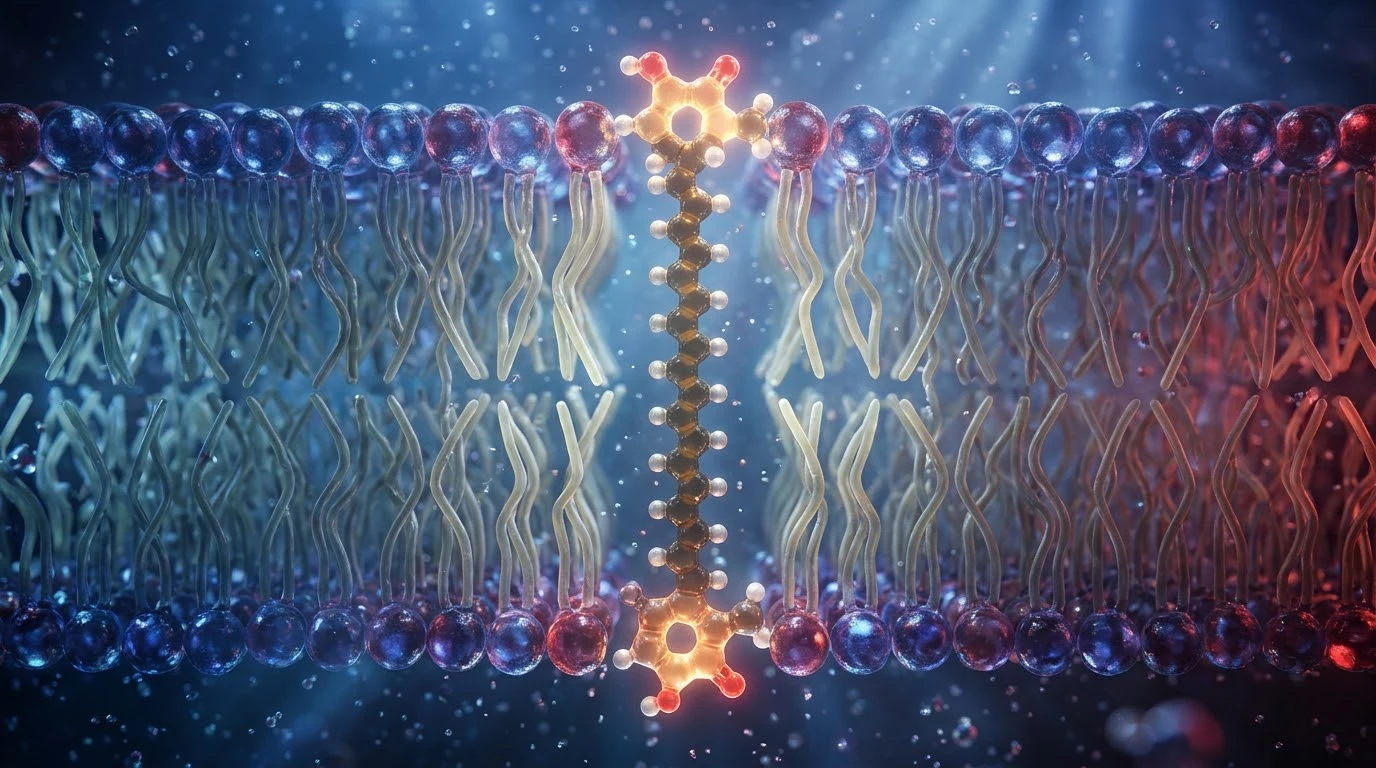
Para comprender la singularidad biológica de la astaxantina es imperativo analizar su estructura fisicoquímica. Se trata de un tetraterpenoide integrado por una cadena lineal central de dobles enlaces conjugados que culmina en dos anillos ionónicos terminales sustituidos por grupos ceto (-C=O) en la posición 4 y grupos hidroxilo (-OH) en la posición 3. Esta configuración específica le confiere una longitud molecular de aproximadamente 4,5 nanómetros, una distancia que coincide con pasmosa exactitud con el grosor medio de la bicapa lipídica de las células eucariotas y, muy especialmente, de la membrana mitocondrial interna.
Mientras que el beta-caroteno (un caroteno puro no oxigenado) queda confinado de forma horizontal en el interior apolar de la membrana alterando negativamente su fluidez, y la vitamina E (alfa-tocoferol) se posiciona predominantemente en la superficie polar externa, la astaxantina adopta una posición transmembrana perpendicular u oblicua. Los dos anillos polares hidrófilos se anclan firmemente en las cabezas de fosfatos exteriores e interiores de la membrana, mientras que su puente poliénico hidrofóbico se integra a la perfección en el núcleo de colas lipídicas de ácidos grasos.
Este anclaje estructural bicapa convierte a la molécula en una auténtica «grapa molecular» que estabiliza mecánicamente la membrana, reduciendo drásticamente la permeabilidad anómala a solutos hidrosolubles y evitando la propagación en cadena de la peroxidación lipídica. Al atrapar los radicales libres tanto en la interfaz hidrofílica acuosa celular como en el epicentro lipófilo de la membrana, la astaxantina despliega un mecanismo de captura de energía redox sin precedentes en la fisiología humana.
Asimismo, esta estructura confiere a la molécula la habilidad de neutralizar el oxígeno singlete (¹O₂) disipando el exceso de energía a través de vibraciones moleculares en su cadena de polienos sin experimentar degradación irreversible, una propiedad en la que supera hasta en 6.000 veces la capacidad de la vitamina C y en 550 veces la del alfa-tocoferol en ensayos de transferencia electrónica homogénea.
Preservación Mitocondrial y Cadena de Transporte de Electrones
Las mitocondrias son los orgánulos rectores de la homeostasis metabólica, encargadas de generar más del 90% del adenosín trifosfato (ATP) que mantiene con vida al organismo mediante la fosforilación oxidativa. No obstante, este proceso bioenergético convierte a la mitocondria en el epicentro primordial de producción de especies reactivas de oxígeno (ROS), generadas principalmente por fugas de electrones en los Complejos I y III de la cadena respiratoria. Cuando la producción de aniones superóxido excede la capacidad de amortiguamiento de enzimas endógenas como la manganeso superóxido dismutasa (MnSOD), se desata un estrés oxidativo implacable.
La membrana mitocondrial interna es extraordinariamente vulnerable a este daño debido a su alto contenido en cardiolipina, un fosfolípido dimérico rico en ácidos grasos poliinsaturados indispensable para la estabilidad y ensamblaje de los supercomplejos de la cadena respiratoria. La peroxidación de la cardiolipina induce el desacoplamiento de la respiración celular, la caída irreversible del potencial de membrana mitocondrial (ΔΨm) y la apertura del poro de transición de permeabilidad mitocondrial (mPTP), evento precursor de la liberación de citocromo c y la apoptosis celular.
En este escenario crítico, la astaxantina ejerce una acción cardioprotectora y neuroprotectora directa. Al penetrar selectivamente en las fracciones mitocondriales gracias a transportadores lipídicos específicos, la molécula intercepta los radicales libres en el mismo punto de origen de la fuga electrónica, preservando intacta la estructura de la cardiolipina. Múltiples ensayos clínicos han demostrado que el aporte constante de astaxantina marina previene la caída del gradiente electroquímico de protones, maximizando la síntesis de ATP por unidad de oxígeno consumido y reduciendo el lactato acumulado bajo demandas metabólicas extremas.
Esta preservación del microambiente mitocondrial mitiga además la fragmentación aberrante de las redes mitocondriales (fisión patológica), favoreciendo los ciclos fisiológicos de mitofagia —el reciclaje selectivo de orgánulos senescentes— y estimulando la biogénesis mitocondrial mediante la activación de la cascada de señalización PGC-1α/NRF-1.
El Paradigma de la Liposolubilidad y la Formación de Micelas Mixtas
A pesar de sus extraordinarias facultades biológicas en sistemas in vitro, la astaxantina presenta un talón de Aquiles farmacocinético: su acusado carácter lipófilo (con un coeficiente de partición log P elevado) y su hidrofobicidad determinan que su consumo en solución acuosa pura resulte en una biodisponibilidad prácticamente insignificante, registrándose tasas de excreción fecal intacta superiores al 90%. Para que este pigmento ejerza sus efectos mitocondriales, debe atravesar un intrincado proceso de solubilización micelar en el tracto digestivo superior.
El proceso de absorción se inicia en el estómago mediante una emulsificación mecánica grosera facilitada por los movimientos gástricos y la lipasa lingual/gástrica, pero su desenlace metabólico tiene lugar en el duodeno. Allí, la presencia coordinada de sales biliares, colesterol y, fundamentalmente, ácidos grasos libres y monoacilgliceroles procedentes de la digestión enzimática catalizada por la lipasa pancreática, permite la construcción de micelas mixtas termodinámicamente estables.
La astaxantina debe insertarse forzosamente en el núcleo hidrofóbico de estas micelas nanométricas para aproximarse a la capa de agua inmóvil que recubre el epitelio de los enterocitos en las microvellosidades intestinales. Si la dieta carece de un volumen suficiente de triglicéridos o si estos carecen de la longitud de cadena adecuada, la dispersión micelar colapsa, provocando la precipitación y cristalización irreversible de la astaxantina en el lumen intestinal.
Una vez alcanzada la membrana apical de los enterocitos, la absorción de la astaxantina no se limita a una simple difusión pasiva no saturable; estudios recientes confirman la implicación decisiva de transportadores proteicos facilitadores, predominantemente el receptor scavenger de clase B tipo 1 (SR-BI) y la proteína transportadora CD36, que muestran una afinidad estequiométrica selectiva condicionada por la composición lipídica que acompaña al carotenoide.
Grasas Vectoriales: Triglicéridos de Cadena Media vs. Larga y Fosfolípidos Polares
No todas las matrices grasas operan con la misma eficacia como vehículos transportadores de carotenoide. La ciencia de los alimentos y la biofísica lipídica distinguen tres familias vectoriales con comportamientos marcadamente dispares en la farmacocinética de la astaxantina: los triglicéridos de cadena larga (LCT), los triglicéridos de cadena media (MCT) y los fosfolípidos polares marinos.
Los triglicéridos de cadena larga ricos en ácido oleico (C18:1), representados paradigmáticamente por el aceite de oliva virgen extra (AOVE), proporcionan una expansión espacial idónea para las micelas mixtas duodenales. Los LCT promueven de forma masiva la síntesis de quilomicrones en el interior del enterocito, permitiendo que la astaxantina se incorpore al sistema linfático a través del conducto torácico antes de su descarga en el torrente sanguíneo venoso, soslayando con éxito el aclaramiento de primer paso hepático.
Por su parte, los MCT (como los ácidos caprílico y cáprico presentes en el coco y ciertos lácteos ovinos y caprinos) poseen una cinética de hidrólisis enzimática ultraveloz que no requiere sales biliares. Aunque son absorbidos directamente hacia el sistema porta hepático, su combinación en proporciones equilibradas con LCT favorece una tasa de absorción más acelerada sin saturar la capacidad enzimática enterocitaria.
El vector más sofisticado, sin embargo, lo constituyen los fosfolípidos marinos procedentes de crustáceos o del tejido graso del krill (Euphausia superba). En esta matriz, una fracción sustancial de la astaxantina no se halla en forma de molécula libre, sino esterificada o íntimamente asociada a fosfatidilcolina, con colas de ácidos grasos poliinsaturados omega-3 (EPA y DHA). Esta arquitectura confiere al extracto una capacidad de autoemulsión espontánea, logrando una solubilización micelar que multiplica hasta por cinco la biodisponibilidad plasmática neta en comparación con suspensiones puramente triglicerídicas.
Biodisponibilidad Comparada: Astaxantina Libre vs. Monoésteres y Diésteres
En la biosfera marina, la astaxantina no se manifiesta como una entidad química homogénea. En la microalga unicelular Haematococcus pluvialis —la fuente primaria más abundante del planeta— la astaxantina se sintetiza predominantemente como monoésteres (~70%) y diésteres (~10-15%) de ácidos grasos como el palmítico, oleico y linoleico, quedando apenas un residuo minoritario en forma de molécula libre o no esterificada (~5%). Por contra, en los tejidos musculares de los salmónidos predomina la forma no esterificada, retenida mediante uniones hidrófobas a las proteínas miofibrilares actomyosinas.
Desde la perspectiva de la absorción entérica, los enterocitos humanos no tienen capacidad funcional para internalizar los ésteres voluminosos de astaxantina a través de los transportadores SR-BI o CD36 sin una hidrólisis enzimática previa. Dicho proceso es catalizado por la colesterol esterasa pancreática (lipasa dependiente de sales biliares) en la luz intestinal, liberando el carotenoide no esterificado para su inclusión en la micela.
A pesar de requerir esta desesterificación luminal previa, los monoésteres naturales demuestran una estabilidad química significativamente superior frente a la degradación oxidativa durante el tránsito gástrico y el procesado culinario térmico. La presencia de la cadena de acilo esterificada en el grupo hidroxilo del anillo terminal protege a la molécula del ataque de radicales y de la foto-isomerización inducida por la luz UV, garantizando que una mayor fracción molar arribe biológicamente intacta al duodeno en comparación con preparaciones sintéticas desnudas.
Una vez dentro del enterocito, la astaxantina libre no vuelve a reesterificarse; se empaqueta directamente en el núcleo lipídico de los quilomicrones nacientes junto con triacilgliceroles y ésteres de colesterol, iniciando su periplo vascular mediante un vector protector que la preserva de la descomposición prematura.
La Ruta Fisiológica: De la Linfa a la Bicapa Mitocondrial
El viaje sistémico de la astaxantina post-prandial es una proeza de distribución vectorial lipídica. Tras abandonar el enterocito por exocitosis en el interior de los quilomicrones, la molécula penetra en los vasos quilíferos lacteales del mesenterio, desplazándose a través del sistema linfático hacia el conducto torácico. Este rodeo fisiológico resulta determinante: evita el metabolismo hepático presistémico inicial, permitiendo que una concentración masiva de carotenoide alcance la circulación general intacta.
En el lecho capilar vascular, la enzima lipoproteína lipasa (LPL) hidroliza los triglicéridos de los quilomicrones circulantes, facilitando la transferencia parcial de astaxantina a los tejidos periféricos mediante difusión mediada. Los restos o remanentes de quilomicrones, aún enriquecidos con astaxantina, son subsecuentemente captados por los hepatocitos a través de endocitosis mediada por el receptor de ApoE.
En el hígado, la astaxantina se incorpora de forma orquestada a las lipoproteínas de muy baja densidad (VLDL) y, mediante remodelado vascular subsiguiente, a las lipoproteínas de baja densidad (LDL) y de alta densidad (HDL). Son predominantemente las partículas de HDL y LDL las que actúan como vehículos de transporte de alta afinidad hacia los tejidos extrahepáticos con gran demanda metabólica: el miocardio, el tejido cerebral, la retina y el músculo esquelético estriado.
Una vez internalizada en las células diana, la astaxantina evade la acumulación citosólica aleatoria y migra preferentemente hacia las membranas de orgánulos con elevada densidad lipídica, especialmente las mitocondrias y el retículo endoplasmático. En la membrana mitocondrial interna, su inserción restablece la homeostasis bioenergética, modulando los gradientes iónicos y salvaguardando a los citocromos de la inactivación por radicales.
Alta Culinaria y Sincretismo Lipídico: Estrategias en los Fogones
La integración gastronómica de la astaxantina exige un dominio absoluto de la termodinámica de los lípidos culinarios. La aplicación de cocciones violentas o frituras a altas temperaturas desestabiliza los dobles enlaces conjugados de la cadena poliénica, induciendo una isomerización geométrica irreversible de la forma nativa todo-trans a los isómeros cis (9-cis, 13-cis), los cuales presentan una reactividad biológica y una biodisponibilidad ostensiblemente inferiores.
La estrategia culinaria de vanguardia preconiza técnicas de infusión lipídica en vacío y temperaturas controladas (entre 48 °C y 62 °C). Al confitar lentamente pescados como el salmón o mariscos salvajes en un baño de aceite de oliva virgen extra de cosecha temprana rico en polifenoles (como el hidroxitirosol y la oleuropeína), estos antioxidantes fenólicos del aceite actúan como «escudos de sacrificio», neutralizando cualquier amago oxidativo y preservando la astaxantina en su estado nativo todo-trans.
Asimismo, el diseño de emulsiones estables con base de yema de huevo de pastoreo y aceites monovarietales (como la variedad picual o cornicabra) aporta un caudal decisivo de fosfatidilcolina, imitando con exactitud los complejos de fosfolípidos que potencian la captación celular del carotenoide en el medio intestinal. La incorporación en el recetario de crustáceos enteros mediante extracciones lipídicas lentas de cabezas y carapaces —donde se concentran las mayores densidades de monoésteres de astaxantina— representa el culmen de la optimización organoléptica y metabólica.
Esta alquimia culinaria dialoga de forma virtuosa con grandes piezas marinas como el célebre Atun Rojo de Almadraba a la Brasa con Costra de Semillas de Hinojo Silvestre y Tapenade, donde los ácidos grasos omega-3 intramusculares del túnido actúan como la matriz lipídica complementaria perfecta para amplificar la biodisponibilidad de pigmentos bioactivos ingeridos en el mismo menú.
La Astaxantina Frente a Otros Carotenoides: El Escudo Definitivo
Para calibrar la supremacía biológica de la astaxantina es instructivo contrastarla directamente con sus análogos de la familia de los carotenoides, como el beta-caroteno, el licopeno, la luteína y la zeaxantina. Aunque todos comparten una arquitectura poliénica capaz de desactivar especies radicalarias, sus diferencias en sustitución de anillos determinan divergencias radicales en su comportamiento celular.
El beta-caroteno, al carecer de grupos hidroxilo o ceto en sus extremos, es enteramente no polar. Como consecuencia de ello, se desposiciona horizontalmente en el interior hidrófobo de la doble capa lipídica. A concentraciones elevadas o bajo tensiones elevadas de oxígeno celular, el beta-caroteno puede experimentar autooxidación y comportarse de facto como un pro-oxidante, desestabilizando la membrana. La astaxantina jamás exhibe actividad pro-oxidante en sistemas biológicos, debido a que sus grupos funcionales estabilizan los electrones capturados sin desatar reacciones secundarias en cadena.
El licopeno, caroteno lineal no cíclico abundante en el tomate y ensalzado en el universo botánico, posee una velocidad colosal en la captura de oxígeno singlete en fases apolares, pero carece de la versatilidad de la astaxantina para interactuar simultáneamente con la fase acuosa citosólica y el medio lipídico. Las preparaciones que combinan ambos compuestos, sin embargo, ofrecen una protección aditiva sinérgica formidable contra la peroxidación inducida por la luz ultravioleta.
La luteína y la zeaxantina, aunque comparten con la astaxantina la condición de xantófilas (poseen grupos hidroxilo terminales), carecen de los grupos ceto (-C=O) en el carbono 4. Esta ausencia química reduce su eficacia de transferencia electrónica y aminora su capacidad de acoplamiento rígido con la cardiolipina en la membrana mitocondrial, consolidando a la astaxantina marina como el compuesto más completo para el blindaje mitocondrial humano.
Dosificación, Ritmos Circadianos y Farmacocinética Práctica
El aprovechamiento celular de la astaxantina está gobernado por una farmacocinética de absorción no lineal y dependiente de la saturación de los transportadores intestinales. Los estudios de cinética plasmática demuestran que tras la ingestión oral de una dosis única, la concentración máxima en sangre (Cmax) se alcanza típicamente entre las 8 y las 12 horas posteriores (Tmax), reflejando la lentitud del tránsito por la linfa y la lenta depuración de los quilomicrones.
La vida media de eliminación (t½) de la astaxantina en humanos es prolongada, oscilando entre las 16 y las 24 horas, lo que respalda un protocolo de administración diario o regular que permita alcanzar una meseta o estado estacionario (steady state) plasmático tras aproximadamente una a dos semanas de consumo constante. Las dosis terapéuticas y preventivas avaladas por la literatura clínica varían entre 4 mg y 12 mg diarios, umbrales en los cuales se evidencia una reducción sustancial del malondialdehído (MDA) plasmático y una optimización en la resistencia oxidativa de las lipoproteínas LDL.
El ritmo circadiano de la secreción biliar y la motilidad gastrointestinal juega un papel preponderante. La secreción de ácidos biliares y la actividad lipásica alcanzan sus picos máximos en sincronía con la ingesta diurna principal que contenga grasas sólidas y líquidas. Por ende, la ingesta matutina o al mediodía, integrada en una comida rica en lípidos estructurados, maximiza el porcentaje de incorporación a las micelas en comparación con tomas nocturnas aisladas en ayuno.
Existe además un efecto acumulativo en el tejido epitelial y muscular esquelético: la suplementación sostenida durante un mínimo de cuatro a ocho semanas incrementa la concentración de astaxantina intramiocelular, traduciéndose en una mitigación palpable de la fatiga metabólica y en un menor daño ultraestructural del sarcómero tras esfuerzos físicos intensos.
Sinergias Epigenéticas: Astaxantina y Polifenoles Terrestres
Más allá de su rol termodinámico pasivo como barredor de radicales, la astaxantina opera como una molécula señalizadora de alta jerarquía epigenética. Actúa activando selectivamente la vía del factor nuclear eritroide 2 relacionado con el factor 2 (Nrf2). Tras liberarse de su represor citosólico Keap1, Nrf2 se transloca al núcleo celular y se une a los elementos de respuesta antioxidante (ARE), desencadenando la transcripción masiva de enzimas protectoras de fase II: superóxido dismutasa, catalasa, glutatión peroxidasa y hemooxigenasa-1 (HO-1).
Esta modulación genética se amplifica de forma exponencial cuando la astaxantina converge con polifenoles procedentes de matrices botánicas terrestres. La interacción con compuestos como el resveratrol de la uva tinta, la quercetina presente en las alcaparras y cebollas moradas, o los flavonoides del cacao amargo desencadena un fenómeno de doble cerrojo: los polifenoles estimulan la activación de las sirtuínas (SIRT1 y SIRT3), las desacetilasas maestras de la biogénesis mitocondrial, mientras que la astaxantina asegura la integridad biofísica de las membranas sobre las cuales operarán los nuevos orgánulos.
En el universo culinario tradicional, esta unión ancestral se encuentra implícita en preparaciones marinadas del litoral, como los salazones curados con especias rojas o las emulsiones marinas donde se funden pimentones botánicos con aceites de pescado. Un ejemplo magistral de diálogo con extractos terrestres ahumados puede contemplarse en el estudio de las maderas y pimientos en el Pimentón de La Vera DOP: El Oro Rojo Ahumado en Secaderos de Roble, donde los carotenoides terrestres como la capsantina y capsorrubina dialogan estéticamente y bioquímicamente con el universo de los pigmentos antioxidantes liposolubles.
La coadministración con ácido alfa-lipoico y coenzima Q10 (ubiquinona/ubiquinol) crea a su vez una red de reciclaje redox continuo: la astaxantina anclada a la membrana neutraliza el radical peroxilo primario, el ubiquinol regenera la capacidad reductora local y el glutatión acuoso recicla el sistema desde el interior citoplasmático, blindando la célula de forma integral.
Mitos y Evidencia Clínica: Dismitificando las Megadosis y la Pureza
El auge de la nutracéutica ha rodeado a la astaxantina de una plétora de afirmaciones hiperbólicas y falsas concepciones comerciales que resulta perentorio esclarecer bajo la lupa del método científico. El primer mito recurrente sostiene que «a mayor dosis diaria consumida, mayor preservación celular». La evidencia farmacocinética refuta de plano esta asunción: los transportadores intestinales SR-BI y la capacidad de incorporación a los quilomicrones presentan un techo cinético de saturación a partir de los 16-20 mg por toma única; dosis superiores derivan sencillamente en una menor fracción de absorción relativa y en una eliminación fecal pasiva del excedente no micelado.
El segundo mito crucial radica en la supuesta equivalencia biológica entre la astaxantina derivada de la fermentación sintética petroquímica (obtenida a partir de precursores de hidrocarburos) y la astaxantina natural procedente de Haematococcus pluvialis o del krill. La variante sintética consiste en una mezcla racémica de tres enantiómeros: (3R, 3'R), (3R, 3'S) y (3S, 3'S) en proporciones 1:2:1, mientras que la astaxantina natural de la microalga se manifiesta con una pureza quiral casi absoluta en la configuración enantiomérica (3S, 3'S). Esta última exhibe una afinidad estereoselectiva y una capacidad de estabilización de la membrana mitocondrial radicalmente superior en estudios con modelos celulares humanos.
Asimismo, es común la creencia errónea de que la astaxantina puede sustituir por completo a los protectores solares tópicos frente al daño por radiación ultravioleta. Si bien la ingesta regular de astaxantina mitiga de forma clínicamente constatada la formación de eritema inducido por UV, reduce la sobreexpresión de metaloproteinases de matriz (MMP-1) y atenúa el fotoenvejecimiento celular prematuro, opera como un fotoprotector sistémico interno y un modulador del estrés fototóxico, no como una barrera física refractaria de luz.
La evidencia contemporánea sitúa a la astaxantina no como una panacea mágica aislada, sino como la pieza angular de un ecosistema nutricional basado en alimentos integrales marinos, grasas no refinadas y hábitos de vida que respeten el descanso mitocondrial y la actividad metabólica regular.
Pautas Nutricionales & Recomendaciones Dietéticas
Vectorización oleosa obligatoria: Nunca consuma suplementos ni extractos de astaxantina con el estómago vacío o únicamente con líquidos acuosos; acompáñelos siempre con al menos 10-15 g de grasa saludable (AOVE, aguacate o pescado graso) para inducir la secreción biliar y la formación de micelas mixtas.
Control térmico culinario: Al cocinar pescados ricos en astaxantina como el salmón salvaje o la trucha asalmonada, evite temperaturas de superficie superiores a 130 °C que degradan el isómero nativo todo-trans; opte por la cocción suave al vacío (sous-vide a 50-54 °C) o el confitado en aceite tibio.
Sinergia con fosfatidilcolina: Favorezca combinaciones culinarias que incluyan lecitina de yema de huevo o mariscos con exoesqueleto blando; los fosfolípidos actúan como autoemulsionantes que multiplican la captación celular del carotenoide a través de los transportadores CD36 y SR-BI.
Consistencia frente a megadosis: Priorice un consumo diario moderado (entre 4 y 8 mg al día en la dieta o nutracéuticos de origen microalgal) durante períodos prolongados de al menos 8 a 12 semanas, logrando así la saturación protectora estable en la membrana interna mitocondrial.
Preguntas y Respuestas Frecuentes (10 Claves)
Respuestas a las preguntas y aspectos técnicos más consultados sobre esta investigación gastronómica.
La astaxantina natural procede de la microalga Haematococcus pluvialis y se presenta en su mayor parte esterificada con ácidos grasos y en la configuración estereoisomérica pura (3S, 3'S), la cual posee una altísima biodisponibilidad y potencia antioxidante celular. La astaxantina sintética, obtenida por síntesis química a partir de derivados petroquímicos, se comercializa en forma de molécula libre no esterificada y está compuesta por una mezcla racémica de tres isómeros quirales (3R,3'R, 3R,3'S y 3S,3'S), mostrando una eficacia biológica notablemente inferior en ensayos clínicos humanos.
La astaxantina es una molécula intensamente lipófila e hidrófoba. En ausencia de lípidos en el bolo alimenticio que llega al duodeno, no se desencadena la liberación de colecistoquinina (CCK), impidiendo la secreción de sales biliares por la vesícula biliar y de lipasa por el páncreas. Sin estos elementos no pueden formarse las micelas mixtas necesarias para transportar el carotenoide a través de la capa de agua inmóvil del intestino hasta los enterocitos, eliminándose más del 90% de la dosis sin absorberse.
A dosis habituales de 4 a 12 mg al día, la astaxantina no suele provocar carotenodermia amarillenta visible. Sin embargo, con consumos diarios muy elevados y sostenidos (superiores a 20-30 mg diarios durante meses), puede aparecer un leve tono rosáceo o bronceado sutil en palmas de las manos y plantas de los pies debido a su acumulación selectiva en el tejido celular subcutáneo y lípidos de la epidermis, un efecto totalmente benigno y reversible al reducir la dosis.
Su longitud molecular de aproximadamente 4,5 nanómetros coincide con el espesor de la bicapa fosfolipídica. Sus dos anillos polares terminales se anclan en las superficies exterior e interior de la membrana mitocondrial mientras su puente poliénico queda insertado en el núcleo graso. Esta disposición atrapa radicales libres tanto dentro como fuera de la membrana, protegiendo a la cardiolipina y a las proteínas de la cadena respiratoria del daño por peroxidación sin alterar la fluidez de la membrana.
La mayor concentración natural de astaxantina en alimentos se localiza en el salmón salvaje sockeye o rojo (Oncorhynchus nerka), que contiene entre 30 y 45 mg de astaxantina por kilogramo de tejido muscular. Le siguen el salmón coho, el salmón real, la trucha ártica, el krill del océano austral, el cangrejo rojo y camarones boreales salvajes. En el salmón de acuicultura convencional, suele utilizarse suplementación añadida en pienso para aportar coloración.
El momento fisiológicamente idóneo es durante la comida principal que contenga una porción generosa de lípidos monoinsaturados o poliinsaturados (generalmente el almuerzo o el desayuno completo con huevos o aguacate). Los ritmos circadianos de secreción biliar e hidrólisis lipídica son más vigorosos durante el período diurno, optimizando la biosíntesis de quilomicrones que incorporarán la astaxantina a la circulación linfática.
No. A diferencia del beta-caroteno, el alfa-caroteno o la beta-criptoxantina, la astaxantina no puede ser escindida por la enzima beta-caroteno 15,15'-oxigenasa intestinal para convertirse en retinol (vitamina A). Esto constituye una ventaja toxicológica fundamental, ya que su consumo continuado a largo plazo no acarrea ningún riesgo de hipervitaminosis A ni toxicidad hepática por acumulación de retinoides.
Durante el ejercicio intenso prolongado, el músculo esquelético eleva drásticamente la generación de especies reactivas de oxígeno mitocondriales. La astaxantina acumulada en las fibras musculares amortigua este estrés oxidativo, reduce el daño al retículo sarcoplásmico y a la bomba de calcio, favorece la oxidación eficiente de ácidos grasos como combustible metabólico y disminuye los marcadores de daño muscular periférico como la creatina quinasa (CK).
Sí, la exposición a altas temperaturas (>150 °C) en sartenes secas o frituras destruye la configuración isomérica nativa todo-trans y descompone la cadena carotenoide. La cocción al vapor suave, el escalfado a baja temperatura o el confitado en aceite de oliva virgen extra por debajo de 70 °C preservan más del 85% de la molécula intacta y previenen la degradación oxidativa por contacto directo con el oxígeno del aire.
La astaxantina natural posee un extraordinario perfil de seguridad con designación GRAS (Generally Recognized As Safe). No obstante, debido a su modulación sobre la enzima 5-alfa reductasa y su potencial efecto antiplaquetario suave a dosis elevadas, se aconseja cautela y supervisión médica previa en personas bajo tratamiento con anticoagulantes orales directos (ej. warfarina, acenocumarol) o fármacos hormonales específicos antes de iniciar una pauta intensiva.