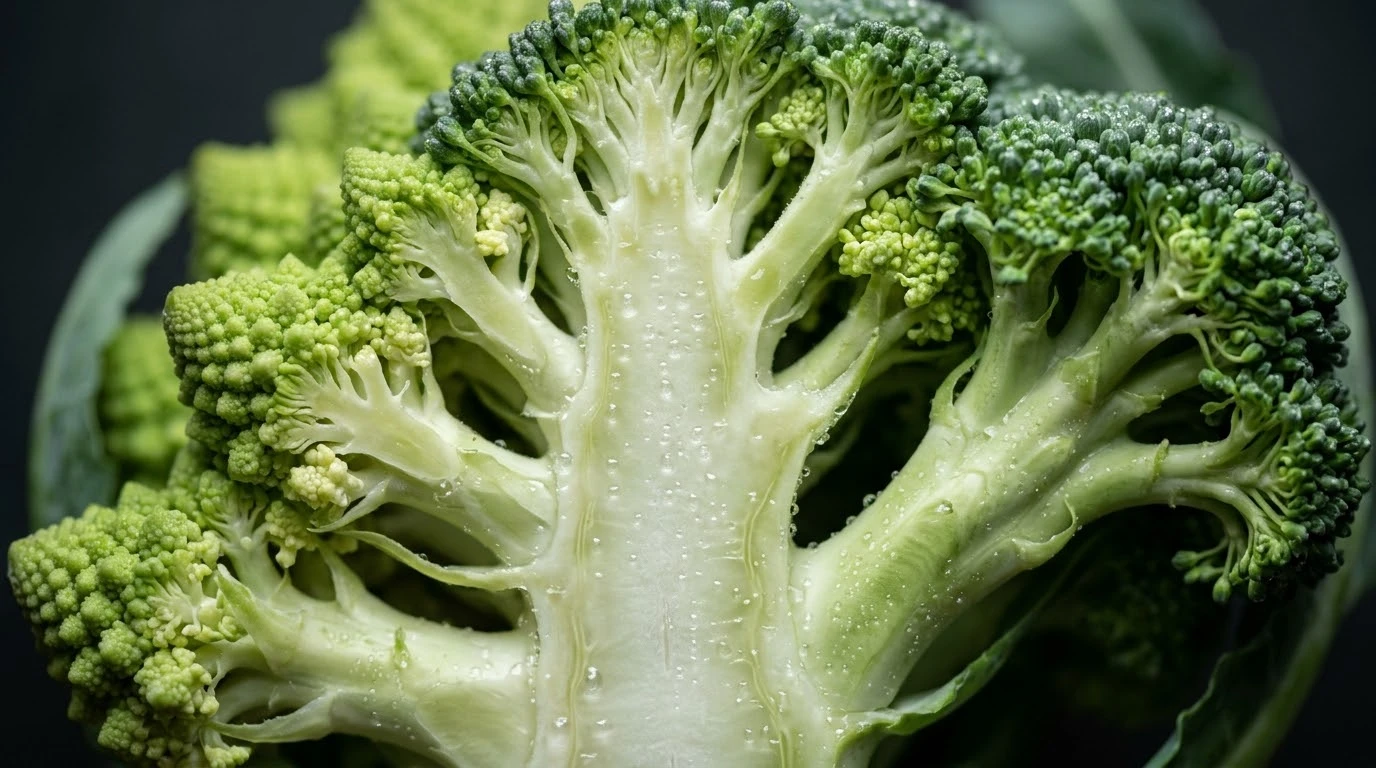
En el epicentro de la farmacopea culinaria moderna y la nutrición molecular, pocos metabolitos secundarios de origen vegetal han suscitado una fascinación tan profunda como el sulforafano (1-isotiocianato-4-metilsulfinilbutano). Este fitoquímico azufrado, confinado genómicamente dentro de la familia botánica de las Brassicaceae (brócoli, coles de Bruselas, coliflor, rúcula y col lombarda), representa uno de los inductores endógenos más potentes conocidos por la ciencia para activar la transcripción génica citoprotectora en el enterocito y el hepatocito humanos.
Sin embargo, el sulforafano no reside de manera libre ni preformada en el tejido de la planta intacta. Su génesis depende de una compleja y delicada sinfonía mecanoquímica: la compartimentación subcelular separa el sustrato inerte (la glucorafanina, un glucosinolato) de la maquinaria enzimática responsable de su hidrólisis biológica, la mirosinasa (tioglucósido glucohidrolasa). Para que el milagro bioquímico acontezca, es imprescindible la ruptura física de las vacuolas celulares y una estricta modulación termodinámica; una cocción agresiva o desinformada desnaturaliza irreversiblemente la mirosinasa antes de que pueda catalizar la reacción, reduciendo a cero el rendimiento del compuesto bioactivo.
Comprender la cinética térmica y la bioaccesibilidad del sulforafano no exige un aislamiento monástico ni la ingesta forzada de vegetales crudos e indigestos. La alta gastronomía celular demuestra que, mediante técnicas precisas como el reposo poscorte (hack and hold), el control milimétrico del vapor a baja temperatura o la adición estratégica de fuentes exógenas de mirosinasa viva (semillas de mostaza, daikon o rúcula fresca), es enteramente viable armonizar una experiencia organoléptica sublime con la máxima densidad molecular quimiopreventiva.
Ficha de Valor Nutricional & Evidencia Científica
Patrón dietético mediterráneo ancestral, quimioprevención molecular y longevidad celular
Glucorafanina, Sulforafano bioactivo (1-isotiocianato-4-metilsulfinilbutano), Enzima Mirosinasa (tioglucosidasa), Polifenoles antioxidantes
Translocación nuclear del factor Nrf2, inducción de enzimas de Fase II (GST, NQO1), inhibición de NF-κB y autofagia celular
Metanálisis biomédicos, cinética enzimática in vitro/in vivo y ensayos clínicos de biodisponibilidad farmacocinética (Johns Hopkins University, Linus Pauling Institute)
La Arquitectura Molecular del Sulforafano y la Vía Nrf2-ARE
Para comprender el impacto sistémico del sulforafano, es imprescindible examinar el funcionamiento basal de la célula frente al estrés oxidativo y electrofílico. En condiciones fisiológicas basales, la proteína sensora citoplasmática KEAP1 (Kelch-like ECH-associated protein 1) actúa como un freno homeostático, unida estrechamente al factor de transcripción nuclear Nrf2 (Nuclear factor erythroid 2-related factor 2), facilitando su constante ubiquitinación y degradación en el proteasoma 26S.
El sulforafano, dotado de un grupo funcional isotiocianato altamente electrofílico (-N=C=S), interactúa de manera covalente y específica con los residuos de cisteína reactivos de KEAP1 (particularmente Cys151). Esta alquilación molecular provoca un cambio conformacional en KEAP1, impidiendo la ubiquitinación de Nrf2. Como consecuencia directa, Nrf2 se estabiliza, se transloca al núcleo celular y se heterodimeriza con pequeñas proteínas Maf, uniéndose a secuencias promotoras específicas de ADN conocidas como los Elementos de Respuesta Antioxidante (ARE, Antioxidant Response Elements).
Esta activación orquesta la transcripción de una batería masiva de enzimas citoprotectoras y de desintoxicación de Fase II: glutatión S-transferasas (GST), NAD(P)H:quinona oxidorreductasa 1 (NQO1), hemo oxigenasa-1 (HO-1) y la subunidad catalítica de la glutamato-cisteína ligasa (GCLC). A diferencia de los antioxidantes exógenos de acción directa (como el ácido ascórbico o los tocoferoles), que actúan en una relación estequiométrica 1:1 neutralizando un radical libre a la vez antes de consumirse, el sulforafano cataliza una amplificación enzimática exponencial y sostenida en el tiempo, capaz de neutralizar millones de especies reactivas de oxígeno durante varios días tras una única ingesta biodisponible.
Asimismo, la investigación biomédica de vanguardia confirma que el sulforafano ejerce una potente actividad reguladora pleiotrópica: inhibe la translocación del factor nuclear proinflamatorio NF-κB, atenuando la cascada de citocinas inflamatorias (TNF-α, IL-6), e induce la inhibición selectiva de las histona desacetilasas (HDAC). Este último mecanismo epigenético restaura la expresión de genes supresores de tumores que han sido silenciados por modificaciones aberrantes de la cromatina en diversas líneas celulares senescentes o transformadas.
La Paradoja de la Mirosinasa y la Compartimentación Celular
En la fisiología botánica de las brásicas, el sistema glucorafanina-mirosinasa no fue diseñado primariamente para la longevidad de los mamíferos, sino como un ingenioso mecanismo de defensa química bidireccional contra insectos herbívoros y patógenos fúngicos, bautizado históricamente por los etnobotánicos como la bomba de mostaza. En el tejido vegetal indemne, la glucorafanina permanece almacenada en el lumen de las vacuolas celulares de las células parenquimatosas, mientras que la enzima mirosinasa reside secuestrada en células idioblásticas especializadas (células mirosínicas).
Cuando la masticación, el procesado mecánico culinario o el ataque de un herbívoro desgarra la integridad de las paredes celulares de celulosa y pectina, las barreras compartimentales colapsan de forma instantánea. La glucorafanina entra en contacto con la mirosinasa en un entorno acuoso, iniciándose la rotura del enlace tioglucosídico mediante la escisión de la molécula de D-glucosa, generando un intermediario inestable denominado aglicona (tiohidroximato-O-sulfato).
El destino final de esta aglicona depende radicalmente de las condiciones físico-químicas del medio, tales como el pH, la presencia de iones de hierro (Fe²⁺) y la actividad de una proteína moduladora auxiliar: la proteína formadora de epitionitrilo (ESP, Epithiospecifier Protein). Si la ESP se encuentra activa o el medio es excesivamente ácido, la reacción se desvía desfavorablemente hacia la formación de sulforafano nitrilo (1-ciano-4-metilsulfinilbutano), un metabolito carente de propiedades quimiopreventivas y desprovisto de afinidad por el factor Nrf2. La meta culinaria consiste en desnaturalizar la ESP manteniendo intacta la mirosinasa, favoreciendo la reordenación espontánea tipo Lossen que maximiza el rendimiento absoluto de sulforafano puro.
Cinética Térmica y Termolabilidad Enzimática en la Cocción
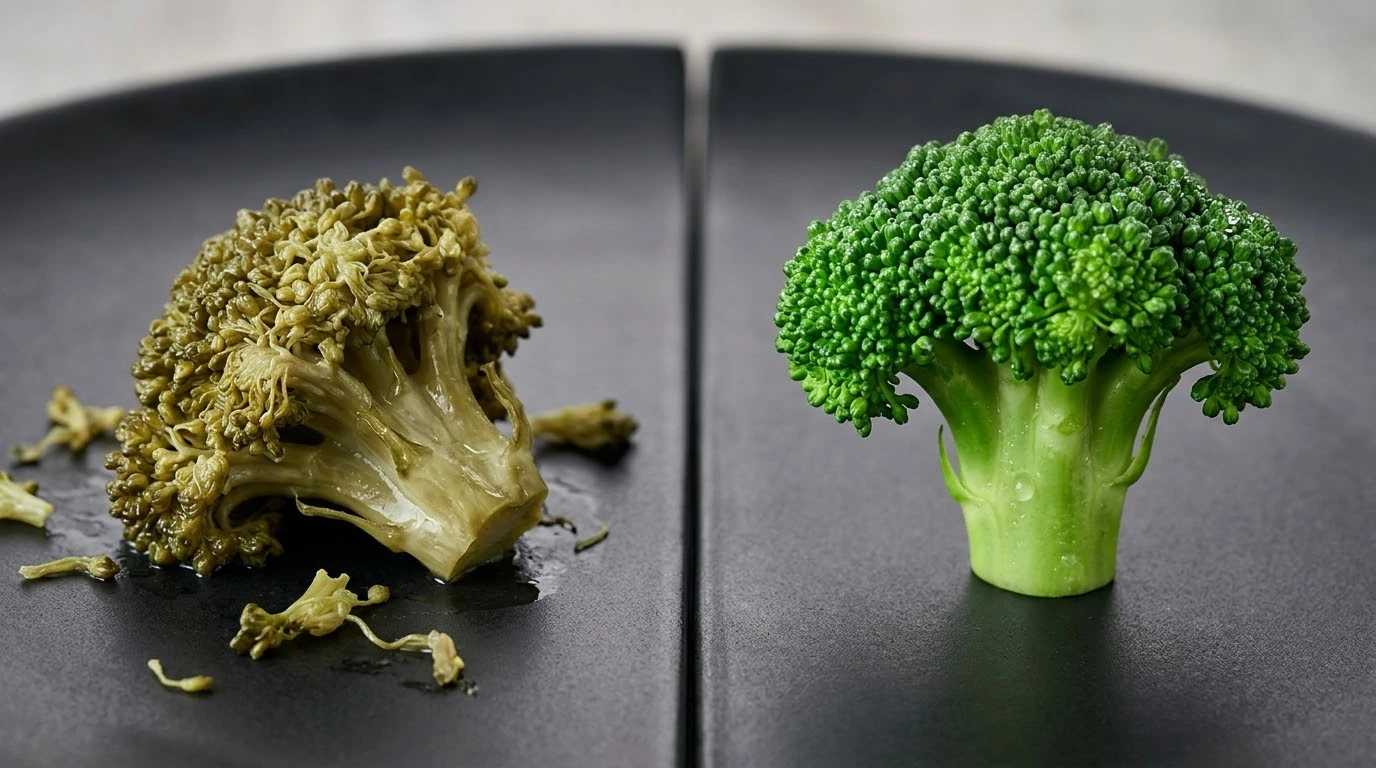
El desafío nuclear en la preparación culinaria de las brásicas estriba en la asimetría térmica entre la mirosinasa y la proteína formadora de epitionitrilo. Ambas son enzimas proteicas termolábiles, pero poseen diferentes curvas de desnaturalización térmica conformacional. La ESP es sumamente sensible al calor: comienza a perder su estructura terciaria a partir de los 40 °C y queda irreversiblemente inactivada al alcanzar los 50-55 °C.
Por el contrario, la enzima mirosinasa demuestra una mayor estabilidad térmica: conserva su plena capacidad catalítica de hidrólisis entre los 40 °C y los 60 °C, experimentando una drástica caída de actividad por encima de los 65 °C, y una desnaturalización irreversible y completa cuando el tejido alcanza los 70 °C o más. En la cocción tradicional por ebullición o fritura a temperaturas superiores a 100 °C, la mirosinasa es exterminada en menos de sesenta segundos, abortando toda posibilidad de conversión endógena de glucorafanina a sulforafano.
Para profundizar en cómo la termodinámica de los cortes influye en el comportamiento de los tejidos celulares y la absorción de calor, resulta sumamente instructivo consultar El Dogma del Mise en Place: Termodinámica de la Organización, Cinética Térmica y Precisión Culinaria. En la tabla comparativa siguiente se ilustra la cinética de degradación enzimática frente a la biodisponibilidad del sulforafano según el método térmico empleado:
El Método Hack and Hold y la Activación Poscorte
El método culinario de vanguardia conocido en la literatura científica y gastronómica como Hack and Hold (Cortar y Esperar) representa la aplicación práctica más elegante de la biocinética a la cocina diaria. Este protocolo no requiere instrumental de laboratorio complejo, sino únicamente la gestión rigurosa del tiempo y la mecánica de corte antes de aplicar cualquier fuente de calor a las verduras brásicas.
El fundamento del método es incontestable: al picar, cortar finamente en brunoise o triturar los floretes y tallos del brócoli crudo a temperatura ambiente, provocamos la liberación celular y ponemos en contacto la mirosinasa con la glucorafanina en fase acuosa. Si dejamos reposar el vegetal cortado durante un intervalo de 40 a 45 minutos antes de cocinarlo, la mirosinasa completa casi el 100% de la conversión enzimática hacia sulforafano en frío.
Una vez que el sulforafano ha sido generado en el tejido del vegetal, su estructura molecular manifiesta una termoestabilidad significativamente superior a la de la enzima que lo originó. El sulforafano resiste temperaturas moderadas de salteado o vapor breve sin fragmentarse. Por tanto, incluso si la mirosinasa es destruida posteriormente durante la cocción para ablandar las fibras y garantizar una textura gastronómica excelsa, el sulforafano bioactivo preformado permanece intacto y listo para su absorción en el tubo digestivo.
El Fenómeno del Rescate Enzimático en Fase Culinaria
¿Qué ocurre cuando disponemos de brócoli o coliflor que ya ha sido sometido a un tratamiento térmico severo que destruyó toda su mirosinasa nativa (por ejemplo, verduras ultracongeladas industrialmente o fondos de verduras previamente escaldados)? La ciencia nutricional ha validado una estrategia terapéutica y organoléptica fascinante: el rescate enzimático exógeno.
Dado que la glucorafanina es una molécula térmicamente robusta que sobrevive a la cocción convencional, el vegetal cocinado continúa albergando su precursor intacto; lo que le falta es el catalizador biológico. Al añadir a esa verdura cocida una fuente minúscula de mirosinasa exógena cruda, la hidrólisis se reactiva de forma inmediata y explosiva en el plato justo antes de su consumo o en la cavidad gástrica.
Las fuentes más eficaces y gastronómicamente armoniosas para orquestar este rescate enzimático incluyen:
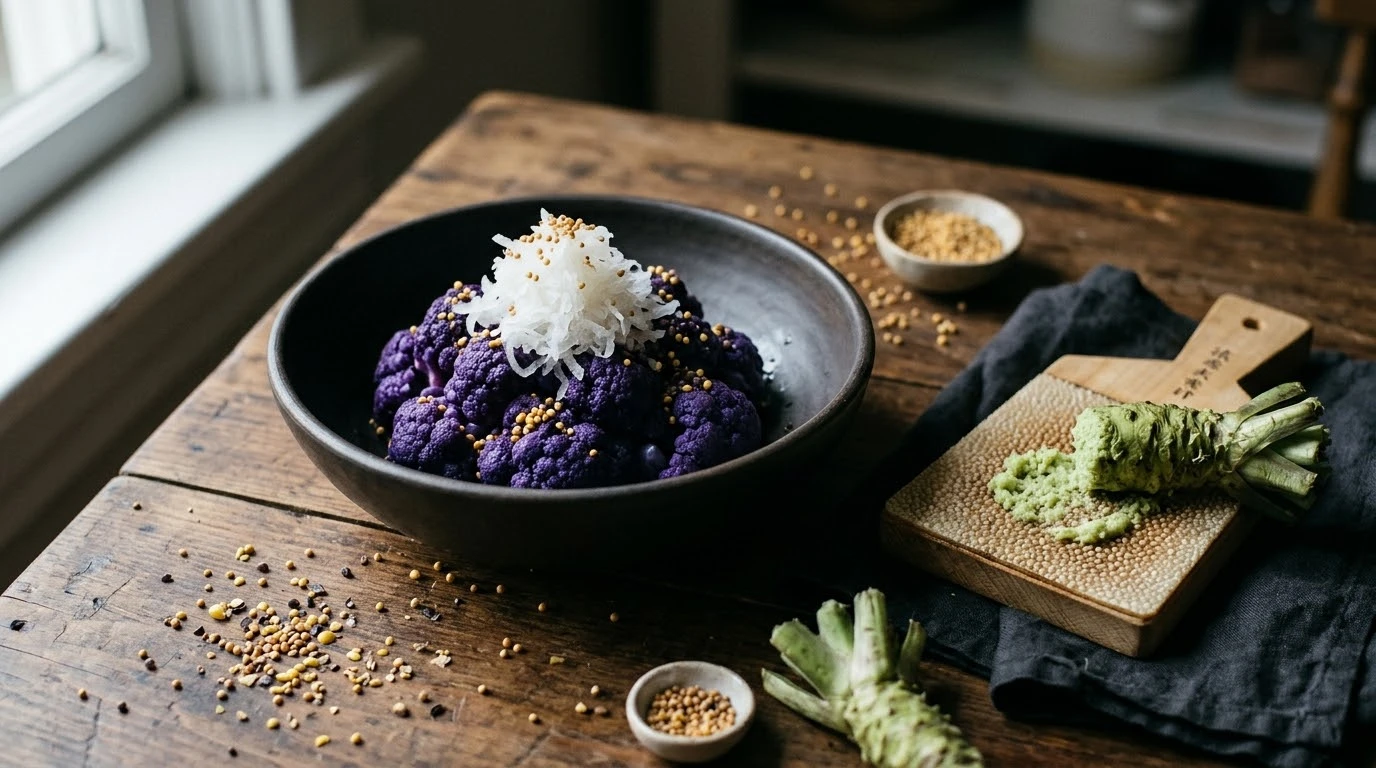
- Semillas de mostaza morena o negra molidas (Brassica nigra o Brassica juncea): Aportan una densidad de mirosinasa excepcionalmente pura; una pizca de apenas 1 gramo es capaz de rescatar un plato entero de coliflor cocida.
- Rábano Daikon crudo rallado (Raphanus sativus): Su textura fresca, picor limpio y alto tenor de mirosinasas activas actúan en segundos sin alterar el perfil cromático del plato.
- Hojas de rúcula silvestre cruda (Diplotaxis tenuifolia): Añadidas en el último segundo del emplatado, proporcionan contraste herbal y reactivación bioquímica.
- Brotes frescos de rábano o berro de agua: Complemento de alta cocina con una actividad catalítica por gramo hasta quince veces superior a la del brócoli maduro.
Germinados de Brásica y Picos de Concentración Fitoquímica
En el universo de las brásicas, la densidad fitoquímica no se distribuye de manera homogénea a lo largo del ciclo vital del vegetal. Los descubrimientos pioneros de la Universidad Johns Hopkins demostraron que los germinados de brócoli de 3 a 5 días de edad contienen concentraciones de glucorafanina entre 20 y 50 veces superiores a las observadas en las cabezas maduras de brócoli comercial.
En esta fase ontogenética temprana, la semilla concentra toda la dotación defensiva molecular destinada a proteger el desarrollo del cotiledón emergente contra herbívoros y patógenos. Consumir una ración de apenas 30 gramos de microgreens o germinados de brócoli frescos equivale bioquímicamente a ingerir más de un kilogramo de brócoli cocinado estándar, sin sobrecargar el volumen gastrointestinal ni exigir largas digestiones de celulosa estructural.
Para profundizar en el impacto de los estadios de recolección en los equilibrios moleculares y las transformaciones enzimáticas de los vegetales en cocina, puede consultarse Cocción por Estacionalidad: El Control Físico-Químico del Punto Óptimo de Madurez Celular. La microhuerta doméstica se convierte así en un reactor biológico de medicina preventiva, siempre que los germinados se mastiquen con calma y exhaustividad para liberar in situ la enzima sobre el precursor celular.
Farmacocinética, Absorción Entérica y Microbiota Intestinal
Una vez ingerido, el sulforafano presenta una farmacocinética extraordinaria en comparación con la inmensa mayoría de los polifenoles botánicos. Al ser una molécula hidrofóbica de bajo peso molecular y neutra, no depende exclusivamente de transportadores activos saturables; se absorbe con gran rapidez en el duodeno y el yeyuno proximal mediante difusión pasiva transcelular, alcanzando su concentración plasmática máxima (Cmax) entre 1,5 y 2 horas posteriores a la ingesta.
Una vez internalizado en el enterocito y el torrente circulatorio, el sulforafano entra de inmediato en la vía del ácido mercaptúrico. Se conjuga enzimáticamente con el tripéptido glutatión a través de las glutatión S-transferasas (GSTs), viaja hacia el parénquima hepático y es metabolizado sucesivamente a cisteinilglicina-sulforafano, cisteína-sulforafano y, finalmente, a N-acetilcisteína-sulforafano (sulforafano-NAC), metabolito que se excreta de manera cuantitativa por la orina a lo largo de las 24 a 48 horas siguientes.
En individuos que ingieren brásicas hervidas donde la mirosinasa fue totalmente aniquilada por el calor, no todo está perdido: la microbiota del colon humano alberga cepas bacterianas comensales (notablemente de los géneros Bifidobacterium, Lactobacillus y Bacteroides) que expresan actividad tioglucosidasa intracelular. No obstante, la tasa de conversión microbiana colónica es notablemente lenta, errática y de bajo rendimiento (apenas un 5% a 10% de biodisponibilidad relativa, frente al 60% a 85% logrado cuando la mirosinasa vegetal actúa directamente en la cocción controlada previa).
Sinergias Moleculares y el Papel de la Matriz Lipídica
Ningún nutriente ni fitoquímico ejerce su acción en el vacío; la matriz alimentaria global modula drásticamente la tasa de absorción y los destinos metabólicos del compuesto. Aunque el sulforafano presenta una solubilidad apreciable en agua, la naturaleza lipofílica de su cadena alifática metilsulfinilbutano se beneficia de forma sustancial cuando se formula conjuntamente con lípidos de cadena larga de alta calidad.
La coingesta de brásicas al vapor con Aceite de Oliva Virgen Extra (AOVE) rico en polifenoles como el oleocanthal y el hidroxitirosol no solo estimula la secreción coordinada de sales biliares y la formación de micelas mixtas facilitadoras del transporte epitelial, sino que proporciona un escudo antioxidante que previene la degradación prematura del isotiocianato en la luz del lumen gástrico.
Asimismo, se han descubierto sinergias funcionales cruciales entre el sulforafano y otros compuestos bioactivos de la alta cocina:
- Curcumina (de Curcuma longa): Produce una acción aditiva y sinérgica en la inducción de la hemo oxigenasa-1 (HO-1), amplificando la respuesta antioxidante.
- Safranal y Crocinas: Presentes de forma excelsa en especias milenarias. Para comprender la cinética y el tostado óptimo de estos elixires aromáticos, es imprescindible explorar la obra sobre Azafrán de La Mancha DOP: La Farmacopea Culinaria, Tostado Lento y la Cinética Térmica del Safranal Puro.
- Selenio: Mineral traza esencial que incrementa la actividad catalítica de las selenoproteínas y glutatión peroxidasas activadas aguas abajo por Nrf2.
Pautas Nutricionales & Recomendaciones Dietéticas
Regla Hack and Hold estricta: Picar minuciosamente el brócoli y dejarlo reposar al aire a 20-22 °C durante 40 minutos exactos antes de exponerlo a cocción.
Control del vapor a 60 °C: Cocinar al vapor suave un máximo de 3 a 4 minutos; el vegetal debe conservar su verde clorofila brillante y una textura crujiente al dente.
El comodín de la mirosinasa exógena: Si utiliza brásicas congeladas o sobrecocidas, espolvoree 1 g de semillas de mostaza cruda recién molidas para reactivar la hidrólisis.
Masticación consciente: En germinados y ensaladas crudas, triture meticulosamente cada bocado; la lisis mecánica es el disparador indispensable de la bomba celular.
Preguntas y Respuestas Frecuentes (10 Claves)
Respuestas a las preguntas y aspectos técnicos más consultados sobre esta investigación gastronómica.
No necesariamente. Aunque el brócoli crudo conserva la mirosinasa, también mantiene activa la proteína formadora de epitionitrilo (ESP), que desvía parte de la glucorafanina hacia sulforafano-nitrilo (inactivo). Un vapor suave a 55-60 °C desactiva la ESP preservando la mirosinasa, logrando un rendimiento de sulforafano a menudo superior al del vegetal totalmente crudo, con menor distensión gástrica.
La mirosinasa es una proteína globular termolábil que se desnaturaliza por completo a temperaturas superiores a los 65-70 °C en menos de un minuto. Además, el agua de ebullición disuelve y lixivia la glucorafanina (hidrosoluble), perdiéndose ambos compuestos en el agua de descarte si no se aprovecha como caldo o fondo.
Mediante el rescate enzimático: una vez que el puré o crema haya descendido a unos 50 °C o menos, incorpore una pizca de mostaza cruda molida (Brassica nigra), un toque de wasabi auténtico recién rallado o un puñado de rúcula cruda fresca triturada. La enzima exógena transformará la glucorafanina térmica remanente en sulforafano en escasos minutos.
Muchos suplementos comerciales contienen únicamente glucorafanina purificada sin mirosinasa activa, dependiendo al 100% de la errática conversión de la microbiota colónica. Los preparados que contienen sulforafano libre estabilizado son muy costosos e inestables; la matriz de alimento entero (vegetal + grasa virgen + mirosinasa activa) ha demostrado farmacocinéticamente una biodisponibilidad y tolerabilidad superiores.
Porque en los cotiledones de 3 a 5 días de germinación la planta concentra toda la reserva bioquímica defensiva para su ciclo vital temprano, albergando entre 20 y 50 veces más glucorafanina por gramo de peso húmedo que la inflorescencia madura comercializada en frutería.
El microondas excita las moléculas de agua de forma ultra-rápida, alcanzando los 70-80 °C en segundos en el núcleo del tejido, lo que aniquila la mirosinasa si se usa a máxima potencia. No obstante, si se corta el brócoli previamente (Hack and Hold durante 40 min), un golpe de microondas breve ya no impedirá la absorción del sulforafano preformado.
Las verduras ultracongeladas industriales son invariablemente escaldadas en vapor o agua hirviendo antes de ser congeladas para inactivar enzimas de pardeamiento y asegurar inocuidad microbiológica. Este proceso aniquila la mirosinasa nativa. Por ello, las brásicas congeladas exigen indefectiblemente el añadido de una fuente de mirosinasa exógena al servirse.
Sí, ciertas bacterias colónicas del microbioma humano poseen enzimas con actividad de tioglucosidasa capaces de hidrolizar la glucorafanina. Sin embargo, la tasa de absorción en el colon distal es mucho más baja y variable (5-10%) en comparación con la absorción masiva y limpia que ocurre en el yeyuno proximal (60-85%).
Drásticamente. El brócoli tradicional (Brassica oleracea var. italica) es el rey indiscutible de la glucorafanina (precursora del sulforafano). Otras brásicas como la col lombarda o el repollo contienen mayores proporciones de otros glucosinolatos (como la sinigrina o glucobrasicina), que generan alilisotiocianato o indol-3-carbinol, con propiedades saludables pero vías metabólicas distintas.
Los ensayos clínicos aleatorizados en humanos fijan la dosis eficaz biológica entre 20 y 50 micromoles diarios de sulforafano bioaccesible. Esto se logra con facilidad mediante 100-150 g de brócoli preparado con el método 'Hack and Hold' o apenas 20-30 g de germinados frescos de brócoli de tres días.