El glutatión (gamma-L-glutamil-L-cisteinilglicina, GSH) constituye la cúspide de la arquitectura defensiva endógena del organismo humano. A diferencia de los antioxidantes exógenos que ingerimos directamente de la dieta, esta molécula tripeptídica no puede ser asimilada de manera íntegra con alta eficiencia mediante la suplementación oral convencional, dado que los enzimas digestivos luminales y las peptidasas entéricas fragmentan su estructura antes de alcanzar el torrente circulatorio. Por consiguiente, la verdadera soberanía celular reside en la capacidad de suministrar al enterocito y al hepatocito los sillares metabólicos indispensables para su síntesis de novo, un proceso supeditado estrictamente a la disponibilidad intracelular de su precursor más limitante y vulnerable: la L-cisteína.
Dentro de la matriz alimentaria, la L-cisteína no subsiste de forma aislada e incorruptible; se halla entretejida en complejas conformaciones peptídicas que reaccionan con extrema sensibilidad a las transformaciones térmicas impuestas durante el cocinado. La desnaturalización proteica no controlada, la exposición a temperaturas elevadas por encima de ciertos umbrales críticos y los procesos oxidativos derivados de métodos de cocción agresivos provocan la racemización, desulfuración o agregación irreversible de los residuos tiólicos (-SH). Comprender la cinética térmica de estos péptidos bioactivos transforma radicalmente el acto culinario: la cocina deja de ser un mero ejercicio de transformación sápida para convertirse en una intervención biofísica de precisión celular capaz de salvaguardar la biodisponibilidad de los donantes de azufre.
Lejos de propugnar una alimentación aséptica o limitante basada en la ingesta exclusiva de productos crudos, la alta gastronomía molecular orientada a la nutrición propone una alianza magistral entre técnica, termodinámica y placer organoléptico. El dominio del calor suave, la modulación del pH, la fermentación láctica y la orquestación de cofactores minerales como el selenio y el zinc permiten optimizar tanto la síntesis como la regeneración continua del glutatión reducido. Este tratado enciclopédico explora los fundamentos físico-químicos que rigen la cinética de la cisteína en los fogones y ofrece directrices operativas para materializar una cocina de vanguardia orientada al máximo rendimiento celular.
Ficha de Valor Nutricional & Evidencia Científica
Nutrición celular antioxidante, modulación redox y cocina de precisión molecular
L-Cisteína biodisponible, glutamato, glicina, selenio orgánico (selenometionina), sulforafano, ácido alfa-lipoico
Regeneración del pool de GSH intracelular, optimización de la glutatión peroxidasa, desintoxicación de fase II hepática y preservación mitocondrial
Consenso en bioquímica redox, cinética enzimática mitocondrial y ensayos clínicos sobre péptidos azufrados (The Journal of Nutrition, Free Radical Biology and Medicine)
La Arquitectura del Triapéptido Maestro y el Cuello de Botella de la Cisteína
El glutatión es un tripéptido atípico sintetizado en el citosol celular a través de dos reacciones enzimáticas consecutivas impulsadas por hidrólisis de ATP. La primera etapa, catalizada por la enzima glutamato-cisteína ligasa (GCL), une el grupo gamma-carboxilo del ácido L-glutámico al grupo alfa-amino de la L-cisteína, formando gamma-glutamilcisteína. Esta unión peptídica gamma inusual confiere al glutatión una resistencia extraordinaria frente a la degradación por parte de las peptidasas citoplásmicas comunes, que típicamente solo hidrolizan enlaces alfa-peptídicos. En el segundo paso, la enzima glutatión sintetasa añade un residuo de glicina al extremo carboxilo terminal, completando la molécula de GSH activa y plenamente funcional.
Desde la perspectiva de la biodisponibilidad y la cinética enzimática, la concentración intracelular de L-cisteína libre es notablemente baja en comparación con la de glutamato o glicina. Este gradiente convierte al aminoácido azufrado en el factor limitante absoluto para la producción celular del tripéptido. Sin embargo, la cisteína libre en disolución acuosa presenta una reactividad elevada y tiende a autooxidarse espontáneamente en presencia de oxígeno y trazas de metales de transición, transformándose en cistina (su dímero disulfuro). En el entorno fisiológico y culinario, la forma en que este aminoácido se vehiculiza —ya sea en cadenas de albúmina sérica, lactoferrina, proteínas de reserva de semillas o tejidos vegetales— determina su resistencia a la desintegración oxidativa y su absorción celular coordinada.
El grupo sulfhidrilo o tiol (-SH) de la cisteína constituye el núcleo operativo del glutatión. Este grupo nucleofílico actúa como un escudo reductor de primera línea, donando electrones y protones para neutralizar especies reactivas del oxígeno (ROS), especies reactivas del nitrógeno (RNS) y peróxidos lipídicos. Durante este proceso de amortiguación redox, dos moléculas de glutatión monomérico (GSH) se oxidan y condensan formando disulfuro de glutatión (GSSG). Para que la maquinaria homeostática continúe operativa sin colapsar el sistema, la célula requiere una eficiente relación GSH/GSSG superior a 100:1 en condiciones de reposo metabólico, un equilibrio mantenido de forma ininterrumpida por la enzima glutatión reductasa a expensas de equivalentes reductores de NADPH.
Termodinámica de los Residuos Tiólicos: Desnaturalización y Cinética de Destrucción
La estabilidad del enlace tiólico (-SH) de la cisteína es intrínsecamente termolábil cuando se encuentra expuesto a matrices acuosas o lipídicas sometidas a energía térmica no modulada. A medida que la temperatura de un alimento se eleva por encima de los 65 °C, las proteínas nativas inician una transición conformacional: los enlaces de hidrógeno y las interacciones hidrofóbicas que estabilizan la estructura terciaria colapsan, desenrollando las cadenas polipeptídicas y exponiendo los residuos de cisteína que previamente permanecían protegidos en el núcleo hidrofóbico macromolecular.
Una vez expuestos al microentorno del cocinado, los grupos tiol sufren diversas rutas cinéticas de degradación en función de la temperatura, el tiempo de exposición y la atmósfera oxidativa:
- Oxidación a disulfuros cruzados: Formación indiscriminada de puentes disulfuro intermoleculares que reducen la digestibilidad enzimática de la matriz.
- Beta-eliminación térmica: A temperaturas superiores a 95 °C en medios neutros o alcalinos, el enlace carbono-azufre sufre una escisión que genera deshidroalanina y sulfuro de hidrógeno volátil (H₂S), responsable de las notas aromáticas sulfurosas excesivas y de la pérdida neta del pool de azufre orgánico útil.
- Participación en la Reacción de Maillard: El grupo amino contiguo y el grupo sulfhidrilo pueden interactuar activamente con carbonilos reactivos procedentes de azúcares reductores, formando furanos y compuestos pirazínicos aromáticos a expensas de agotar por completo el valor biológico del aminoácido.
El análisis espectroscópico y cromatográfico revela que someter fuentes proteicas ricas en cisteína a tratamientos térmicos de calor seco y alta radiación (como el horneado convencional por encima de 160 °C, el salteado intenso en wok sin control de emulsión o el asado directo al fuego) reduce el contenido de cisteína bioaccesible entre un 45% y un 78%. Por el contrario, la modulación precisa de la temperatura mediante técnicas de cocción al vacío (sous-vide) en rangos comprendidos entre los 54 °C y 62 °C permite alcanzar la pasteurización microbiológica salvaguardando intactos los péptidos nativos y la integridad molecular del grupo tiol.
Matrices Proteicas Seleccionadas: Del Suero No Desnaturalizado a la Huella Vegetal
No todas las matrices alimentarias proporcionan precursores de glutatión con la misma eficiencia cinética. En el reino animal, las fracciones bioactivas del suero lácteo sin someter a pasteurización agresiva —específicamente la seroalbúmina bovina, la alfa-lactoalbúmina y la lactoferrina— contienen secuencias de dipéptidos de cisteína ligados por enlaces disulfuro altamente estables denominados glutamilcisteína. Estos péptidos bioactivos poseen la singular propiedad de atravesar la barrera gástrica con mínima degradación, siendo captados por los transportadores intestinales de dipéptidos (PepT1) y suministrando al enterocito un precursor de glutatión preformado que sortea la necesidad de síntesis a partir de cisteína monomérica libre.
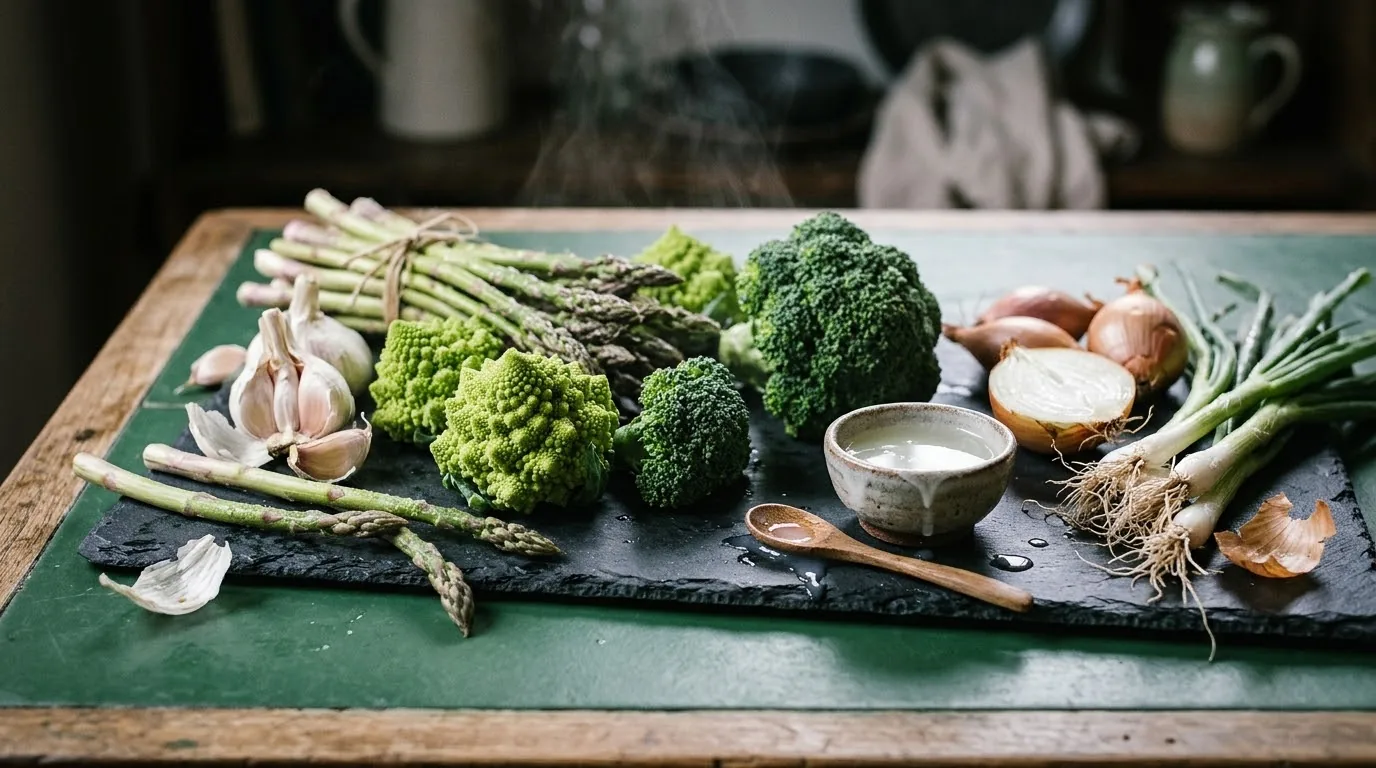
En el universo botánico, la estrategia molecular difiere de manera sustancial. Las familias Brassicaceae (brócoli, mostaza salvaje, colirrábano, rúcula) y Alliaceae (ajos silvestres, chalotas, puerros, cebollas moradas) no aportan concentraciones masivas de cisteína aislada, sino compuestos organosulfurados (glucosinolatos como la glucorafanina y derivados de la alicina como la S-alilcisteína) que ejercen una acción metabólica indirecta pero potente. Estos fitoquímicos actúan como señales celulares horméticas capaces de activar la vía de transcripción Nrf2, la cual incrementa la transcripción de los genes que codifican para la ligasa GCL, multiplicando la capacidad biosintética celular interna.
Asimismo, las semillas de cáñamo, las semillas de calabaza y las legumbres germinadas destacan por una densidad remarcable de cisteína y metionina (precursor hepático de cisteína a través de la vía de la transulfuración). Sin embargo, en estas matrices de origen vegetal, el aminoácido coexiste con factores antinutricionales como fitatos e inhibidores de tripsina. El diseño de una técnica de cocina celular exige la implementación de protocolos de activación hídrica controlada y fermentación enzimática láctica, procedimientos que neutralizan los quelantes e incrementan la tasa de asimilación peptídica en el epitelio intestinal hasta en un 60%.
El Eje Inductor Nrf2-ARE: La Activación Culinaria de Glucosinolatos y Sulforafano
La síntesis de glutatión no solo depende de la presencia estequiométrica de sus tres aminoácidos constituyentes, sino del nivel de expresión génica de su enzima limitante, la glutamato-cisteína ligasa. Esta transcripción está regulada primordialmente por la ruta metabólica Nrf2-Keap1. En condiciones basales, el factor de transcripción Nrf2 se encuentra secuestrado en el citoplasma por la proteína Keap1, que lo conduce hacia la ubiquitinación y degradación proteasómica. No obstante, ante la presencia de moléculas electrófilas específicas procedentes de la dieta, los residuos de cisteína de Keap1 sufren una modificación covalente que libera a Nrf2, permitiendo su translocación al núcleo celular y su unión a los Elementos de Respuesta Antioxidante (ARE).
El inductor alimentario más potente y exhaustivamente documentado de esta respuesta transcripcional es el sulforafano, un isotiocianato derivado de la hidrólisis enzimática de la glucorafanina presente en las brasicáceas. Esta reacción de bioconversión requiere la intervención catalítica indispensable de la enzima mirosinasa, una tioglucosidasa intrínseca al tejido vegetal. En el vegetal intacto, la glucorafanina y la mirosinasa se encuentran alojadas en compartimentos celulares separados. Solo cuando se produce una rotura mecánica de los tejidos (masticación, triturado, corte) ambos elementos entran en contacto y tiene lugar la formación del principio bioactivo.
Aquí converge el arte culinario con la cinetocelular: la mirosinasa es una enzima extraordinariamente termolábil que se inactiva de forma irreversible a temperaturas superiores a los 60 °C. Si una crucífera se introduce directamente en un medio hirviendo o se hornea sin tratamiento previo, la enzima se desnaturaliza antes de haber podido transformar la glucorafanina en sulforafano, anulando gran parte de su potencial inductor del glutatión. Para sortear esta limitación físico-química, el protocolo culinario maestro prescribe la técnica del corte y reposo enzimático (chop and wait): trocear minuciosamente la brasicácea y dejarla reposar durante 35-40 minutos a temperatura ambiente (20-22 °C) permite que la mirosinasa endógena complete la catálisis en el plano celular antes de que el calor suave detenga el proceso.
Cofactores Enzimáticos y Minerales: Selenio, Riboflavina y Magnesio en la Dinámica Redox
La maquinaria de defensa dependiente del glutatión opera como una red sinérgica donde el tripéptido es solo el donante de electrones. La neutralización efectiva de hidroperóxidos celulares corre a cargo de la familia de enzimas glutatión peroxidasas (GPx1 a GPx8). En el centro catalítico de estas metaloenzimas no se halla un residuo de cisteína común, sino un aminoácido singular codificado genéticamente mediante un codón de parada redefinido: la selenocisteína. Sin una provisión adecuada de selenio biodisponible, la célula es incapaz de sintetizar GPx funcional, volviendo estéril la abundancia de glutatión sintetizado.
La forma química en la que el selenio se incorpora a las preparaciones culinarias condiciona de manera crítica su cinética de absorción:
- Selenometionina: Presente de forma natural en frutos secos silvestres (especialmente nueces del Brasil de recolección seleccionada), granos enteros y setas como el Boletus edulis.
- Selenocisteína y metilselenocisteína: Abundante en alliums enriquecidos de suelo volcánico y pescados marinos profundos.
Estos compuestos orgánicos de selenio toleran tratamientos térmicos controlados, pero son susceptibles de lixiviación masiva si se descartan las aguas de cocción, motivo por el cual la cocina celular exige técnicas de concentración o caldos integrales de extracción lenta.
Por su parte, el ciclo de regeneración celular del glutatión exige la presencia constante de dos micronutrientes catalíticos indispensables:
- Vitamina B2 (Riboflavina): Precursora del dinucleótido de flavina y adenina (FAD), el grupo prostético cofactor esencial de la glutatión reductasa para reconvertir GSSG en GSH activo.
- Magnesio (Mg²⁺): Quelato estabilizador de las moléculas de ATP requeridas por la GCL y la sintetasa para llevar a cabo la unión peptídica endergónica. Integrar semillas de calabaza microemulsionadas o extractos botánicos de hojas verde oscuro en la mise en place garantiza la suficiencia iónica de este motor biosintético.
Protocolos Culinarios de Precisión: Termometría, Cocción al Vacío y Medios No Oxidativos
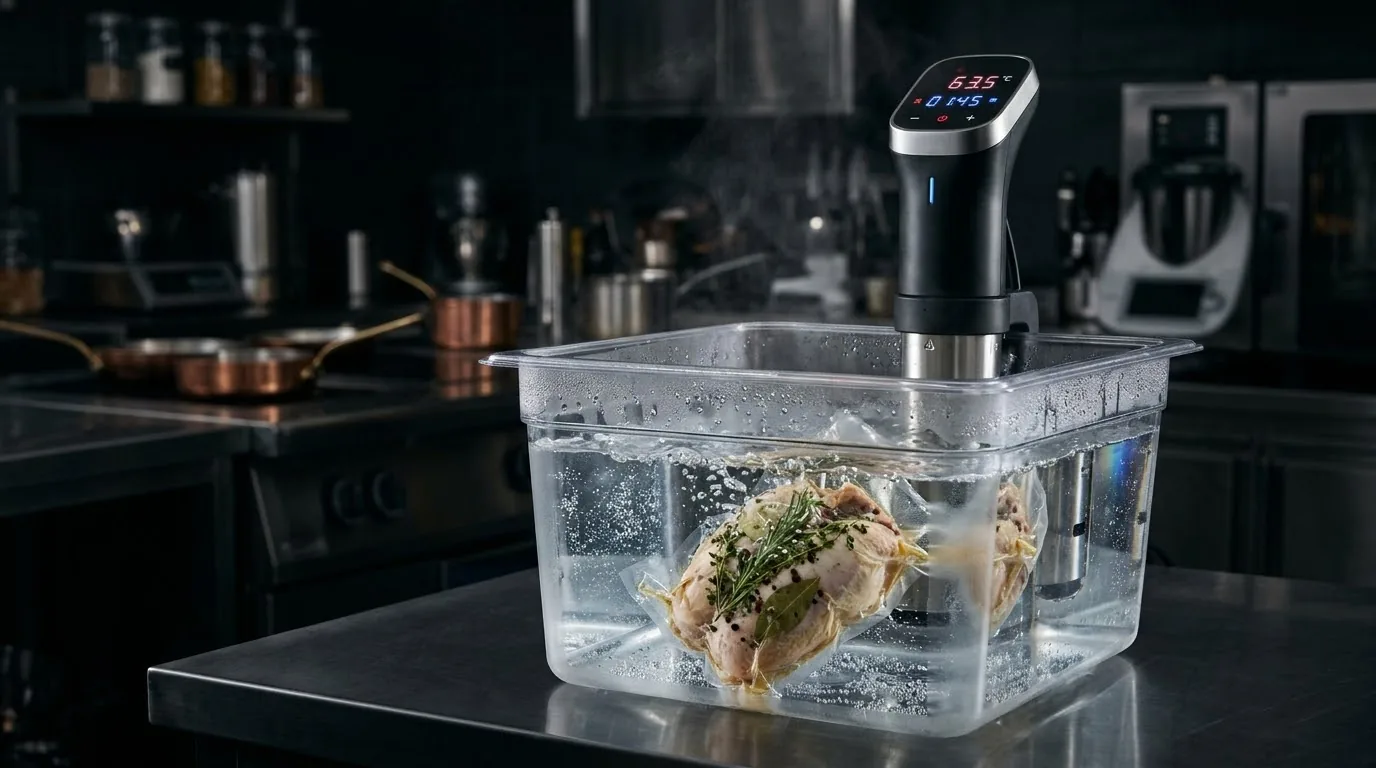
Para traducir los postulados bioquímicos en una práctica culinaria de élite, es imprescindible establecer un protocolo riguroso de termometría aplicada. Las fuentes de proteínas lácteas o avícolas ricas en cisteína nativa deben tratarse térmicamente evitando a toda costa el contacto con superficies secas a más de 120 °C. La utilización de hornos mixtos de vapor saturado a baja temperatura o cubetas termostáticas de inmersión (roner) programadas entre 56 °C y 61 °C asegura que la desnaturalización sea únicamente conformacional, manteniendo intactos los enlaces disulfuro de interés sin provocar agregaciones hidrofóbicas impenetrables para las proteasas gástricas.
El vector atmosférico representa el segundo factor crítico de alteración. El oxígeno ambiental actúa como un aceptor espontáneo de electrones que agota los grupos tiol de la cisteína antes de su consumo. La técnica de envasado al vacío de alta tasa de desaireación (99.8%) mitiga de raíz este fenómeno cinético. Al eliminar la columna de gas oxidante alrededor de la matriz alimentaria y sellarla herméticamente en polímeros libres de bisfenol, los residuos azufrados se preservan en su estado reducido más favorable durante todo el gradiente térmico de cocción.
Asimismo, la ingeniería culinaria de salsas y reducciones debe descartar las largas evaporaciones al aire libre cuando el objetivo es la preservación antioxidante. Una emulsión elaborada en atmósfera inerte o un licuado en frío bajo campana extractora de vacío previene la enzima polifenoloxidasa y detiene la degradación oxidativa de los péptidos sulfurados. La combinación inmediata con ácidos orgánicos suaves procedentes de cítricos o fermentos estabiliza un pH de entre 4.0 y 5.5, un rango que desacelera de manera drástica la constante cinética de autooxidación de los tioles libres.
Simbiosis Gastronómica: Menús Celulares y Sinergias Moleculares en el Plato
El diseño de un plato de alta gastronomía basado en la síntesis del glutatión constituye una partitura polifónica donde cada ingrediente aporta un engranaje complementario. Considérese, a modo de paradigma gastronómico, una preparación que armoniza una suprema de ave de corral criada en libertad cocinada a 58 °C (proveedora de dipéptidos de cisteína intactos), acompañada de un puré sedoso de raíces de colinabo y brócoli reposado tras microcorte mecánico (inducción de Nrf2 vía sulforafano) y rematada con un hilo de aceite virgen extra infusionado en frío con ajo laminado a 20 °C (aporte de S-alilcisteína y alilmercaptano).
A este sistema se incorpora un toque final de ralladura microscópica de nuez amazónica rica en selenometionina (cofactor para GPx) y microbrotes frescos de mostaza blanca sin someter al fuego. Esta arquitectura culinaria no actúa de forma compartimentada; cada componente potencia cinéticamente la absorción y la eficacia biológica de los demás. El sulforafano amplifica la producción de las enzimas sintéticas en el hepatocito, la matriz avícola aporta el aminoácido sustrato sin degradar térmicamente, y los minerales y polifenoles del aceite protegen al tripéptido recién ensamblado de un desgaste oxidativo prematuro.
Esta visión derriba definitivamente la dicotomía arcaica entre el placer de la degustación y el rigor de la nutrición científica. Lejos de las propuestas reduccionistas basadas en complementos aislados, la cocina celular ennoblece el acto de cocinar: la manipulación magistral del calor, la cronometría de los cortes, la exclusión del oxígeno innecesario y el equilibrio aromático se consolidan como las herramientas culinarias más sofisticadas de la medicina de la longevidad y el bienestar molecular humano.
Pautas Nutricionales & Recomendaciones Dietéticas
Protocolo de corte y reposo (Chop and Wait): Picar o triturar siempre las crucíferas (brócoli, kale, repollo) y dejarlas reposar 40 minutos en crudo antes de aplicar cualquier calor suave; esto garantiza la acción catalítica completa de la mirosinasa para liberar sulforafano.
Límite térmico estricto para fuentes de cisteína: Al cocinar alimentos concentrados en péptidos sulfurados (huevos de pastoreo, aves, pescado blanco), mantener la temperatura interna del alimento por debajo de los 65 °C mediante técnicas como el vacío suave o el vapor atemperado.
Sinergia organosulfurada en crudo: Añadir ajo negro laminado, cebollino o chalotas en los últimos 60 segundos de un salteado suave o sobre preparaciones tibias para evitar la pirólisis de la S-alilcisteína.
Preservación de cofactores de selenio: No desechar los jugos de cocción sous-vide ni caldos de verduras ricos en minerales; en ellos se solubilizan los oligoelementos que activan la enzima glutatión peroxidasa.
Preguntas y Respuestas Frecuentes (10 Claves)
Respuestas a las preguntas y aspectos técnicos más consultados sobre esta investigación gastronómica.
El tripéptido de glutatión ingerido oralmente es hidrolizado rápidamente en el estómago y el lumen del intestino delgado por enzimas como la gamma-glutamil transferasa y diversas dipeptidasas, degradándose en aminoácidos individuales. La estrategia celular óptima radica en aportar los precursores protegidos (cisteína biodisponible, glutamato y glicina) junto con inductores de Nrf2 para que las propias células lo sinteticen endógenamente.
La pérdida de conformación nativa comienza entre los 60 °C y 65 °C. Sin embargo, la degradación química irreversible del enlace tiol (-SH), mediante beta-eliminación y formación de deshidroalanina con pérdida de azufre volátil, se dispara a partir de los 95 °C en medios acuosos prolongados y por encima de los 130 °C en métodos de calor seco (horneado fuerte o fritura).
El selenio es un elemento estructural indispensable en el centro activo de la enzima glutatión peroxidasa (GPx) en forma de selenocisteína. Sin suficiente selenio orgánico, el glutatión acumulado en la célula no puede donar eficazmente sus electrones para desarmar los peróxidos tóxicos ni frenar la lipoperoxidación de las membranas mitocondriales.
El hervido clásico en abundante agua disuelve por lixiviación los péptidos hidrosolubles y acelera la termooxidación al estar expuesto al oxígeno disuelto. El vapor suave a presión atmosférica controlada (o cocción a 85-90 °C) minimiza la lixiviación de sustratos hasta en un 80% y reduce drásticamente la agregación térmica destructiva.
Son fitoquímicos electrófilos que inducen la expresión de genes de defensa celular y enzimas de síntesis de glutatión. El sulforafano de las crucíferas, los curcuminoideos de la cúrcuma protegidos por lípidos, el resveratrol de uvas oscuras y los dialil disulfuros de los alliums son los activadores alimentarios de Nrf2 más potentes descritos por la ciencia.
Sí, si se sobrecocina. La clara de huevo es sumamente rica en ovoalbúmina y cisteína. Un huevo cocido a más de 100 °C durante tiempo prolongado libera ácido sulfhídrico (olor característico y halo verdoso de sulfuro de hierro en la yema), evidenciando la degradación del aminoácido. La cocción a baja temperatura (ej. huevo a 63 °C) conserva los péptidos nativos intactos.
Es un truco culinario de alto rigor científico. La mostaza cruda contiene mirosinasa termoactiva intacta. Si una crucífera ha sido cocinada al vapor perdiendo su mirosinasa, espolvorear una pizca milimétrica de polvo de semillas de mostaza cruda aporta la enzima faltante, reactivando de inmediato la formación de sulforafano en el intestino.
Existe un ciclo de óxido-reducción acoplado: el glutatión reducido (GSH) se encarga de regenerar químicamente el ácido dehidroascórbico de vuelta a vitamina C activa. Al mismo tiempo, mantener un entorno rico en vitamina C en las preparaciones culinarias protege a los tioles de la cisteína de la oxidación previa antes de la ingesta.
La fermentación láctica (como en el chucrut tradicional o kimchis no pasteurizados) predigiere las proteínas complejas mediante proteasas microbianas, liberando péptidos azufrados biodisponibles y degradando fitatos que impedirían la absorción intestinal de minerales cofactores como el zinc y el magnesio.
Absolutamente. Aunque las proteínas animales aportan mayor concentración de cisteína en peso seco, una alimentación basada en plantas que combine semillas de calabaza y cáñamo, alliums abundantes, crucíferas tratadas con el protocolo 'chop and wait' y nueces de Brasil para el selenio asegura una saturación idéntica del pool de GSH celular.