Lisozima muramidasa

(1,4-β-N-acetilmuramidasa lítica, EC 3.2.1.17)

Transcripción IPA: [li.soˈsi.ma mu.ɾa.miˈða.sa]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

La lisozima muramidasa es una enzima hidrolasa globular monomérica de 14.3 kDa constituida por 129 aminoácidos estabilizados por cuatro enlaces disulfuro intramoleculares intramoleculares, con un punto isoeléctrico marcadamente básico (pI = 10.7). Representa aproximadamente el 3.5% del total proteico de la clara de huevo y ejerce una acción biocatalítica lítica hidrolizando selectivamente los enlaces glucosídicos β-(1→4) entre el ácido N-acetilmurámico (NAM) y la N-acetilglucosamina (NAG) del peptidoglicano de las paredes bacterianas de microorganismos Gram-positivos.

En gastronomía analítica y bioenología molecular, la lisozima funciona como un bio-conservante de altísima especificidad y agente de acoplamiento macromolecular. Permite el control riguroso de la fermentación maloláctica inhibiendo cepas de Oenococcus oeni y Lactobacillus indeseadas sin alterar las levaduras (Saccharomyces cerevisiae), a la par que en emulsiones y geles actúa como una macromolécula catiónica que interactúa electrostáticamente con polisacáridos o proteínas aniónicas para modular la tensión superficial y el comportamiento de flujo reológico.

II. Etimología e Historia Gastronómica

La enzima fue descubierta formalmente en 1921 y descrita en 1922 por Sir Alexander Fleming en Londres, quien observó cómo una gota de su propia mucosidad nasal disolvía colonias bacterianas sobre una placa de agar; posteriormente comprobó que la clara de huevo de gallina era una de las fuentes biológicas más concentradas de este agente de lisis, bautizándola como 'lysozyme'.

En 1965, David Chilton Phillips resolvió la estructura tridimensional de la lisozima mediante cristalografía de rayos X con una resolución de 2.0 Å, convirtiéndola en la primera enzima de la historia cuya arquitectura molecular y mecanismo catalítico espacial fueron determinados a nivel atómico. En la cocina molecular contemporánea y la charcutería de alta precisión, la purificación de lisozima marcó el inicio del bioprocesamiento limpio (clean label), sustituyendo sulfitos o nitritos para evitar contaminaciones microbianas por bacterias productoras de ácido láctico en emulsiones cárnicas sous-vide de larga duración.


III. Ciencia Culinaria y Bioquímica

El sitio activo de la lisozima reside en una hendidura catalítica profunda donde se sitúan dos residuos de aminoácidos primordiales: el ácido glutámico en posición 35 (Glu35) y el ácido aspártico en posición 52 (Asp52). Debido a su entorno hidrofóbico local no polar, Glu35 posee un pKa anómalamente elevado de 6.2 y actúa en forma protonada neutra como un catalizador ácido general, mientras que Asp52 se encuentra en un microentorno polar, poseyendo un pKa de 3.5 y actuando en su forma de carboxilato aniónico desprotonado como estabilizador electrostático del intermedio ion carbonio.

La catálisis prosigue mediante un mecanismo de desplazamiento doble que involucra distorsión conformacional del anillo de azúcar hacia una geometría de media silla, con una energía libre de activación (ΔG‡) de aproximadamente 75 kJ/mol a 37 °C y una velocidad máxima de reacción a pH óptimo entre 5.2 y 6.2. Desde el punto de vista térmico, la lisozima es notablemente termoestable a pH ácido debido a la densidad de sus cuatro puentes disulfuro cruzados (Cys6-Cys127, Cys30-Cys115, Cys64-Cys80, Cys76-Cys94), conservando más del 90% de su actividad catalítica tras ser sometida a 75 °C durante 15 minutos a pH 5.0, pero desnaturalizándose irreversiblemente por encima de pH 8.0 a temperaturas superiores a 72 °C.

IV. Protocolo de Ejecución y Precisión Técnica

Para implementar la lisozima en el control biotecnológico de fermentaciones lácticas en jugos vegetales clarificados o bases de charcutería emulsionada, dosificar la enzima purificada liofilizada a una concentración estándar de exactamente 150 a 250 mg/kg (ppm) de matriz procesada. Disolver previamente el polvo hidrosoluble en una fracción alícuota del fluido a 20 °C, evitando la agitación por cizalla intensa con homogeneizadores de aspas que desnaturalizan su estructura globular.

Verificar con un pH-metro digital que el sustrato se sitúe en el rango operativo bioactivo (pH entre 4.8 y 6.5). En procesos de pasteurización de alimentos sous-vide estabilizados enzimáticamente con lisozima, mantener el tratamiento térmico por debajo de 68.0 °C durante tiempos prolongados (o pasteurizaciones a 62 °C por 90 minutos en baño termostático) para preservar intacta la actividad lítica de la muramidasa residual contra endosporas de Clostridium tyrobutyricum, monitorizando la turbidimetría bacteriana a 600 nm (OD₆₀₀) en espectrofotómetro analítico.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Incorporación de lisozima muramidasa en formulaciones que contienen sales de polifenoles condensados concentrados o taninos amargos, los cuales forman complejos insolubles lisozima-tanino que precipitan instantáneamente, anulando la actividad lítica y generando turbidez no deseada.

Error #2

Ajuste del medio de reacción por encima de pH 8.5 en presencia de temperatura superior a 70 °C, lo que cataliza la hidrólisis alcalina de los puentes disulfuro e induce la inactivación enzimática definitiva de la proteína por desnaturalización.

Error #3

Uso de la enzima en matrices tratadas previamente con surfactantes aniónicos (como lauril sulfato de sodio o ciertos emulsificantes polares sintéticos), los cuales se enlazan estequiométricamente a su superficie fuertemente catiónica (pI = 10.7), neutralizando su centro activo y bloqueando la interacción con el peptidoglicano bacteriano.

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Membrana del glóbulo graso lácteo

Membrana del glóbulo graso lácteo

/memˈbɾa.na del ˈɡlo.βu.lo/

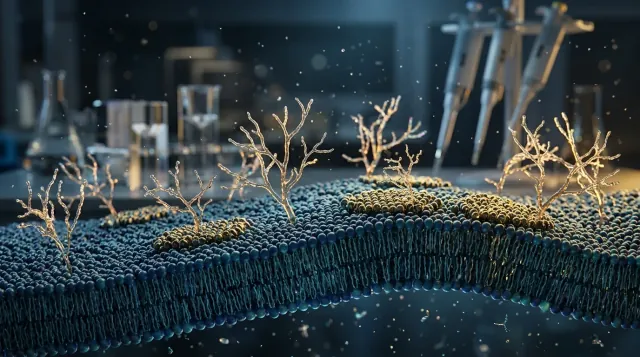
La membrana del glóbulo graso lácteo (MFGM) es una compleja ultraestructura trilaminar anfipática y bioactiva de un espesor de 10 a 50 nm que envuelve individualmente el núcleo de triglicéridos de la leche. Está compuesta predominantemente por una monocapa interna de proteínas y lípidos polares derivada del retículo endoplásmico, y una bicapa externa originada en la membrana plasmática apical secretora de las células del epitelio mamario; sus componentes mayoritarios comprenden glicoproteínas específicas (como mucina-1, butirofilina, xantina oxidasa y lactadherina) y lípidos polares biofuncionales (esfingomielina, fosfatidilcolina y fosfatidiletanolamina). En gastronomía científica y alta pastelería, la MFGM actúa como el emulsionante natural más potente y termolábil de los derivados lácteos. Su integridad estructural rige la estabilidad coloidal contra la auto-oxidación lipídica, determina la resistencia de las espumas al colapso por drenaje capilar y aporta notas aromáticas complejas mediante la fijación y liberación coordinada de compuestos orgánicos volátiles liposolubles e hidrosolubles.

Microfibrillas de celulosa

Microfibrillas de celulosa

/mikɾofiˈβɾiʎas ðe seyluˈlosa/

Estructuras supramoleculares fibrilares compuestas por el ensamblaje paralelo de entre 18 y 36 cadenas individuales de celulosa sintetizadas simultáneamente por complejos multiproteicos en roseta de celulosa sintasa (CESA) en la membrana plasmática vegetal. Poseen un diámetro transversal característico de 2.5 a 5 nm y longitudes que superan varios micrómetros, integrando dominios de altísima cristalinidad (alomorfos celulosa Iα y Iβ) alternados periódicamente con regiones desordenadas o amorfas. En la gastronomía estructural, las microfibrillas actúan como el 'hormigón armado' biológico del tejido vegetal, confiriendo anisotropía elástica y resistencia tensional hidrostática ante la presión de turgencia intracelular. Su dispersión nanométrica mecánica genera geles de celulosa nanofibrilada (NFC) capaces de estabilizar emulsiones Pickering libres de surfactantes sintéticos y aportar texturas untuosas y pseudo-plásticas con un aporte calórico nulo.

Óxido de trimetilamina

Óxido de trimetilamina

[ˈoksiðo ðe tɾimetiˈlamina]

El óxido de trimetilamina (TMAO) es un osmolito zwitteriónico cuaternario y soluto compatibilizador piezo-protector sintetizado primariamente en el tejido muscular de teleósteos y elasmobranquios marinos de aguas frías y profundas. Su función biológica radica en contrarrestar el estrés osmótico salino y neutralizar los efectos desnaturalizantes de la elevada presión hidrostática (baroprotección de la conformación de la actomiosina) y de la urea celular. En el músculo intacto y fresco, el TMAO se presenta como un soluto incoloro, inodoro e insípido que estabiliza el plegamiento nativo macromolecular mediante el incremento del efecto hidrofóbico en la superficie proteica. En la ciencia gastronómica de vanguardia, el contenido basal de TMAO (que oscila entre 20 y 150 mmol/kg en peces óseos bentónicos y hasta 400 mmol/kg en elasmobranquios) es el precursor crítico de los metabolitos volátiles de degradación post-mortem. Su retención y estabilidad química determinan el umbral organoléptico prístino del pescado crudo en preparaciones como sashimi, ikejime o maduraciones dry-aging hiperbáricas, donde la degradación de esta molécula hacia aminas volátiles marca la frontera entre un perfil mineral-umami elegante y la aparición de defectos aminados de descomposición.

Pectato cálcico

Pectato cálcico

[pekˈta.to ˈkal.si.ko]

El pectato cálcico es una sal polimérica insoluble e hidrogel termoirreversible formado por la reticulación electrostática de cadenas desmetoxiladas de ácido poligalacturónico mediante puentes de coordinación con iones divalentes de calcio (Ca2+). Es el componente bioquímico responsable de la rigidez estructural de la lámina media en los tejidos parenquimatosos vegetales y el agente rector en las técnicas de esferificación directa, esferificación inversa y texturización crujiente en frutas termoprocesadas. En la alta cocina, la inducción controlada de pectato cálcico permite preservar o restaurar la firmeza turgente de vegetales sometidos a cocciones prolongadas al vacío (sous-vide), evitando el colapso celular y la flacidez tisular. Asimismo, determina la viscoelasticidad elástica (módulo de almacenamiento G' significativamente superior al módulo de pérdida G'') de membranas esferificadas estables a temperaturas de servicio de hasta 80 °C.

Peroxidación lipídica

Peroxidación lipídica

[peɾoksiðaˈθjon liˈpiðika]

La peroxidación lipídica es el proceso oxidativo en cadena, mediado fundamentalmente por especies reactivas de oxígeno (ROS) o intermediarios radicalarios, a través del cual los ácidos grasos poliinsaturados (PUFAs) que contienen sistemas dieno conjugados o grupos metileno bis-alílicos (-CH=CH-CH2-CH=CH-) sufren una sustracción homolítica de hidrógeno, dando lugar a hidroperóxidos lipídicos primarios (ROOH) altamente inestables. En matrices biológicas complejas y emulsiones culinarias, esta cascada puede ser desencadenada tanto por mecanismos enzimáticos (vía lipoxigenasas activas) como no enzimáticos (iniciada por radicales hidroxilo •OH, superóxido O2•- o fotoactivación por singlete de oxígeno 1O2 mediada por clorofilas y riboflavinas). En la ciencia gastronómica, este fenómeno es el responsable último de la senescencia química irreversible de grasas nobles (aceites de oliva virgen extra monovarietales, mantecas maduradas, grasa intramuscular de buey Wagyu o pescados azules como caballa y sardina). La descomposición secundaria de los hidroperóxidos genera una constelación de aldehídos de bajo umbral de detección olfativa (como (E,Z)-2,4-decadienal, malondialdehído, hexanal y 4-hidroxi-2-nonenal), los cuales destruyen las notas frescas o herbáceas, imprimiendo defectos sensoriales de rancio, barniz, pintura o grasa metálica oxidada (WOF, 'warmed-over flavor'), además de comprometer la salubridad nutricional al reaccionar los compuestos electrofílicos con aminas primarias de proteínas.

Polifenoles condensados

Polifenoles condensados

/polifeˈnoles kondenˈsados/

Los polifenoles condensados, universalmente conocidos como taninos condensados, son polímeros bioflavonoides biológicamente inertes respecto a la hidrólisis ácida simple, constituidos por el acoplamiento covalente de subunidades de flavan-3-ol (como (+)-catequina, (-)-epicatequina, galocatequina y sus derivados 3-O-galato). A diferencia de los taninos hidrolizables (galotaninos y elagitaninos), los condensados carecen de un núcleo central de carbohidrato (como D-glucosa) unido por enlaces éster, presentando en su lugar enlaces interflavanoides carbono-carbono extremadamente resistentes. En gastronomía molecular y ciencia de los alimentos, los polifenoles condensados dictan la longevidad sensorial, el perfil de color pardo-rojizo y el cuerpo de alimentos fermentados y añejados como el cacao criollo, las semillas de uva, el café y la corteza de canela. Son potentes agentes antioxidantes endógenos que modulan la oxidación lipídica mediante la desactivación de especies reactivas de oxígeno (ROS) y la quelación de iones metálicos redox-activos (Fe²⁺, Cu²⁺), jugando un papel crítico en el desarrollo de notas amargas refinadas versus amargos punzantes.