Monofosfato de guanosina

(GMP / Ácido guanílico / 5'-ribonucleótido de guanosina, C10H14N5O8P)

Transcripción IPA: [mo.no.fosˈfa.to de ɡwa.noˈsi.na]

Locución Fonética · Multilingüe

Pronunciación académica y lectura íntegra de ficha

I. Definición Esencial

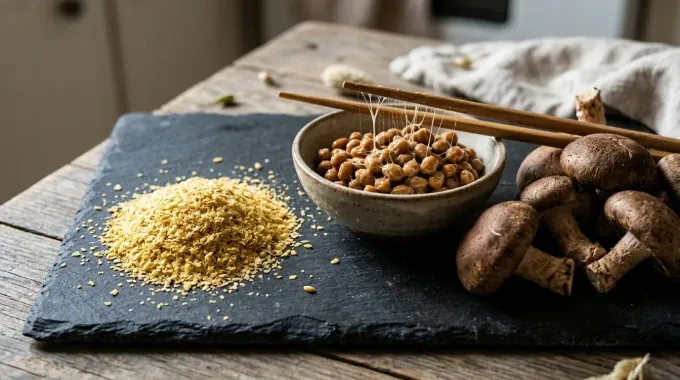
El 5'-monofosfato de guanosina (GMP, masa molar 363.22 g/mol) es un ribonucleótido purínico que consta de la base nitrogenada guanina, una ribofuranosa y un grupo éster de fosfato en la posición 5'. Se encuentra en concentraciones biológicas prominentes en hongos superiores (especialmente en carpóforos de Lentinus edodes o shiitake, Boletus edulis y Morchella) y es el amplificador alostérico del gusto umami más potente conocido en la química de los alimentos de origen fúngico y vegetal.

En la gastronomía contemporánea de precisión, el GMP se distingue del IMP por exhibir una curva de persistencia sensorial (long-tail linger) sustancialmente más prolongada y una afinidad molecular cualitativamente superior por el dominio extracelular del heterodímero T1R1+T1R3. Su efecto sinérgico con el L-glutamato no solo multiplica la percepción de carnosidad, sino que actúa como modulador reológico sensorial, enmascarando el amargor inherente a polifenoles vegetales y glucosinolatos, y reduciendo hasta en un 50% la necesidad de cloruro de sodio (NaCl) en preparaciones culinarias complejas.

II. Etimología e Historia Gastronómica

El principio activo del 5'-GMP como agente sápido independiente fue descubierto en 1960 por el Dr. Akira Kuninaka en los laboratorios de Yamasa Shoyu Co. en Japón. Kuninaka no solo aisló el nucleótido del hongo shiitake, sino que enunció formalmente el descubrimiento del efecto sinérgico umami: la correlación matemática que rige la interacción cooperativa entre los 5'-ribonucleótidos purínicos (como el GMP y el IMP) y los L-alfa-aminoácidos dicarboxílicos (como el glutamato).

Este descubrimiento desveló el secreto milenario de preparaciones como el 'Dashi' combinado (Kombu con Shiitake) o las reducciones clásicas francesas con duxelles y extractos de setas secas. En el movimiento de la 'Cuisine Moléculaire' y la vanguardia nórdica, el GMP fue adoptado mediante deshidratación lenta, liofilización y digestión enzimática asistida por nucleasas comerciales (como la 5'-fosfodiesterasa), sentando las bases de los glaseados y 'fondos vegetarianos' de intensidad idéntica o superior a caldos cárnicos tradicionales.

III. Ciencia Culinaria y Bioquímica

A nivel biofísico, el residuo 2-amino exocíclico de la base de guanina en el 5'-GMP confiere un donador de puente de hidrógeno suplementario en comparación con la base hipoxantina del 5'-IMP. Esta arquitectura molecular permite una estabilización entálpica superior (ΔH de interacción más negativo) en la cavidad alostérica del dominio VFT del receptor T1R1. La unión simultánea de glutamato y 5'-GMP bloquea la conformación 'cerrada' del receptor dimerizado con una energía libre de Gibbs (ΔG) más favorable, evitando la transición a la forma abierta inactiva y amplificando la liberación intracelular de trifosfato de inositol (IP3) y diacilglicerol (DAG) que culmina en la apertura del canal TRPM5.

La síntesis y liberación óptima de 5'-GMP en tejidos micológicos durante la cocción depende de la enzima ARN-nucleasa endógena que degrada el ARN ribosómico fúngico en 5'-mononucleótidos en la ventana térmica de 60 °C a 70 °C. Sin embargo, a temperaturas superiores a 75 °C o por catálisis por fosfomonoesterasas ácidas (óptimo 45 °C a 55 °C), el 5'-GMP se escinde a guanosina libre inactiva. En disolución acuosa diluida a 25 °C, sus constantes de disociación de fosfato se sitúan en pKa1 ≈ 1.6 y pKa2 ≈ 6.4, manteniendo dos cargas netas negativas a pH culinario óptimo (pH 6.5–7.0).

IV. Protocolo de Ejecución y Precisión Técnica

Para extraer y maximizar enzimáticamente el 5'-GMP natural a partir de carpóforos secos de shiitake o boletus, suspender el material micológico micronizado (tamiz analítico <200 μm) en agua osmotizada con un refractómetro fijado a 0.0 °Brix. Calentar en un baño termostático de precisión con recirculación continua ajustado exactamente a 65.0 ± 0.1 °C durante un período de 40 minutos; este protocolo activa las ribonucleasas endógenas desactivando simultáneamente las fosfatasas que desfosforilan los nucleótidos a guanosina.

Monitorear el pH de extracción continuamente con un electrodo de vidrio plano, manteniendo el medio a pH 6.2 ± 0.1 mediante adición micrométrica de bicarbonato de sodio en solución 0.1 M. Si se utiliza sal sódica analítica de 5'-guanilato disódico (E627), dosificar con micropipeta o balanza analítica de precisión (sensibilidad ±0.1 mg) en una proporción de 0.05 a 0.20 g/kg (50-200 ppm) en la fase final de clarificación a temperaturas <75 °C. Centrifugar en centrífuga de mesa a 4,500 rpm durante 15 minutos a 4 °C para eliminar impurezas coloidales y preservar la reflectancia óptica de la solución.

Errores Críticos a Evitar en Cocina y Cata

Error #1

Infusión de hongos a temperaturas inferiores a 55 °C, lo que favorece la actividad de fosfatasas ácidas endógenas que escinden el enlace fosfoéster, degradando irreversiblemente el 5'-GMP en guanosina carente de sinergia gustativa.

Error #2

Hervido descontrolado por encima de 100 °C con turbulencia osmótica, provocando una hidrólisis térmica del enlace glucosídico beta que separa la guanina de la ribosa, produciendo turbidez y una severa caída en la potencia umami.

Error #3

Empleo de soluciones altamente ácidas (pH < 4.2) comunes al agregar vino, vinagre o cítricos precozmente, lo que protona las cargas negativas del grupo fosfato impidiendo su anclaje electrostático en el bolsillo alostérico del receptor gustativo T1R1.

Malla Viva Editorial MomenFress

Dónde cobra vida «Monofosfato de guanosina» en nuestra web

Recetas, bodegas, quesos y queserías D.O.P., tratados científicos y grandes chefs donde este concepto se aplica en la práctica.

1 publicación relacionada

Instrumental y Utensilios Asociados

Términos Hermanos en Ciencia y Química del Alimento

Explorar categoría
Óxido de trimetilamina

Óxido de trimetilamina

[ˈoksiðo ðe tɾimetiˈlamina]

El óxido de trimetilamina (TMAO) es un osmolito zwitteriónico cuaternario y soluto compatibilizador piezo-protector sintetizado primariamente en el tejido muscular de teleósteos y elasmobranquios marinos de aguas frías y profundas. Su función biológica radica en contrarrestar el estrés osmótico salino y neutralizar los efectos desnaturalizantes de la elevada presión hidrostática (baroprotección de la conformación de la actomiosina) y de la urea celular. En el músculo intacto y fresco, el TMAO se presenta como un soluto incoloro, inodoro e insípido que estabiliza el plegamiento nativo macromolecular mediante el incremento del efecto hidrofóbico en la superficie proteica. En la ciencia gastronómica de vanguardia, el contenido basal de TMAO (que oscila entre 20 y 150 mmol/kg en peces óseos bentónicos y hasta 400 mmol/kg en elasmobranquios) es el precursor crítico de los metabolitos volátiles de degradación post-mortem. Su retención y estabilidad química determinan el umbral organoléptico prístino del pescado crudo en preparaciones como sashimi, ikejime o maduraciones dry-aging hiperbáricas, donde la degradación de esta molécula hacia aminas volátiles marca la frontera entre un perfil mineral-umami elegante y la aparición de defectos aminados de descomposición.

Pectato cálcico

Pectato cálcico

[pekˈta.to ˈkal.si.ko]

El pectato cálcico es una sal polimérica insoluble e hidrogel termoirreversible formado por la reticulación electrostática de cadenas desmetoxiladas de ácido poligalacturónico mediante puentes de coordinación con iones divalentes de calcio (Ca2+). Es el componente bioquímico responsable de la rigidez estructural de la lámina media en los tejidos parenquimatosos vegetales y el agente rector en las técnicas de esferificación directa, esferificación inversa y texturización crujiente en frutas termoprocesadas. En la alta cocina, la inducción controlada de pectato cálcico permite preservar o restaurar la firmeza turgente de vegetales sometidos a cocciones prolongadas al vacío (sous-vide), evitando el colapso celular y la flacidez tisular. Asimismo, determina la viscoelasticidad elástica (módulo de almacenamiento G' significativamente superior al módulo de pérdida G'') de membranas esferificadas estables a temperaturas de servicio de hasta 80 °C.

Peroxidación lipídica

Peroxidación lipídica

[peɾoksiðaˈθjon liˈpiðika]

La peroxidación lipídica es el proceso oxidativo en cadena, mediado fundamentalmente por especies reactivas de oxígeno (ROS) o intermediarios radicalarios, a través del cual los ácidos grasos poliinsaturados (PUFAs) que contienen sistemas dieno conjugados o grupos metileno bis-alílicos (-CH=CH-CH2-CH=CH-) sufren una sustracción homolítica de hidrógeno, dando lugar a hidroperóxidos lipídicos primarios (ROOH) altamente inestables. En matrices biológicas complejas y emulsiones culinarias, esta cascada puede ser desencadenada tanto por mecanismos enzimáticos (vía lipoxigenasas activas) como no enzimáticos (iniciada por radicales hidroxilo •OH, superóxido O2•- o fotoactivación por singlete de oxígeno 1O2 mediada por clorofilas y riboflavinas). En la ciencia gastronómica, este fenómeno es el responsable último de la senescencia química irreversible de grasas nobles (aceites de oliva virgen extra monovarietales, mantecas maduradas, grasa intramuscular de buey Wagyu o pescados azules como caballa y sardina). La descomposición secundaria de los hidroperóxidos genera una constelación de aldehídos de bajo umbral de detección olfativa (como (E,Z)-2,4-decadienal, malondialdehído, hexanal y 4-hidroxi-2-nonenal), los cuales destruyen las notas frescas o herbáceas, imprimiendo defectos sensoriales de rancio, barniz, pintura o grasa metálica oxidada (WOF, 'warmed-over flavor'), además de comprometer la salubridad nutricional al reaccionar los compuestos electrofílicos con aminas primarias de proteínas.

Polifenoles condensados

Polifenoles condensados

/polifeˈnoles kondenˈsados/

Los polifenoles condensados, universalmente conocidos como taninos condensados, son polímeros bioflavonoides biológicamente inertes respecto a la hidrólisis ácida simple, constituidos por el acoplamiento covalente de subunidades de flavan-3-ol (como (+)-catequina, (-)-epicatequina, galocatequina y sus derivados 3-O-galato). A diferencia de los taninos hidrolizables (galotaninos y elagitaninos), los condensados carecen de un núcleo central de carbohidrato (como D-glucosa) unido por enlaces éster, presentando en su lugar enlaces interflavanoides carbono-carbono extremadamente resistentes. En gastronomía molecular y ciencia de los alimentos, los polifenoles condensados dictan la longevidad sensorial, el perfil de color pardo-rojizo y el cuerpo de alimentos fermentados y añejados como el cacao criollo, las semillas de uva, el café y la corteza de canela. Son potentes agentes antioxidantes endógenos que modulan la oxidación lipídica mediante la desactivación de especies reactivas de oxígeno (ROS) y la quelación de iones metálicos redox-activos (Fe²⁺, Cu²⁺), jugando un papel crítico en el desarrollo de notas amargas refinadas versus amargos punzantes.

Proteínas miofibrilares

Proteínas miofibrilares

[pɾoteˈinas mjofiβɾiˈlaɾes]

Las proteínas miofibrilares representan aproximadamente el 55% al 65% de la masa proteica muscular y conforman la arquitectura contráctil y sarcomérica fundamental. Este grupo está dominado por la miosina (molécula asimétrica hexamérica de 520 kDa) y la actina (actina globular G de 42 kDa polimerizada en filamentos de actina F), junto con proteínas reguladoras menores como la tropomiosina, las troponinas (T, I, C) y la titina (3800 kDa). En gastronomía física y culinaria molecular, estas proteínas son las responsables primarias de la formación del gel térmico cárnico tridimensional (sol-gel), la elasticidad (firmeza de mordida) y la retención neta de agua (CRA) en farsas finas, patés, embutidos emulsionados y elaboraciones sous-vide. La solubilización selectiva de la actomiosina mediante fuerza iónica moderada o alta (NaCl entre 1.5% y 3.0% p/p) es el principio fisicoquímico esencial que permite unir fragmentos de músculo sin colágeno ni hidrocoloides exógenos.

Proteínas sarcoplásmicas

Proteínas sarcoplásmicas

[pɾoteˈinas saɾkoˈplazmikas]

Las proteínas sarcoplásmicas constituyen entre el 30% y el 35% del contenido proteico total del miocito esquelético, englobando a más de un centenar de especies macromoleculares solubles en disoluciones acuosas de baja fuerza iónica (I < 0.1 M). Entre sus componentes mayoritarios destacan la mioglobina monomérica (16.7 kDa), responsable cromófora del tejido muscular, enzimas de la glucólisis anaeróbica como la fosfofructocinasa y la lactato deshidrogenasa, así como creatina cinasa y citocromos hemínicos. En la gastronomía de vanguardia y la ciencia de la carne, esta fracción soluble dicta la exudación inicial, la formación de espuma o escoria en caldos térmicos de clarificación y el desarrollo del color post-cocción. Su temprana desnaturalización térmica entre los 40 °C y los 65 °C determina la formación de geles endebles hidrofílicos, afectando directamente la retención hídrica capilar y liberando iones metálicos catalizadores de reacciones de degradación oxidativa de lípidos intramusculares.