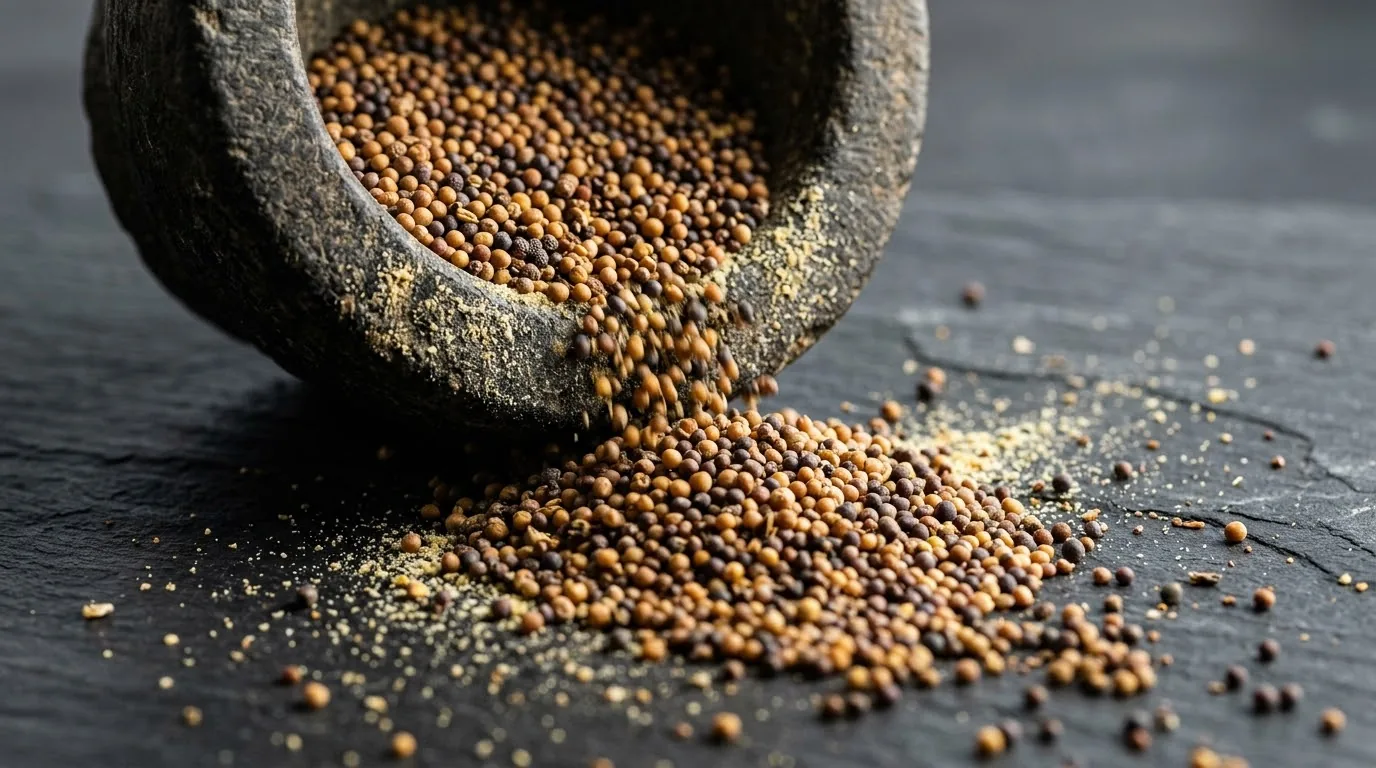
En el universo botánico de la familia de las brasicáceas (Brassicaceae), las diminutas semillas de mostaza han sido veneradas durante milenios por su inconfundible perfil pungente y su capacidad de catalizar la digestión. No obstante, más allá de los conocidos isotiocianatos que despiertan el paladar nasal, la investigación bioquímica contemporánea ha puesto bajo el foco microscópico a un grupo de fitoquímicos mucho más discreto pero formidable: los derivados hidroxicinámicos, liderados por el ácido sinápico y su conjugado cuaternario endógeno, la sinapina. Estas moléculas fenólicas constituyen una armadura química excepcional diseñada para salvaguardar el embrión vegetal frente al estrés oxidativo radiante y la agresión de microorganismos patógenos.
Cuando nos adentramos en el metabolismo celular humano, el ácido sinápico emerge no solo como un mero captador estequiométrico de radicales libres, sino como una sofisticada señal xenohormética con tropismo electivo por el parénquima hepático. En las complejas vías de la depuración hepatocitaria, este derivado del ácido cinámico modula interruptores genómicos maestros, orquestando una respuesta antiinflamatoria, antifibrótica y detoxificante de fase II. A través de la ingestión calculada y culinariamente respetuosa de estas semillas, las sinergias moleculares entre los ésteres fenólicos y la matriz lipídica natural desencadenan rutas metabólicas capaces de amortiguar el impacto del hígado graso no alcohólico y la peroxidación de lípidos sistémica.
La cocina de alta precisión nutricional descubre en la mostaza una frontera gastronómica que reconcilia la ciencia de los fitonutrientes con la emoción gustativa. Lejos de concebirse como un mero aderezo industrial cargado de sodio y aditivos inertes, las semillas de mostaza negra (Brassica nigra), mostaza parda (Brassica juncea) y mostaza blanca (Sinapis alba) merecen ser integradas como auténticos concentrados de bioactividad fenólica. Al dominar los factores térmicos, el grado de hidratación ácida y la conservación enzimática de estas semillas, el gastrónomo trasciende el sabor para convertir el acto culinario en un ritual de medicina metabólica celular del más alto refinamiento.
Ficha de Valor Nutricional & Evidencia Científica
Integración fitoquímica crucífera en patrones mediterráneos y funcionales avanzados
Ácido 4-hidroxi-3,5-dimetoxicinámico (ácido sinápico), sinapina (éster de colina), glucosinolatos (sinigrina y sinalbina), mirrosinasa
Inducción transcripcional de Nrf2/ARE, supresión de la lipogénesis hepática de novo mediante AMPK/SREBP-1c y atenuación de NF-κB
Modelos preclínicos mecanísticos en esteatosis metabólica (MAFLD), cinética de hidrólisis colónica y ensayos bioquímicos de clearance de radicales libres
Identidad Molecular del Ácido Sinápico y los Ésteres de Sinapina
El ácido sinápico (ácido 4-hidroxi-3,5-dimetoxicinámico) se clasifica dentro de la distinguida estirpe de los ácidos fenilpropanoides, emparentado estructuralmente con los ácidos ferúlico y cafeico, pero provisto de una configuración estereoespecífica singular. La presencia de dos grupos metoxilo (-OCH3) en las posiciones 3 y 5 del anillo aromático, flanqueando un grupo hidroxilo (-OH) fenólico libre en la posición 4, le confiere una densidad electrónica particularmente estable. Esta arquitectura molecular permite una deslocalización de resonancia formidable de los electrones impares, convirtiéndolo en un neutralizador de especies reactivas de oxígeno (ROS) de extraordinaria eficacia termodinámica frente a peroxilos e hidroxilos libres.
En el seno del grano maduro de mostaza, la gran mayoría de este ácido carboxílico no habita en forma libre, sino condensado covalentemente como un éster catiónico: la sinapina (éster de colina del ácido sinápico). La sinapina actúa como la forma principal de almacenamiento fenólico en las semillas oleaginosas de las crucíferas, llegando a constituir entre el 1% y el 4% del peso seco de la semilla según la variedad botánica. Esta unión con la molécula de colina neutraliza transitoriamente la acidez del compuesto, optimiza su estabilidad dentro de las vacuolas de los cotiledones y sirve como una reserva fisiológica dual que provee tanto protección antioxidante como donantes de grupos metilo para el desarrollo embrionario de la plántula.
Desde la perspectiva química analítica, la ruptura y asimilación de estos ésteres requiere la consideración de factores hidrolíticos de gran finura. La hidrólisis del enlace éster puede verse facilitada por enzimas endógenas del grano durante el proceso de germinación o imbibición, así como por esterasas bacterianas una vez que la matriz transita el tracto gastrointestinal. Esta dualidad entre la forma éster (hidrosoluble y zwiteriónica) y el ácido libre (lipofílico y más permeable a través de bicapas lipídicas) dicta una farmacocinética nutricional fascinante, donde la tasa de desesterificación modula la biodisponibilidad y la distribución tisular hacia órganos diana de alta demanda metabólica como el hígado.
Vías de Absorción, Cinética Intestinal y Biotransformación
El tránsito gastrointestinal de los derivados sinápicos pone a prueba la resiliencia de la matriz alimentaria. Al ser ingerida una preparación basada en semillas de mostaza molidas, la sinapina intacta atraviesa la barrera ácida del estómago sin sufrir una hidrólisis sustancial, resistiendo la pepsina y las condiciones de pH bajo. Al ingresar en el lumen duodenal y yeyunal, una fracción menor del ácido sinápico libre puede ser absorbida por difusión pasiva facilitada por transportadores de ácidos monocarboxílicos (MCT). Sin embargo, el catión cuaternario voluminoso de la sinapina intacta limita su paso transcelular directo a través de los enterocitos del intestino delgado, conduciendo a la molécula intacta hacia el íleon terminal y el ciego.
Es precisamente en el colon donde la microbiota simbiótica despliega su potencial enzimático mediante carboxilesterasas y sinapoil-esterasas microbianas especializadas. Filos comensales degradan el enlace éster, escindiendo la sinapina en colina libre y ácido sinápico no conjugado. La colina puede integrarse en las rutas de fosfolípidos de membrana o biosíntesis de acetilcolina, mientras que el ácido sinápico liberado es sometido a reacciones subsiguientes de reducción de la cadena lateral alifática y desmetilación fenólica por parte del consorcio bacteriano, generando metabolitos secundarios como el ácido dihidrosinápico y derivados del ácido 3-hidroxifenilpropiónico, los cuales exhiben una bioactividad sistémica duradera.
Una vez internalizado por la circulación portal a través del epitelio colónico y distal, el ácido sinápico alcanza el lecho vascular hepático. En los hepatocitos, es sustrato de procesos de biotransformación de Fase II: glucuronidación y sulfatación mediadas por UDP-glucuronosiltransferasas (UGT) y sulfotransferasas (SULT). Curiosamente, los conjugados glucurónidos de ácido sinápico retienen una considerable fracción de su potencial antioxidante e inducen respuestas paracrinas antes de ser excretados por vía biliar o renal. Este circuito enterohepático prolonga la vida media del metabolito en plasma a más de 6-8 horas, manteniendo concentraciones micromolares constantes en el parénquima funcional del hígado.
Hepatoprotección Molecular y Modulación de la Vía Nrf2/ARE
El eje fisiopatológico sobre el cual el ácido sinápico exhibe su acción más contundente es la activación del factor de transcripción nuclear eritroide 2 relacionado con el factor 2 (Nrf2). En condiciones basales de homeostasis, Nrf2 se encuentra secuestrado en el citoplasma celular por la proteína homodímera Keap1, la cual promueve su continua ubiquitinación y degradación proteasomal. Las propiedades electrofílicas suaves del ácido sinápico y sus metabolitos intermedios interactúan selectivamente con residuos críticos de cisteína (como Cys151) en los dominios sensores de Keap1, provocando un cambio conformacional que interrumpe la unión represiva y permite la translocación nuclear libre de Nrf2.
Una vez dentro del núcleo del hepatocito, Nrf2 heterodimeriza con pequeñas proteínas Maf y se ensambla específicamente sobre las secuencias consenso del Elemento de Respuesta Antioxidante (ARE) en las regiones promotoras de múltiples genes citoprotectores. Esta unión induce un incremento exponencial en la transcripción de enzimas vitales de Fase II: superóxido dismutasa (SOD), catalasa (CAT), hemooxigenasa-1 (HO-1), glutatión peroxidasa (GPx) y la subunidad catalítica de la glutamato-cisteína ligasa (GCLC). El resultado neto es una robusta reconstitución del pool intracelular de glutatión reducido (GSH), blindando al hepatocito contra el colapso peroxidativo inducido por xenobióticos, metales pesados o endotoxinas circulantes.
Paralelamente, la inducción de HO-1 mediada por ácido sinápico cataliza la degradación del grupo hemo libre prooxidante en monóxido de carbono (CO, un modulador vasodilatador y antiinflamatorio en microvasculatura hepática) y biliverdina, que es rápidamente reducida a bilirrubina, otro potente captador de radicales lipídicos. Esta cascada genómica contrarresta la necrosis y apoptosis celular en cuadros de sobrecarga metabólica. De este modo, la mostaza y sus ésteres de sinapina operan como un reprogramador epigenético y adaptativo, enseñando al hígado a defenderse activamente en lugar de depender únicamente de antioxidantes exógenos pasivos.
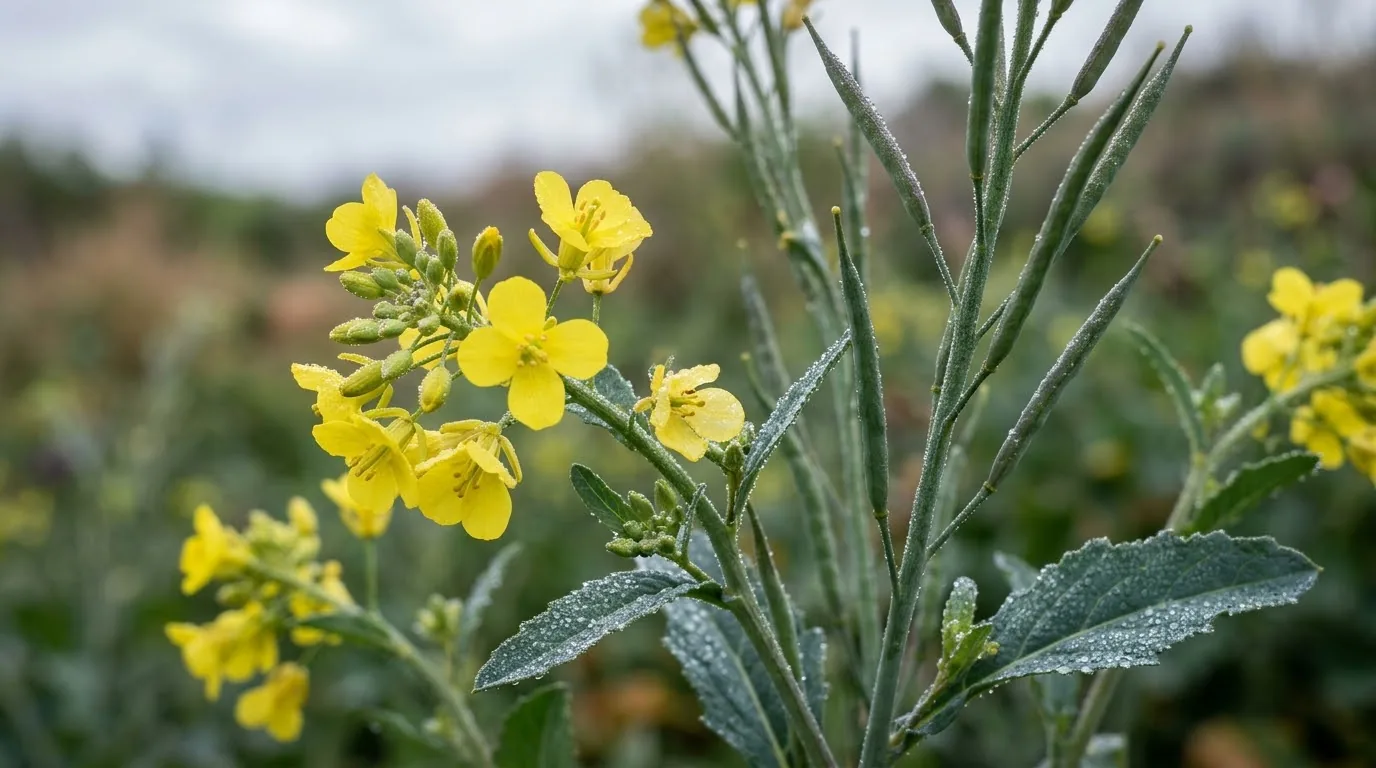
Regulación de la Lipogénesis y Esteatosis Hepática No Alcohólica
La enfermedad por hígado graso metabólico (MAFLD) se caracteriza por un desequilibrio patológico entre el influjo y la síntesis de novo de ácidos grasos frente a su oxidación y exportación en lipoproteínas de muy baja densidad (VLDL). La investigación preclínica ha desvelado que el ácido sinápico actúa como un modulador alostérico positivo de la proteína quinasa activada por AMP (AMPK). Al fosforilar la subunidad Thr172 de AMPK en los hepatocitos sobrecargados de glucosa y fructosa, el ácido sinápico frena drásticamente las vías anabólicas de síntesis lipídica y acelera las rutas catabólicas oxidativas de rescate.
La activación de AMPK por este fenol crucífero suprime la expresión y la maduración proteolítica del factor de transcripción SREBP-1c (Sterol Regulatory Element-Binding Protein 1c) y de la proteína ChREBP. Como consecuencia directa, se desactiva la maquinaria transcripcional de enzimas lipogénicas clave: la acetil-CoA carboxilasa (ACC) y la sintasa de ácidos grasos (FAS). Al inhibir a la ACC, disminuyen los niveles citosólicos de malonil-CoA, lo cual levanta el freno fisiológico sobre la carnitina palmitoiltransferasa-1 (CPT-1). Con CPT-1 desinhibida, los ácidos grasos libres de cadena larga son transportados con celeridad hacia la matriz mitocondrial para su combustión mediante β-oxidación, disipando la acumulación ectópica de triglicéridos.
Asimismo, el ácido sinápico atenúa el estrés del retículo endoplásmico rugoso, un detonante primario de la resistencia a la insulina hepática. Al modular la expresión del receptor activado por proliferadores de peroxisomas alfa (PPAR-α) y coactivadores como PGC-1α, las formulaciones que incorporan extractos de semillas de mostaza han demostrado frenar el hinchamiento balonizante de los hepatocitos y la posterior activación de las células estrelladas hepáticas (HSCs). Esta doble acción metabólica y antifibrótica convierte al ácido sinápico en un candidato dietético de primer orden para la profilaxis de la esteatohepatitis no alcohólica (NASH).
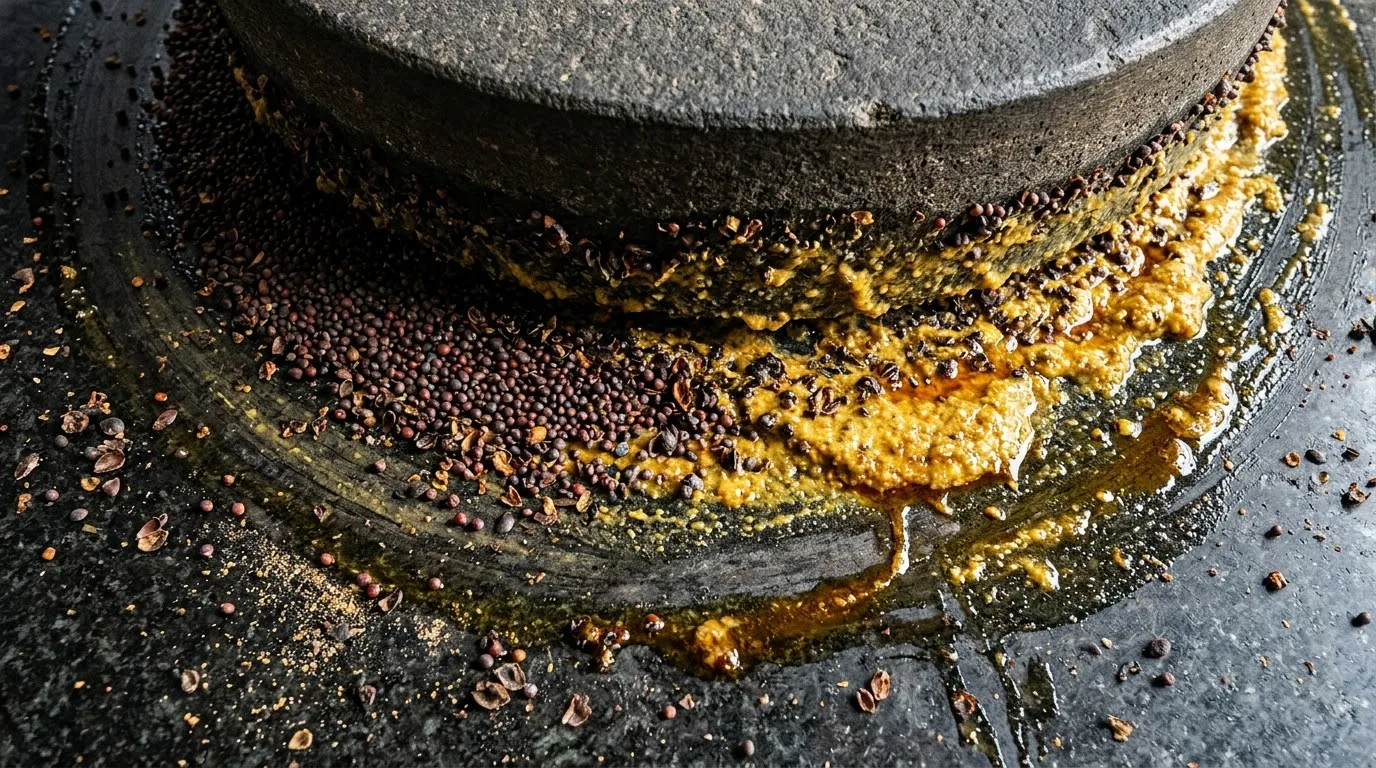
Dinámica Fitoquímica entre Mostaza Negra, Parda y Blanca
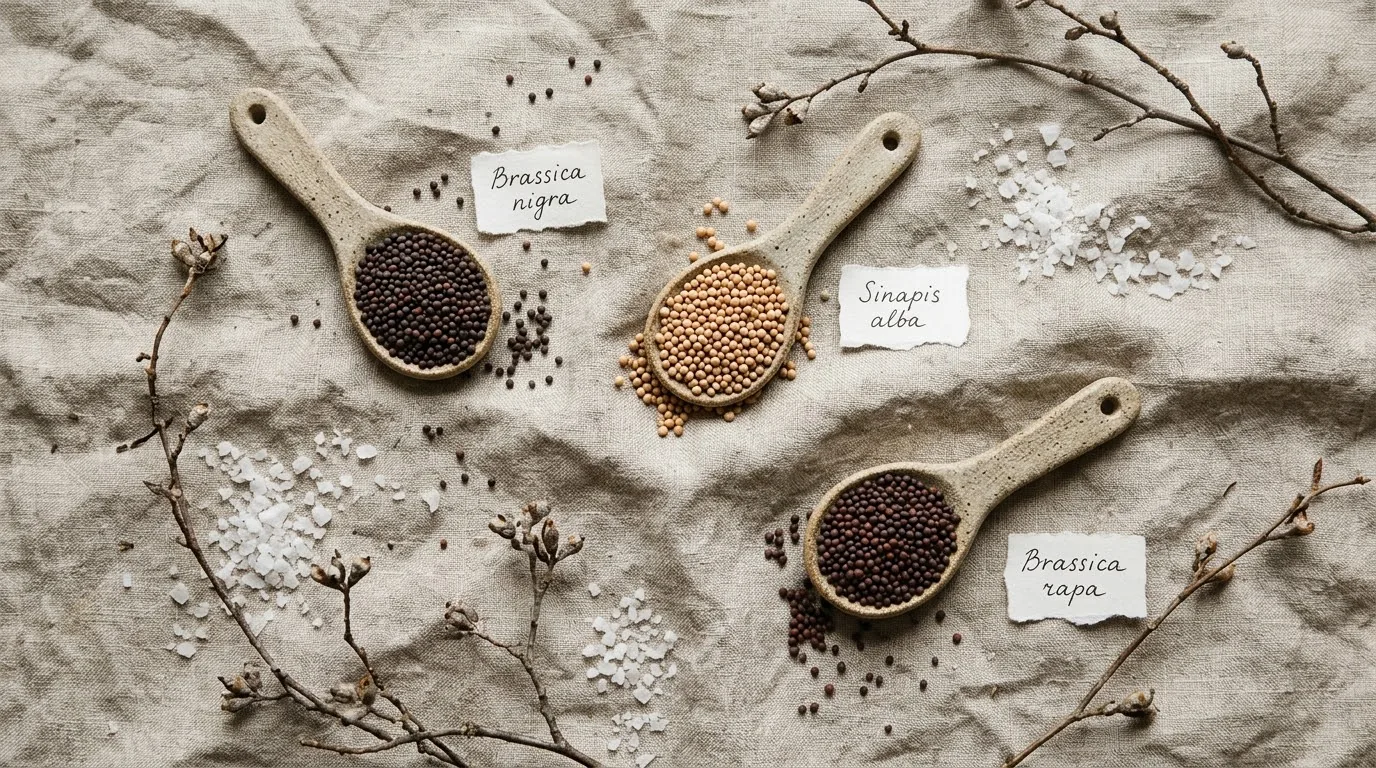
No todas las semillas de mostaza ostentan la misma densidad ni el mismo equilibrio fitoquímico. La botánica clasifica comercial y culinariamente tres variedades primordiales: Brassica nigra (mostaza negra), Brassica juncea (mostaza parda o de Sarepta) y Sinapis alba (mostaza blanca o amarilla). Aunque las tres especies sintetizan ésteres de sinapina, la concentración por gramo de materia seca varía ampliamente en función de factores edafológicos, latitud de cultivo y estrés lumínico. Sinapis alba, en particular, destaca históricamente por acumular los mayores tenores basales de sinapina esterificada en su cotiledón, alcanzando concentraciones superiores a los 25-30 mg/g de semilla desgrasada.
En contraposición, las especies del género Brassica (B. nigra y B. juncea) combinan niveles moderados de sinapina libre y conjugada con un perfil extraordinariamente denso de glucosinolatos alifáticos como la sinigrina. Al hidrolizarse por acción de la enzima mirosinasa tras la ruptura celular mecánica, la sinigrina genera isotiocianato de alilo (AITC), una molécula volátil e intensamente pungente. En cambio, Sinapis alba alberga sinalbina, un glucosinolato hidroxilado cuyo isotiocianato resultante (isotiocianato de 4-hidroxibencilo) carece de volatilidad pero aporta una pungencia lingual astringente y una sinergia antioxidante directa con los ésteres fenólicos del pericarpio.
La tabla comparativa entre las especies principales evidencia cómo el gastrónomo informado puede calibrar tanto el impacto en el paladar como el perfil biológico de su preparación culinaria:
La mezcla magistral de estas variedades permite alcanzar una concentración óptima de ácido sinápico biodisponible a la vez que modula la cinética enzimática durante la emulsión.
Transformación Culinaria: Molienda, Fermentación y Estabilidad
El manejo térmico y físico de las semillas en la alta cocina determina de forma crítica la retención o pérdida de sus compuestos bioactivos. El ácido sinápico libre es una molécula térmicamente estable en rangos culinarios moderados, resistiendo temperaturas de hasta 160-180 °C sin degradación decarboxilativa masiva. No obstante, sus ésteres de sinapina son susceptibles a la pirolisis y a la hidrólisis degradativa indeseada si se someten a tostados directos y agresivos en sartén seca por encima de los 190 °C, fenómeno que puede provocar la polimerización de compuestos fenólicos y la pérdida de hasta un 40% de su capacidad antioxidante equivalente a trolox (TEAC).
La preservación de la arquitectura fenólica requiere recurrir a técnicas de molienda en frío sobre muelas de granito o piedra volcánica húmeda. Al hidratar la semilla con una solución ligeramente ácida —como un vinagre madre no pasteurizado o un verjus tradicional con pH comprendido entre 3,2 y 3,8—, se estabiliza la molécula de sinapina frente a la autooxidación alcalina. Además, el medio ácido frena la desactivación de fitoalexinas y permite que las proteasas endógenas actúen lentamente, liberando precursores polipeptídicos que texturizan de forma cremosa la suspensión acuosa sin requerir espesantes artificiales.
Un enfoque de vanguardia reside en la lactofermentación controlada de las semillas de mostaza previo a su emulsión final. Al inocular mostaza en grano con cepas seleccionadas de Lactiplantibacillus plantarum en salmuera al 2,5% durante 14 a 21 días, las sinapoil-esterasas bacterianas hidrolizan de forma natural y progresiva la sinapina en ácido sinápico biológicamente libre y colina. Este proceso fermentativo mitiga el amargor astringente nativo, incrementa la biodisponibilidad directa en el tracto intestinal proximal y genera un bouquet de ésteres aromáticos afrutados de inmensa complejidad organoléptica.
Sinergias Moleculares y Gastronomía Funcional en la Mesa
La integración del ácido sinápico en la alta cocina trasciende la preparación aislada de condimentos para convertirse en un articulador de sinergias bioquímicas. Al combinar mostaza en grano artesanal con grasas monoinsaturadas ricas en polifenoles —como el aceite de oliva virgen extra de cosecha temprana rico en oleocantal y oleaceína—, se produce una microemulsión que incrementa drásticamente la solubilidad del ácido sinápico. La matriz lipídica estimula la secreción de sales biliares y la formación de micelas mixtas, multiplicando la permeación enterocitaria de los componentes lipofílicos tanto de la semilla como de los ingredientes asociados.
Un maridaje paradigmático de esta arquitectura nutricional se manifiesta al asociar salsas ricas en mostaza con cortes de pescados azules ricos en ácidos grasos omega-3 poliinsaturados (EPA y DHA). Los ácidos grasos de cadena larga son propensos a sufrir estrés oxidativo inducido por calor durante la cocción o la digestión. La presencia de ácido sinápico en la superficie del corte frena de raíz la generación de hidroperóxidos lipídicos y malondialdehído. Por ejemplo, al preparar un pescado de gran nobleza en la parrilla, aplicar una marinada con mostaza de grano entero antes del fuego crea una barrera de protección celular que dialoga armónicamente con atun rojo de almadraba a la brasa, donde los ésteres fenólicos mitigan los radicales libres de la brasa viva.
Asimismo, la combinación del ácido sinápico con micronutrientes donantes de azufre, como los encontrados en alliums (ajo negro, chalotas fermentadas) o crucíferas de hoja, genera un efecto sinérgico sobre la síntesis de glutatión endógeno en el hepatocito. La alta cocina contemporánea no concibe estos ingredientes como simples acompañamientos decorativos, sino como componentes catalizadores de la salud humana. Saborear una vinagreta viva de mostaza silvestre es, en última instancia, suministrar a nuestra fisiología una lección botánica de resistencia oxidativa formulada con la máxima elegancia culinaria.
Pautas Nutricionales & Recomendaciones Dietéticas
Activación enzimática en frío: Muele las semillas de mostaza siempre a bajas temperaturas (o con mortero de piedra enfriado) para evitar la desnaturalización térmica de los ésteres de sinapina y preservar la biodisponibilidad de sus metabolitos.
Estabilización en medio ácido noble: Hidrata la mostaza triturada con vinagre de sidra sin filtrar o verjus; el pH inferior a 4 frena la degradación oxidativa del ácido sinápico y potencia su estabilidad fenólica durante meses.
Sinergia con lípidos de calidad: Emulsiona la mostaza con aceite de oliva virgen extra de recolección temprana; los triglicéridos insaturados facilitan la incorporación del ácido sinápico libre en micelas digestivas mixtas.
Lactofermentación previa: Someter las semillas a una salmuera láctica al 2,5% durante dos semanas desdobla los enlaces éster de la sinapina, multiplicando el contenido de ácido sinápico libre fácilmente asimilable.
Preguntas y Respuestas Frecuentes (10 Claves)
Respuestas a las preguntas y aspectos técnicos más consultados sobre esta investigación gastronómica.
El ácido sinápico es un ácido fenilpropanoide carboxílico libre con un anillo aromático di-metoxilado. La sinapina es el éster de colina de este compuesto, es decir, el ácido sinápico condensado con una molécula de colina, que es la forma botánica de almacenamiento predominante en las semillas de mostaza.
Estimula la fosforilación de AMPK, lo que conlleva la represión de factores de transcripción lipogénicos como SREBP-1c. Esto reduce la síntesis de nuevos triglicéridos y activa la CPT-1 mitocondrial, acelerando la quema y β-oxidación de ácidos grasos en el hepatocito.
La mayoría de las mostazas ultraprocesadas sufren pasteurizaciones agresivas, filtraciones y dilución excesiva con espesantes, agua y azúcares, lo cual reduce drásticamente su densidad fitoquímica. Es preferible optar por mostazas tradicionales de grano entero elaboradas en frío o mostazas artesanales no pasteurizadas.
El ácido sinápico actúa como un electrófilo suave que interactúa con los sensores de cisteína de la proteína Keap1 en el citoplasma. Esto libera a Nrf2, permitiendo su migración al núcleo donde se une a los elementos de respuesta antioxidante (ARE), incrementando enzimas clave como SOD, catalasa y glutatión peroxidasa.
Un tostado suave y controlado (inferior a 130 °C durante menos de 2 minutos) incrementa la extractabilidad de los compuestos sin dañarlos gravemente. Sin embargo, tostados intensos por encima de los 180-190 °C provocan la descomposición térmica y pirolítica del ácido sinápico y sus ésteres.
La mostaza blanca o amarilla (Sinapis alba) presenta por lo general las concentraciones relativas más altas de sinapina por gramo de materia seca cotiledonar, seguida de la mostaza parda (Brassica juncea) y la mostaza negra (Brassica nigra).
Cuando la microbiota intestinal rompe el enlace éster, la molécula de colina queda biodisponible para el organismo, participando como donante de grupos metilo, en la síntesis de fosfatidilcolina (esencial para la secreción hepática de VLDL) y en la formación de acetilcolina.
Las bacterias ácido-lácticas poseen enzimas carboxilesterasas que hidrolizan de forma natural la sinapina en ácido sinápico libre antes del consumo, lo cual facilita una absorción más temprana en el tracto digestivo y reduce el amargor excesivo de las semillas crudas.
En personas con patologías gástricas agudas (úlceras activas, gastritis erosiva severa), los isotiocianatos y la pungencia general pueden provocar irritación de la mucosa. Además, pacientes con hipotiroidismo descompensado deben moderar la ingesta masiva de crucíferas crudas debido a los tiocianatos competitivos con el yodo.
Existe un sinergismo polifenólico positivo: los ácidos clorogénicos del café y las catequinas del té verde operan a través de vías complementarias de modulación de sirtuinas y AMPK, reforzando la protección antioxidante intracelular sin interferir en la absorción del ácido sinápico.