En el epicentro de la biología molecular y la nutrición avanzada, las xantofilas representan una de las adaptaciones evolutivas más fascinantes del reino vegetal puestas al servicio de la fisiología humana. La luteína y la zeaxantina, pigmentos dihidroxilados pertenecientes a la familia de los carotenoides, no solo otorgan sus tonalidades doradas y esmeraldas a las matrices botánicas más nobles, sino que actúan como auténticos escudos fotoquímicos y moduladores biofísicos de las membranas plasmáticas celulares. Sin embargo, su ingestión aislada resulta biológicamente estéril sin comprender la arquitectura de su vehículo de transporte: su naturaleza lipofílica exige un diseño digestivo milimétrico.
La ciencia contemporánea ha demostrado de manera inequívoca que la absorción intestinal de estos fitoquímicos no depende exclusivamente de su concentración cuantitativa en el plato, sino de su capacidad intrínseca para integrarse en micelas mixtas durante la digestión duodenal. En este escenario, los ácidos grasos monoinsaturados (MUFA) —cuyo estandarte universal es el ácido oleico presente en el aceite de oliva virgen extra— actúan como catalizadores termodinámicos ideales. A diferencia de las grasas saturadas de cadena larga o los aceites poliinsaturados prooxidativos, las matrices monoinsaturadas facilitan una conformación micelar flexible que multiplica exponencialmente la captación por parte de los enterocitos mediante transportadores proteicos específicos.
Trascendiendo la clásica frontera del tracto digestivo, este binomio molecular orquesta dos de los fenómenos más determinantes para la longevidad sensorial: la preservación de la Densidad Óptica del Pigmento Macular (MPOD) en la retina central y el enriquecimiento selectivo de la corteza cerebral y el hipocampo. La gastronomía molecular bien entendida deja de ser un mero ejercicio organoléptico para convertirse en una herramienta de precisión bioactiva, donde la cocción atemperada, el emulsionado inteligente y la selección de grasas saludables rescatan al organismo del deterioro fototóxico y el declive cognitivo.
Ficha de Valor Nutricional & Evidencia Científica
Patrón dietético mediterráneo neuro-oftalmológico de alta biodisponibilidad lipídica
Luteína, Zeaxantina, Meso-zeaxantina, Ácido Oleico (MUFA C18:1), Tocoferoles (Vitamina E)
Incremento de la Densidad Óptica del Pigmento Macular (MPOD), protección frente a fototoxicidad por luz azul y optimización de la velocidad de procesamiento neural
Ensayos clínicos aleatorizados AREDS2, estudios biomarcadores MPOD y cohortes de neuroimagen cerebral (Memory and Aging Project)
La Dinámica Molecular de las Xantofilas y su Destino Retiniano
A diferencia de los carotenos hidrocarbonados puros como el betacaroteno o el licopeno, la luteína (β,ε-caroteno-3,3'-diol) y la zeaxantina (β,β-caroteno-3,3'-diol) se distinguen químicamente por la presencia de grupos hidroxilo (-OH) situados en los extremos de sus anillos ionona terminales. Esta peculiaridad estructural les confiere el estatus de xantofilas, otorgándoles una polaridad anfipática moderada que condiciona de forma radical su comportamiento físico-químico tanto en las matrices vegetales como en las bicapas lipídicas humanas.
Dentro de la anatomía ocular humana, estos pigmentos se concentran con una especificidad biológica asombrosa en la región central de la retina: la mácula lútea, y de forma milimétrica en la fóvea centralis. Mientras que la zeaxantina y su isómero metabólico derivado, la meso-zeaxantina, predominan de forma absoluta en el núcleo foveal de mayor resolución visual, la luteína se distribuye preferencialmente en la región parafoveal circundante, estableciendo un gradiente cromático protector capaz de interceptar longitudes de onda cortas comprendidas entre los 400 y los 500 nanómetros (el espectro de la luz azul visible).
Esta arquitectura no es ornamental: la radiación de luz azul es intrínsecamente fototóxica debido a su elevada energía cuántica, capaz de desencadenar la producción de especies reactivas de oxígeno (ROS) al interactuar con los segmentos externos de los fotorreceptores y los gránulos de lipofuscina en el epitelio pigmentario retiniano (EPR). Las xantofilas actúan como un filtro óptico interno pasivo, atenuando la aberración cromática longitudinal y desactivando el oxígeno singlete (¹O₂) mediante un mecanismo de disipación vibracional térmica que preserva la integridad estructural de las membranas fotorreceptoras a lo largo de las décadas.
Asimismo, la correlación entre la concentración tisular de estos compuestos y la función visual se evalúa clínicamente a través de la Densidad Óptica del Pigmento Macular (MPOD). Niveles elevados de MPOD no solo confieren una protección robusta frente a la degeneración macular asociada a la edad (DMAE), sino que mejoran sustancialmente parámetros funcionales agudos como la sensibilidad al contraste, la tolerancia al deslumbramiento y la velocidad de recuperación post-fotolisis, consolidándose como marcadores de rendimiento visual primordiales tanto para la alta competición como para la longevidad biológica.
El Paradigma de la Micelación Intestinal y el Papel Crítico de los MUFA
Para que una molécula de luteína o zeaxantina ejerza su cometido antioxidante en el cerebro o la retina, debe superar primero un complejo laberinto hidrodinámico en la luz intestinal. Al ser moléculas lipofílicas con escasa solubilidad acuosa, su absorción celular en el borde en cepillo del enterocito es rigurosamente dependiente de su incorporación en agregados moleculares coloidales conocidos como micelas mixtas, compuestas por sales biliares, fosfolípidos, colesterol y los productos de la lipólisis enzimática pancreática.
Es en este preciso instante biofísico donde los ácidos grasos monoinsaturados (MUFA), personificados por el ácido oleico (cis-18:1 n-9), ejercen una superioridad metabólica abrumadora frente a otros perfiles grasos. Los triglicéridos ricos en ácidos grasos saturados (SFA) de cadena larga generan micelas densas, rígidas y de baja curvatura de interfase, dificultando el empaquetamiento molecular de los voluminosos anillos de las xantofilas. Por el contrario, los ácidos grasos poliinsaturados (PUFA), especialmente cuando se someten a estrés culinario térmico, sufren fenómenos de peroxidación lipídica que degradan oxidativamente los carotenoides durante el propio tránsito estomacal y duodenal.
La estructura monodesaturada cis del ácido oleico otorga a la micela mixta una fluidez de membrana interfacial óptima, reduciendo el tamaño hidrodinámico micelar y maximizando la solubilización termodinámica de las xantofilas libres. Diversos ensayos in vitro e in vivo han corroborado que la presencia concomitante de aceite de oliva virgen extra (AOVE) de extracción en frío duplica e incluso triplica la eficiencia de micelación de la luteína en comparación con vehículos grasos puramente saturados o dietas hipolipídicas.
Una vez ensambladas las micelas mixtas ricas en MUFA, el transporte a través de la membrana apical del enterocito no se realiza por difusión pasiva caótica, sino mediante receptores de barrido proteicos específicos, principalmente la glicoproteína transmembrana SR-BI (Scavenger Receptor Class B Type I) y la proteína CD36. La presencia de ácido oleico estimula positivamente la traslocación y funcionalidad de estos transportadores, garantizando una internalización celular masiva que culmina con el empaquetamiento de las xantofilas en los quilomicrones linfáticos.
Del Quilomicrón a la Barrera Hematoencefálica y Retiniana
El periplo plasmático de la luteína y la zeaxantina difiere sustancialmente del exhibido por otros carotenoides como el betacaroteno, el cual se segrega predominantemente en las lipoproteínas de baja densidad (LDL). Gracias a sus grupos hidroxilo polares, las xantofilas se ubican con mayor facilidad en la cubierta externa fosfolipídica de las lipoproteínas de alta densidad (HDL), un vehículo biológico dotado de propiedades antiaterogénicas y elevada capacidad de transporte inverso tisular.
Aproximadamente el 52% de la luteína sérica circula ligada a partículas de HDL, lo que representa una ventaja fisiológica extraordinaria. Las células del endotelio vascular del sistema nervioso central y del epitelio pigmentario de la retina presentan una sobreexpresión de receptores SR-BI, los cuales reconocen con extraordinaria avidez a las apolipoproteínas específicas de las HDL (como ApoA-I), facilitando la captación selectiva del cargamento antioxidante sin requerir la endocitosis destructiva de la lipoproteína.
Alcanzada la retina, intervienen transportadores intracelulares de una especificidad molecular fascinante. La proteína StARD3 (StAR-related lipid transfer domain protein 3) se une preferencialmente a la luteína en las membranas fotorreceptoras, mientras que la proteína GSTP1 (Glutatión S-Transferasa P1) reconoce de forma ultra-específica a la zeaxantina y la meso-zeaxantina en el citosol celular. Este anclaje macromolecular previene la difusión retrógrada del pigmento, consolidando el depósito retiniano más concentrado y biológicamente activo del cuerpo humano.
De manera idéntica, el cruce a través de la Barrera Hematoencefálica (BHE) está gobernado por el mismo mecanismo facilitado por HDL y transportadores lipídicos. En el tejido neural, la luteína se erige como el carotenoide cuantitativamente hegemónico, representando más del 65% de todos los carotenoides totales presentes en la corteza cerebral, a pesar de que en la circulación sistémica general solo constituya un tercio del pool circulante, demostrando un tropismo selectivo del cerebro humano hacia esta xantofila.
El Eje Ojo-Cerebro: Neurobiología, Cognición y Velocidad de Procesamiento
Durante décadas, la neurociencia consideró la acumulación macular de luteína como un fenómeno puramente circunscrito a la oftalmología preventiva. No obstante, las últimas investigaciones basadas en neuroimagen funcional (fMRI) y análisis post-mortem han revelado que la concentración de xantofilas en la retina correlaciona de manera lineal y directa con la concentración de luteína en cuatro áreas cerebrales neurálgicas: la corteza prefrontal, el hipocampo, el lóbulo temporal anterior y la corteza auditiva primaria.
Esta co-localización no es casual. En la microestructura cerebral, la luteína se incorpora de manera preferencial en las balsas lipídicas (lipid rafts) de las membranas neuronales y gliales, compartimentos ricos en esfingolípidos y colesterol que albergan los complejos proteicos responsables de la neurotransmisión sináptica. Su presencia estabiliza las propiedades viscoelásticas de la bicapa lipídica, optimiza la apertura de los canales iónicos y resguarda a los ácidos grasos poliinsaturados de cadena muy larga, especialmente el ácido docosahexaenoico (DHA), de los procesos de degradación oxidativa por radicales libres.
A nivel funcional cognitivo, los ensayos clínicos aleatorizados en poblaciones adultas y mayores demuestran que la optimización sostenida de los niveles de xantofilas mediante matrices alimentarias completas genera mejoras mensurables en tres dominios clave: la memoria de trabajo espacial, la eficiencia en la resolución de problemas (flexibilidad ejecutiva) y, de forma muy destacada, la velocidad de procesamiento psicomotor. La densidad óptica macular se ha consolidado formalmente en neurociencia como un biomarcador no invasivo y fidedigno del estado antioxidante cerebral total.
Asimismo, la luteína ejerce un efecto protector frente a la neuroinflamación mediada por la microglía. Al inhibir la cascada de señalización proinflamatoria del factor nuclear kappa B (NF-κB) y reducir la síntesis de citoquinas inflamatorias como la IL-1β y el TNF-α, preserva la plasticidad sináptica y la viabilidad del factor neurotrófico derivado del cerebro (BDNF), mitigando la atrofia del hipocampo asociada al envejecimiento patológico.
Biodisponibilidad en Alta Gastronomía: De la Matriz Botánica a la Emulsión Culinaria
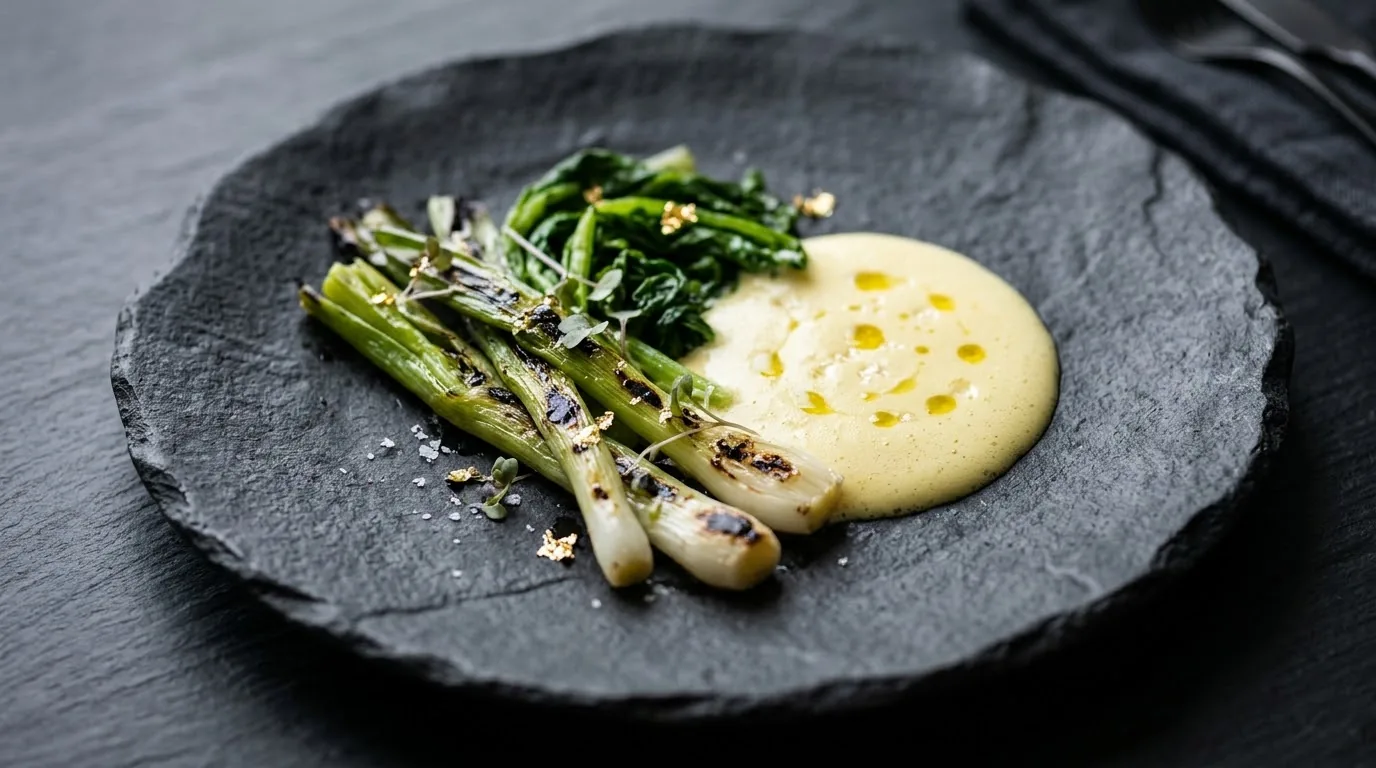
El gran desafío nutricional de la luteína y la zeaxantina reside en su ubicación dentro del tejido vegetal. En hojas verdes como la espinaca, las acelgas o el kale (Brassica oleracea var. sabellica), estos carotenoides se encuentran fuertemente confinados en los complejos antena de los cloroplastos, imbricados en complejas redes de celulosa, hemicelulosa y pectina que conforman una pared celular rígida e inasimilable para los enzimas digestivos humanos.
Consumir estos vegetales crudos sin procesado mecánico ni vehículo graso acarrea una biodisponibilidad prácticamente anecdótica, inferior al 5%. Para liberar la xantofila de su jaula macromolecular, la alta cocina científica recurre a técnicas precisas de ruptura mecánica y térmica controlada:
- Blanqueado hidrotérmico ultracorto: Un escaldado a 95 °C durante 45 a 60 segundos desnaturaliza las proteínas cloroplásticas y reblandece la lámina media celular sin degradar la molécula del carotenoide, permitiendo un desprendimiento tisular masivo.
- Trituración por microcizallamiento: El procesado mediante batidoras de alto par o refinadoras planetarias rompe mecánicamente los cloroplastos, liberando el pigmento en el medio acuoso circundante.
- Micronización lipídica en presencia de AOVE: La adición simultánea de aceite virgen extra durante o inmediatamente después del tratamiento térmico permite que la xantofila apolar se disuelva en las microgotas lipídicas hidrófobas antes de entrar en contacto con el tracto gastrointestinal.
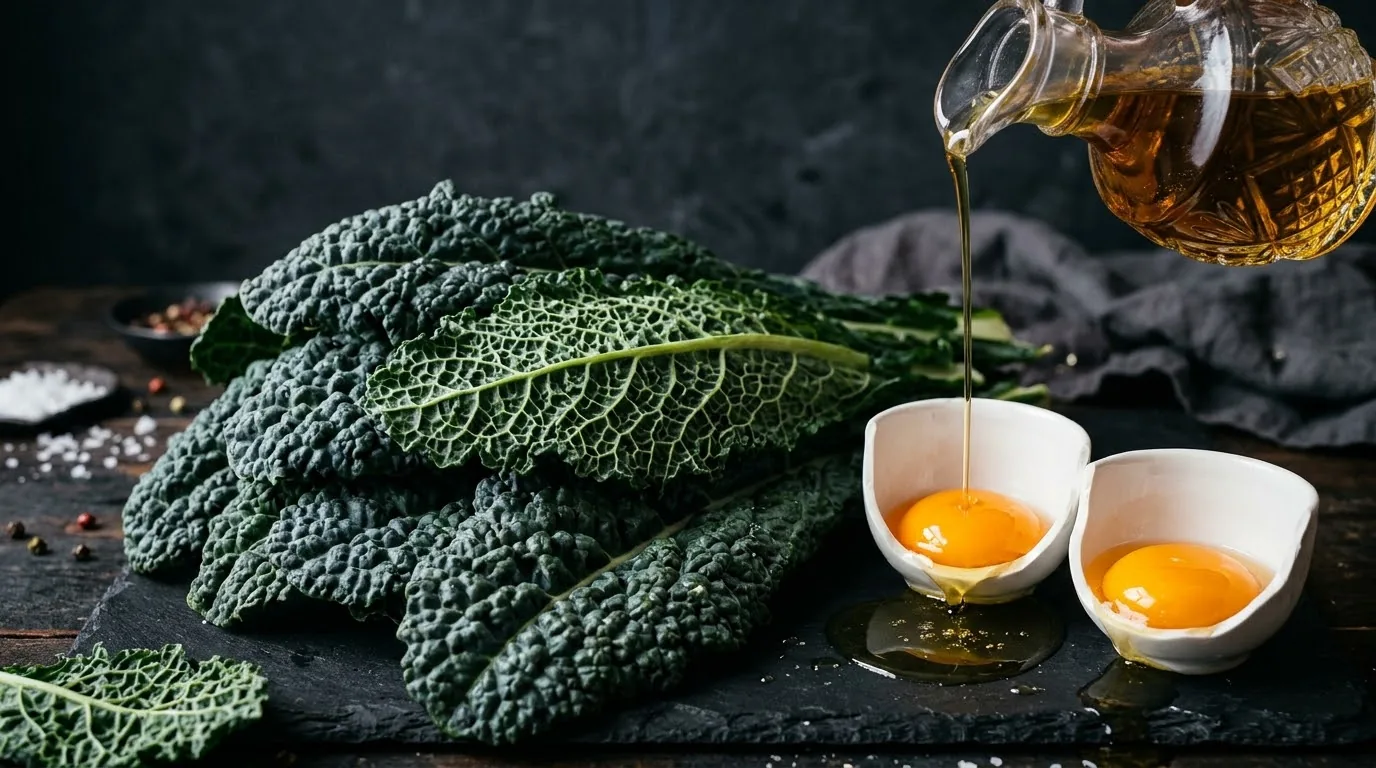
Por otra parte, la matriz biológica de la yema de huevo de pastoreo ofrece el modelo perfecto de biodisponibilidad sinérgica natural. Aunque la concentración absoluta de luteína por gramo de yema es menor que en el kale, se encuentra pre-disuelta en una emulsión lipídica nativa constituida por triglicéridos monoinsaturados, fosfolípidos (fosfatidilcolina) y colesterol. Este entramado biofísico otorga a las xantofilas del huevo una tasa de absorción intestinal entre cuatro y seis veces superior a la de cualquier fuente vegetal aislada, convirtiéndola en el estándar de oro biológico.
La Alquimia Sinergista: Polifenoles, Tocoferoles y Grasa Monoinsaturada
En la fisiología celular, ningún fitoquímico actúa como un monarca solitario. El éxito de las xantofilas en la protección del tejido macular y cerebral depende de una red molecular integrada conocida como la cascada antioxidante de rescate. Durante su función protectora, cuando una molécula de luteína neutraliza un radical libre o disipa un cuanto lumínico perjudicial, se oxida temporalmente a un radical catiónico carotenoide, el cual, de no ser regenerado inmediatamente, se convierte a su vez en una especie potencialmente prooxidativa y citotóxica.
Es aquí donde la elección del aceite de oliva virgen extra (AOVE) de cosecha temprana despliega su magia bioquímica única. El AOVE no solo aporta ácido oleico (MUFA) como solvente hidrodinámico, sino un arsenal de orto-difenoles (como el hidroxitirosol y la oleuropeína) y alfa-tocoferol (vitamina E). El alfa-tocoferol actúa en la interfase lipídica interceptando el radical de la xantofila y restaurando su estado nativo reducido mediante la donación de un protón hidroxílico.
A su vez, los polifenoles hidrófilos regeneran la vitamina E oxidada, completando un ciclo virtuoso continuo de estabilidad oxidativa que blinda tanto el alimento durante su cocinado culinario como las micelas durante su tránsito duodenal y las HDL en el torrente circulatorio.
Estrategias de Emplatado y Protocolos de Cocina de Precisión Neuro-Nutricional
La traslación de la ciencia de las xantofilas a la experiencia culinaria de vanguardia exige superar tanto el reduccionismo farmacológico como el descuido térmico tradicional de los hogares. Diseñar un protocolo gastronómico que maximice la MPOD y la agilidad cognitiva requiere un estricto control de la temperatura, el oxígeno y el tiempo de exposición en las preparaciones cotidianas.
1. El Salteado Atemperado en Grasa Virgen Extra
Frente al mito erróneo de consumir siempre vegetales en crudo, la técnica del salteado breve a la sartén de hierro o acero inoxidable a temperaturas controladas entre 120 °C y 140 °C durante no más de 3 a 4 minutos en presencia generosa de AOVE (15 a 20 ml por ración) genera la ruptura térmica ideal de las matrices de la espinaca, acelga o grelo, colapsando el volumen foliar e induciendo una solubilización inmediata de las xantofilas en la fase oleosa sin alcanzar el punto de termo-degradación de los dobles enlaces conjugados.
2. El Arte de la Emulsión Fría y Templada
La creación de salsas emulsionadas de autor —como un alioli suave emulsionado con base de yema de huevo cruda de pastoreo, ajo machacado (rico en alicina estimulante de la circulación microvascular) y AOVE virgen extra mono-varietal— constituye el vehículo lipídico más formidable jamás concebido. Esta preparación reúne en un solo bocado los tres pilares biofísicos: el carotenoide hidroxilado, el fosfolípido vesicular y el ácido graso monoinsaturado fluido.
Integrar estas preparaciones no requiere suplementación sintética ni rituales asépticos. Una gastronomía inteligente celebra el color verde intenso de la clorofila vegetal, abraza el dorado ambarino de la yema campera y se perfuma con la untuosidad pungente de un aceite virgen extra rico en polifenoles, forjando una sinfonía sensorial que nutre, desde el placer, la lucidez celular del cerebro y la nitidez cristalina de la mirada.
Pautas Nutricionales & Recomendaciones Dietéticas
Regla de la Matriz Lipídica Obligatoria: Nunca consumas fuentes ricas en luteína (espinacas, kale, acelgas) sin un mínimo de 10-15 gramos de aceite de oliva virgen extra o yema de huevo; sin lípidos vehiculares, más del 90% del carotenoide se excreta sin absorber.
Control Térmico Crítico: Evita la ebullición prolongada en abundante agua que lixivie nutrientes. Prefiere el vapor corto (menos de 2 minutos) o el salteado breve a menos de 140 °C para romper paredes celulares sin isomerizar la xantofila de conformación trans a formas cis menos biodisponibles.
Sinergia de la Yema de Huevo: La fosfatidilcolina presente en la yema de huevo natural actúa como un tensioactivo biocompatible que multiplica la tasa de micelación de cualquier vegetal verde consumido en la misma comida.
Almacenamiento Anti-Oxidativo: Guarda el AOVE y los frutos botánicos ricos en carotenoides en recipientes opacos alejados del oxígeno y la luz solar directa para impedir la fotodegradación previa de los dobles enlaces conjugados.
Preguntas y Respuestas Frecuentes (10 Claves)
Respuestas a las preguntas y aspectos técnicos más consultados sobre esta investigación gastronómica.
La luteína y la zeaxantina son fitoquímicos liposolubles que requieren ser disueltos en micelas mixtas durante la digestión duodenal para ser absorbidos por el epitelio intestinal. Los ácidos grasos monoinsaturados (MUFA), como el ácido oleico del aceite de oliva virgen extra, optimizan la fluidez y el tamaño de estas micelas y estimulan los transportadores de membrana (SR-BI y CD36), multiplicando su absorción biológica en comparación con dietas bajas en grasas o ricas en grasas saturadas rígidas.
La diferencia fundamental radica en su composición química elemental: los carotenos (como el betacaroteno y el licopeno) son hidrocarburos puros formados exclusivamente por carbono e hidrógeno. Las xantofilas (como la luteína y la zeaxantina) son carotenoides oxigenados que contienen grupos hidroxilo (-OH) en sus extremos moleculares, lo que les confiere polaridad anfipática y una distribución específica en las lipoproteínas HDL y las membranas retinianas.
La MPOD es una medida biofísica clínica que cuantifica la concentración y grosor de la capa de pigmento de xantofilas en la mácula lútea de la retina. Se evalúa de forma no invasiva mediante técnicas oftalmológicas como la densitometría por fotometría de parpadeo heterocromático (HFP) o la reflectometría de fondo de ojo. Un valor elevado de MPOD se asocia con agudeza visual superior, protección contra la degeneración macular y mayor salud cerebral.
La luteína atraviesa selectivamente la barrera hematoencefálica transportada por las HDL y se deposita en la corteza prefrontal y el hipocampo. Allí se integra en las balsas lipídicas de las neuronas, protegiendo al ácido graso DHA de la peroxidación, reduciendo la inflamación microglial (vía NF-κB) y optimizando la velocidad de conducción sináptica, lo que se traduce clínicamente en mayor velocidad de procesamiento y mejor memoria espacial de trabajo.
Porque en la yema de huevo las xantofilas se encuentran ya emulsionadas de forma natural en una matriz homogénea de triglicéridos monoinsaturados, fosfolípidos (lecitina) y colesterol. A diferencia de las hojas verdes, donde el pigmento está secuestrado en cloroplastos dentro de rígidas paredes celulósicas, la yema presenta una biodisponibilidad relativa entre 4 y 6 veces mayor, requiriendo menor esfuerzo enzimático para su absorción intestinal.
La cocción excesiva, agresiva o prolongedada en agua hirviendo sí puede isomerizar y degradar estos carotenoides. Sin embargo, un tratamiento térmico suave y breve (escaldado al vapor de 1 a 2 minutos o salteado a fuego medio en aceite de oliva) reblandece y fragmenta las paredes celulares vegetales, logrando que la luteína quede biodisponible y liberada, incrementando notablemente su absorción real respecto al vegetal crudo.
La meso-zeaxantina es un estereoisómero de la zeaxantina que se localiza con altísima concentración en el centro geométrico de la fóvea. Aunque se halla en pequeñas cantidades en ciertos alimentos (como la piel de peces marinos o insectos), en el organismo humano se sintetiza principalmente de manera endógena en la propia retina a partir de la luteína dietética ingerida mediante una reacción de isomerización enzimática.
Aunque los suplementos concentrados de ésteres de luteína pueden elevar los niveles séricos, los alimentos integrales ofrecen matrices sinérgicas que contienen tocoferoles, fosfolípidos, clorofila y fenoles que evitan la auto-oxidación del pigmento durante la digestión. Asimismo, los ensayos señalan que la ingesta gastronómica regular dentro de un patrón alimentario mediterráneo estimula una incorporación tisular más homogénea y sostenida en el tiempo.
Los polifenoles del AOVE (especialmente hidroxitirosol y oleocantal) actúan como agentes de sacrificio antioxidante. Durante la digestión y el transporte en la circulación sanguínea, las xantofilas pueden oxidarse temporalmente al captar radicales; los polifenoles y la vitamina E del aceite virgen extra regeneran las moléculas de luteína y zeaxantina a su estado funcional reducido, maximizando su semivida biológica y su depósito tisular.
Los grandes ensayos clínicos oftalmológicos y cognitivos (como AREDS2 y Memory and Aging Project) señalan que una ingesta diaria sostenida de entre 10 y 20 mg de luteína y de 2 a 4 mg de zeaxantina induce incrementos significativos en la MPOD y mejoras en el rendimiento neuronal. Esta cantidad se alcanza fácilmente incorporando a diario una taza de hojas verdes ligeramente salteadas con 15 ml de AOVE y una yema de huevo de pastoreo.