En las fronteras más fascinantes de la biología molecular y la dietética contemporánea, existe un fenómeno biológico que desafía los límites convencionales de la muerte térmica y la desecación absoluta: la anhidrobiosis. Organismos extremófilos como el tardígrado, la larva de Polypedilum vanderplanki o la prodigiosa planta de la resurrección (Selaginella lepidophylla) son capaces de deshidratarse hasta perder más del noventa y ocho por ciento de su agua corporal y permanecer en un estado de latencia vítrea durante décadas. La molécula milagrosa detrás de esta suspensión animada no es un péptido complejo ni una hormona esquiva, sino un disacárido no reductor simétrico formado por dos moléculas de glucosa unidas por un enlace alfa-alfa-1,1-glucosídico: la trehalosa.
A diferencia de la sacarosa, la lactosa o la maltosa, la conformación tridimensional de la trehalosa le confiere una rigidez excepcional y una capacidad inigualable para atrapar moléculas de agua residuales mediante puentes de hidrógeno ultrapotentes, creando una matriz vítrea amorfa que protege las membranas biológicas y previene la desnaturalización de las proteínas estructurales. Sin embargo, su virtud más revolucionaria desde la perspectiva de la nutrición metabólica no radica únicamente en su condición de osmoprotector pasivo, sino en su papel como chaperona química y potente inductor fisiológico de la autofagia celular, un mecanismo de reciclaje lisosomal capaz de desmantelar y eliminar agregados proteicos tóxicos intracelulares vinculados al envejecimiento y a trastornos neurodegenerativos.
Comprender la bioquímica de la trehalosa transforma radicalmente el paradigma de cómo interpretamos los glúcidos en la alta cocina y en la alimentación para la longevidad. Lejos de actuar como un azúcar simple de rápida absorción que satura las rutas lipogénicas, la administración e incorporación gastronómica consciente de este carbohidrato ancestral modula transportadores específicos de glucosa, activa factores de transcripción lisosomales como el TFEB sin apagar la ruta anabólica de mTOR y ofrece una herramienta culinaria insuperable para preservar texturas, emulsiones y frescuras enzimáticas en preparaciones gastronómicas de vanguardia.
Ficha de Valor Nutricional & Evidencia Científica
Nutrición celular de precisión, proteostasis metabólica y autofagia independiente de mTOR
Trehalosa (alfa-D-glucopiranosil-(1->1)-alfa-D-glucopiranósido), chaperonas químicas osmoprotectoras, ergosterol fúngico, beta-glucanos
Activación del factor de transcripción TFEB, aclaramiento de agregados de huntingtina, alfa-sinucleína y beta-amiloide, estabilización proteica sin inhibición de mTORC1
Modelos preclínicos de neuroprotección (Rubinsztein et al.), ensayos de bioconversión de glucosa hepática (DeBosch et al.) y fisiología de anhidrobiosis celular (Crowe et al.)
Deconstrucción Estructural de la Trehalosa y el Fenómeno de la Anhidrobiosis
Para desentrañar el poder citoprotector de la trehalosa, es imperativo analizar su arquitectura estereoquímica única. Identificada molecularmente como alfa-D-glucopiranosil-(1->1)-alfa-D-glucopiranósido, este compuesto carece de carbonos anoméricos libres con capacidad hemiacetálica, lo que la define como un disacárido no reductor. Esta configuración confiere a la molécula una estabilidad química fuera de lo común: es extraordinariamente resistente a la hidrólisis ácida a altas temperaturas, no sufre la reacción de Maillard con aminoácidos primarios en condiciones fisiológicas normales y resiste la degradación térmica hasta superar los ciento treinta grados centísteros sin caramelizar prematuramente.
En el reino de la física molecular, la hipótesis del reemplazo del agua (water replacement hypothesis), formulada seminalmente por el biofísico John Crowe en la Universidad de California, demostró que la trehalosa sustituye de forma estequiométrica las moléculas de agua que rodean los grupos fosfato polares de los fosfolípidos de membrana. Cuando una célula experimenta una pérdida drástica de solvente hídrico o estrés térmico por congelación extrema, las cadenas lipídicas tienden normalmente a sufrir una transición de fase de estado cristalino líquido a gel rígido, rompiendo la integridad de la bicapa. La presencia de trehalosa intercala sus anillos piranoicos entre las cabezas hidrofílicas, expandiendo el empaquetamiento intermolecular y manteniendo la fluidez de la membrana incluso a cero absoluto de humedad relativa.
Asimismo, la trehalosa presenta la temperatura de transición vítrea (Tg) más elevada de todos los disacáridos naturales conocidos, alcanzando aproximadamente los ciento quince grados centígrados en estado anhidro. Esto significa que, ante la desecación o el estrés osmótico, el azúcar transiciona no hacia una estructura cristalina punzante que perforaría las organelas celulares, sino hacia un estado vítreo amorfo —un fluido sobreenfriado de altísima viscosidad—. En este 'vidrio molecular biológico', el movimiento difusional de enzimas, sustratos y complejos macromoleculares se desacelera en órdenes de magnitud de varios miles de veces, congelando la cinética de degradación celular sin alterar su ensamblaje funcional latente.
Las Chaperonas Químicas y la Prevención del Plegamiento Proteico Anómalo
En el entorno densamente poblado del citosol celular, donde la concentración de proteínas y macromoléculas alcanza habitualmente entre trescientos y cuatrocientos miligramos por mililitro, el fenómeno del molecular crowding representa una amenaza constante para la homeostasis. Tras su síntesis en los ribosomas, las cadenas polipeptídicas deben plegarse en conformaciones nativas biológicamente activas. No obstante, situaciones de estrés térmico, estrés oxidativo, mutaciones somáticas o senescencia celular provocan la exposición de parches hidrofóbicos que deberían permanecer en el núcleo interno de la proteína, lo que desencadena interacciones no nativas y conduce a la formación de agregados proteicos insolubles.
La maquinaria celular dispone de chaperonas moleculares endógenas —como las proteínas de choque térmico de las familias HSP70, HSP90 y HSP40— que actúan reconociendo estos parches hidrofóbicos para remodelar el plegamiento a expensas del consumo de trifosfato de adenosina (ATP). Sin embargo, bajo un estrés metabólico continuado o durante el declive funcional asociado a la edad, este sistema proteostático colapsa. Es aquí donde entran en juego las chaperonas químicas o cosolventes osmoprotectores, entre las cuales la trehalosa sobresale como el compuesto paradigmático de mayor eficacia termodinámica documentada.
El mecanismo físico-químico mediante el cual la trehalosa estabiliza el proteoma no implica una unión covalente ni interacciones de afinidad ligando-receptor convencionales, sino una exclusión preferencial de la superficie proteica (preferential exclusion). Debido a su gran volumen de exclusión estérico y a sus fuertes interacciones cohesivas con la red de puentes de hidrógeno del agua circundante, a la trehalosa le resulta termodinámicamente desfavorable entrar en contacto directo con la superficie de la proteína desnaturalizada. Este fenómeno incrementa exponencialmente el potencial químico del estado no plegado respecto al estado nativo compacto, empujando el equilibrio hacia la conformación funcional y confinando las proteínas en estados nativos resistentes a la fibrilación amiloide.
La Vía Lisosomal y la Activación de Autofagia Independiente de mTOR
Durante décadas, la inducción de la autofagia macrocelular —el proceso mediante el cual una célula engloba organelas dañadas y agregados macromoleculares en autofagosomas de doble membrana para fusionarlos con lisosomas— se consideró un fenómeno estrictamente subordinado a la inhibición del complejo proteico 1 de la diana de rapamicina en mamíferos (mTORC1). Agentes clásicos como la restricción calórica severa, el ayuno intermitente prolongado o fármacos como la rapamicina inducen autofagia precisamente apagando mTORC1. Sin embargo, apagar permanentemente esta vía genera efectos colaterales indeseables, como inmunosupresión, resistencia a la insulina periférica e inhibición de la síntesis proteica muscular.
El hito científico que consagró a la trehalosa en la neurobiología moderna fue el descubrimiento, liderado por el grupo de David Rubinsztein en la Universidad de Cambridge, de que este disacárido actúa como un inductor masivo de autofagia a través de una ruta totalmente independiente de mTOR. Las células tratadas con trehalosa mantienen activos los sustratos aguas abajo de mTORC1, tales como la quinasa S6K y la proteína 4E-BP1, lo que permite que el anabolismo muscular y la función celular basal persistan intactos mientras la maquinaria degradativa lisosomal se acelera a pleno rendimiento.
Investigaciones mecánicas más recientes han revelado que la trehalosa compite e inhibe de forma alostérica a la familia de transportadores facilitadores de glucosa GLUT (especialmente GLUT1, GLUT2, GLUT3 y GLUT8) en la membrana plasmática. Esta inhibición transitoria engaña a la célula simulando un estado de hipoglucemia intracelular profunda sin alterar la glicemia sistémica. En respuesta, se transloca rápidamente al núcleo el factor de transcripción EB (TFEB), el maestro genético que orquesta la biogénesis de la red lisosomal y la transcripción coordinada de docenas de genes englobados en la red CLEAR (Coordinated Lysosomal Expression and Regulation).
Impacto en Neurodegeneración y Enfermedades Conformacionales
El término proteinopatía o enfermedad conformacional engloba a un grupo heterogéneo de desórdenes devastadores cuyo nexo común es el depósito patológico de oligómeros y fibrillas proteicas insolubles en el citoplasma o en el espacio extracelular del tejido nervioso central. Entre ellos destacan la enfermedad de Huntington (consecuencia de expansiones tóxicas de poliglutamina en la proteína huntingtina), la enfermedad de Parkinson (asociada a los cuerpos de Lewy compuestos por filamentos de alfa-sinucleína) y la enfermedad de Alzheimer (caracterizada por marañas neurofibrilares de proteína tau hiperfosforilada y placas de beta-amiloide).
Cuando estas proteínas anómalas adquieren una conformación de lámina beta enriquecida, escapan a la degradación por el sistema ubiquitina-proteasoma de 26S debido a que sus agregados de alto peso molecular son incapaces de atravesar el estrecho barril proteolítico del proteasoma. De este modo, la vía autofágica-lisosomal se erige como la única ruta celular capaz de engullir y desintegrar tales estructuras mediante degradación enzimática ácida mediada por catepsinas.
En modelos animales transgénicos de Huntington y Parkinson, la suplementación oral con trehalosa ha demostrado atravesar con eficacia selectiva ciertas barreras endoteliales y estimular la eliminación de agregados celulares patológicos en cortes estriatales y corticales. Los animales tratados exhiben una reducción estadísticamente significativa de la muerte neuronal apoptótica, menor activación microglial neuroinflamatoria y una preservación motora superior, confirmando el potencial de las moléculas osmoprotectoras en la medicina mitocondrial y la longevidad del tejido neural.
Biodisponibilidad, Metabolismo Digestivo y el Rol de la Trehalasa Intestinal
A pesar de sus extraordinarias propiedades celulares in vitro, la incorporación de trehalosa por vía digestiva se enfrenta a una aduana biológica determinante: la enzima trehalasa (brush-border alpha-alpha-trehalase). Anclada mediante un dominio glicosilfosfatidilinositol (GPI) en la membrana de las microvellosidades del enterocito en el intestino delgado humano, la trehalasa hidroliza cada molécula de trehalosa en dos unidades idénticas de D-glucosa libre. Esta hidrólisis es extremadamente específica y rápida en individuos con dotación enzimática intacta, lo que históricamente generó dudas sobre si la molécula intacta lograba alcanzar el torrente circulatorio sistémico.
No obstante, estudios farmacocinéticos y nutricionales han documentado que la capacidad catalítica de la trehalasa intestinal se satura con relativa facilidad ante dosis orales moderadas (quince a veinticinco gramos ingeridos en matrices alimentarias densas). Cuando esta saturación ocurre, una fracción medible del disacárido evade la degradación enzimática y es absorbida intacta a través de vías paracelulares en el epitelio intestinal, detectándose niveles bioactivos de trehalosa libre en plasmaportal y circulación periférica.
Por otro lado, la fracción de trehalosa que no se absorbe en el yeyuno transita hacia el colon distal, donde no se comporta como un irritante osmótico dañino, sino como un sustrato prebiótico selectivo. La microbiota comensal del colon fermenta este disacárido dando lugar a ácidos grasos de cadena corta (AGCC), primordialmente acetato y butirato. Como es bien sabido en la fisiología metabólica, el butirato ejerce funciones como inhibidor de histona deacetilasas (HDAC), induciendo de forma sinérgica la autofagia en los colonocitos y reforzando la barrera de uniones estrechas (tight junctions) mediada por ocludina y claudinas.
Fuentes Culinarias Naturales y la Trehalosa en la Gastronomía de Vanguardia
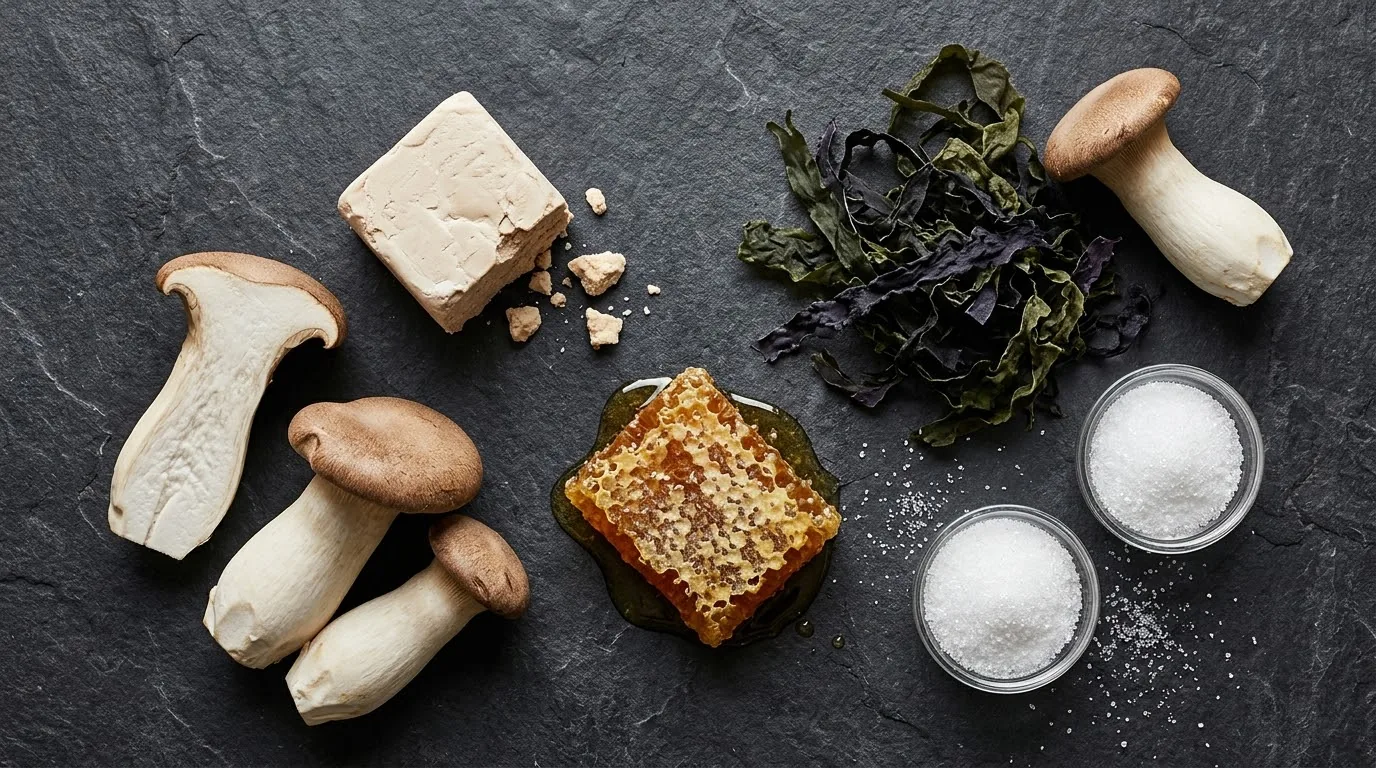
Aunque la industria biotecnológica produce hoy en día trehalosa de pureza cristalina mediante la transglucosidación enzimática de almidones utilizando enzimas bacterianas termoestables (MTSase y MTHase), este compuesto es un componente natural e identitario de diversos pilares culinarios ancestrales. La fuente natural por excelencia son los hongos comestibles. Especies altamente cotizadas como el Shiitake (Lentinula edodes), el Maitake (Grifola frondosa), el Reishi (Ganoderma lucidum) y las setas de ostra (Pleurotus ostreatus) contienen entre un ocho y un veinte por ciento de su peso seco total en forma de trehalosa natural, la cual sintetizan precisamente para resistir periodos de frío y estrés ambiental.
Otro reservorio biológico de suma trascendencia son las levaduras vivas, particularmente Saccharomyces cerevisiae. Los panes de fermentación lenta elaborados con masa madre silvestre, en los que las colonias de levaduras conviven durante decenas de horas con bacterias ácido-lácticas, acumulan concentraciones apreciables de trehalosa endógena sintetizada como respuesta adaptativa al estrés osmótico de la harina y al descenso del pH ambiental. De igual modo, ciertas mieles de abejas nativas sin aguijón (meliponas) y exudados de maná de insectos contienen trehalosa natural como azúcar dominante.
En el terreno de la alta cocina dulce y salada, la trehalosa ha inaugurado una era de perfeccionamiento organoléptico. Su poder edulcorante relativo es de apenas el cuarenta y cinco por ciento respecto a la sacarosa, lo que permite a los maestros pasteleros y cocineros utilizarla para aportar volumen, textura coloidal, depresión del punto de congelación y estabilización de espumas sin empalagar el paladar con dulzor desmedido. Además, su bajísima higroscopicidad previene que los crujientes, tejas deshidratadas y cristales vítreos absorban la humedad del aire ambiente, manteniéndose impecables durante el servicio.
Sinergias Nutracéuticas y Protocolos de Aplicación para la Proteostasis
Para maximizar los efectos metabólicos y la inducción de proteostasis de la trehalosa en el contexto de una nutrición de longevidad, la molécula no debe considerarse como una bala mágica aislada, sino dentro de una red de sinergias moleculares. Una de las combinaciones más potentes descritas en la literatura biomédica es la convergencia de trehalosa con inductores de autofagia dependientes de la depleción de nutrientes, como el polifenol resveratrol o la espermidina (abundante en el germen de trigo, quesos curados y soja fermentada natto). Al combinar la estimulación de TFEB por trehalosa con la activación de SIRT1 mediada por polifenoles, se logra un doble estímulo autofágico que potencia el aclaramiento de cuerpos de inclusión proteicos.
Asimismo, la interacción de la trehalosa con polifenoles del té verde —como el galato de epigalocatequina (EGCG)— ofrece un blindaje termodinámico bifásico contra la agregación de amiloide. Mientras el EGCG se une directamente a los oligómeros inestables redirigiéndolos hacia agregados amorfos no tóxicos, la trehalosa previene la formación inicial de las semillas fibrilares mediante su mecanismo de chaperona osmótica, garantizando que el citosol mantenga su fluidez macromolecular nativa.
En términos de pauta y administración gastronómica, la incorporación gradual de trehalosa (iniciando con tomas de diez a quince gramos disueltas en caldos de setas concentrados o infusiones a temperaturas moderadas) optimiza la tolerancia entérica y asegura una biodisponibilidad continuada. El horizonte de la ciencia culinaria reside en esta convergencia indisoluble: transformar el acto de comer en una intervención bioquímica precisa donde el placer gastronómico y el rigor biomolecular convergen en beneficio de la integridad celular a lo largo del ciclo vital.
Pautas Nutricionales & Recomendaciones Dietéticas
Potenciación sinérgica con setas medicinales: Prepara caldos y emulsiones utilizando hongos Shiitake y Maitake deshidratados; el proceso de rehidratación libera trehalosa nativa junto a beta-glucanos inmunomoduladores.
Sustitución técnica en repostería de precisión: Reemplaza entre un 20% y un 35% de la sacarosa de una preparación por trehalosa para rebajar drásticamente el dulzor libre manteniendo la estabilidad coloidal y la textura vítrea.
Adaptación intestinal escalonada: Inicia el consumo con dosis pequeñas (5 a 10 gramos diarios) para permitir que los niveles de trehalasa en el ribete en cepillo del enterocito se regulen adecuadamente y evitar molestias fermentativas.
Consumo estratégico post-ayuno: Administrar trehalosa tras periodos de ayuno intermitente o ejercicio de resistencia promueve la translocación del factor TFEB al núcleo celular sin sabotear la sensibilidad a la insulina periférica.
Preguntas y Respuestas Frecuentes (10 Claves)
Respuestas a las preguntas y aspectos técnicos más consultados sobre esta investigación gastronómica.
La trehalosa es un disacárido no reductor compuesto por dos moléculas de D-glucosa unidas por un enlace alfa,alfa-1,1-glucosídico. A diferencia de la sacarosa (glucosa + fructosa), carece de carbonos anoméricos libres, lo que le confiere una estabilidad química y térmica muy superior, un dulzor relativo del 45% y la capacidad única de actuar como chaperona química citoprotectora.
Una chaperona química es una molécula que estabiliza la estructura tridimensional de las proteínas sin unirse a ellas de forma covalente. La trehalosa se excluye preferencialmente de la superficie proteica, lo que hace energéticamente costoso que la proteína se despliegue y previene que los parches hidrofóbicos se agreguen de manera tóxica en el citosol.
La trehalosa inhibe transitoriamente los transportadores de glucosa GLUT en la membrana plasmática, simulando un estado de privación energética que induce la migración del factor de transcripción TFEB al núcleo. Esto dispara la biogénesis lisosomal sin inhibir el complejo mTORC1, permitiendo la regeneración celular sin bloquear la síntesis de masa muscular.
No toda. Aunque la trehalasa hidroliza eficientemente la trehalosa en dos glucosas, la capacidad de esta enzima es saturable a partir de consumos moderados (15-25 g). El exceso se absorbe intacto por transporte paracelular alcanzando la sangre, mientras que la fracción restante actúa como un prebiótico formador de butirato en el colon.
Los hongos comestibles y medicinales (Shiitake, Maitake, champiñones, setas de ostra), las levaduras vivas de panadería y masas madre lentas, ciertas algas marinas y mieles de abejas sin aguijón constituyen las fuentes alimentarias naturales más ricas.
Posee un índice glucémico moderado (alrededor de 70), pero debido a que su digestión es más lenta que la de la sacarosa o la maltosa, su curva de respuesta glucémica e insulinémica es más aplanada y prolongada, evitando caídas bruscas de glucosa reactiva.
Permite reducir el dulzor excesivo de las recetas a más de la mitad, inhibe la cristalización no deseada de otros azúcares, retiene agua en masas horneadas evitando que se resequen y mantiene las texturas crujientes intactas gracias a su baja higroscopicidad.
En modelos biomédicos experimentales, la trehalosa ha demostrado atravesar la barrera hematoencefálica y activar el aclaramiento lisosomal de agregados citotóxicos de alfa-sinucleína y fragmentos de poliglutamina, previniendo la neuroinflamación y la muerte de neuronas dopaminérgicas.
Una pequeña fracción de la población presenta deficiencia genética de la enzima trehalasa (trehalasemia), lo que puede generar flatulencias, distensión o diarrea osmótica ante ingestas de hongos o trehalosa pura. En personas sanas, consumos moderados de hasta 30-40 g diarios son perfectamente tolerados.
La trehalosa tolera temperaturas de más de 120-130 °C sin caramelizar prematuramente y no sufre hidrólisis ácida con facilidad. Puede incorporarse a caldos, emulsiones calientes, reducciones y cocciones al vapor sin descomponerse, preservando su potencial estructural y biológico.