En las fronteras de la biología celular y la vanguardia de la nutrición contemporánea, la búsqueda de intervenciones orientadas a preservar la integridad de la matriz extracelular ha situado a los procesos de glicación en el epicentro de la patología degenerativa. El envejecimiento biológico, lejos de ser un mero declive cronológico uniforme, está inexorablemente modulado por la colisión química involuntaria entre azúcares reductores y las cadenas de aminoácidos que constituyen el andamiaje del organismo. En esta encrucijada bioquímica emerge la carnosina, un dipéptido natural con asombrosa capacidad de protección celular, capaz de actuar como un amortiguador endógeno frente al estrés carbonílico y la deformación proteica.
La comprensión de este compuesto nos invita a repensar la interacción entre biodisponibilidad y sinergias moleculares, desarticulando los viejos paradigmas que catalogaban de forma simplista a los alimentos de origen animal sin analizar su origen ni su procesamiento físico-químico. La carne procedente de rumiantes criados en sistemas de pastoreo regenerativo, alimentados de forma estricta con forraje verde y expuestos a densas cargas de fitonutrientes, presenta concentraciones bioactivas de beta-alanil-L-histidina sustancialmente más elevadas que las observadas en animales de ceba intensiva. Esta riqueza peptídica, en convergencia con carotenos y ácidos grasos poliinsaturados equilibrados, articula una matriz molecular idónea para neutralizar los intermediarios reactivos de la reacción de Maillard.
Integrar este conocimiento en una práctica culinaria refinada no exige someterse a regímenes austeros ni a restricciones desvitalizadas, sino domesticar el calor y la humedad con sensibilidad alquímica. Los caldos nobles de larga extracción, las cocciones en medios húmedos a temperaturas controladas y las reducciones aromáticas enriquecidas con ácidos botánicos permiten aprovechar las virtudes de estos dipéptidos minimizando la formación de carboximetil-lisina y otros subproductos tóxicos. La alta gastronomía se convierte de este modo en una herramienta de precisión fisiológica, donde el deleite de la suculencia y la longevidad celular conviven en impecable armonía.
Ficha de Valor Nutricional & Evidencia Científica
Nutrición celular de precisión, gastronomía ancestral y modulación de la senescencia
L-carnosina (beta-alanil-L-histidina), anserina, zinc bivalente biodisponible, péptidos de colágeno, carnitina
Inhibición de la reticulación de colágeno vascular, quelación de iones metálicos prooxidantes y eliminación de carbonilos reactivos
Ensayos in vitro de senescencia endotelial, estudios de cinética metabólica tisular y modelos clínicos de estrés carbonílico (Biochemical Journal, Glycoconjugate Journal)
La Cinética de la Glicación y la Génesis de los AGEs Tisulares
El fenómeno de la glicación no enzimática representa una de las modificaciones postraduccionales más deletéreas para las proteínas de larga vida media en el cuerpo humano. A diferencia de la glicosilación, que es un proceso enzimático altamente orquestado y vital para el reconocimiento celular, la glicación ocurre de forma espontánea a través de la conocida reacción de Maillard endógena. En este escenario, la fracción carbonilo de un azúcar reductor libre —como la glucosa, la fructosa o el galactósido— reacciona nucleofílicamente con el grupo amino no protonado de un residuo proteico, preferentemente lisina o arginina. Esta unión inicial e inestable genera una base de Schiff reversible, la cual experimenta un reordenamiento químico interno hacia una forma cetoamina más estable denominada producto de Amadori.
Con el transcurso de las semanas, los productos de Amadori sufren una intrincada cascada de deshidrataciones, condensaciones y fragmentaciones oxidativas conocida colectivamente como glucoxidación. Este laberinto bioquímico da origen a los denominados productos avanzados de la glicación o AGEs (Advanced Glycation End-products). Entre ellos, la N-epsilon-carboximetil-lisina (CML), la pentosidina y la metilglioxal-hidroimidazolona destacan por su capacidad para alterar de manera irreversible la conformación tridimensional de proteínas estructurales como el colágeno tipo I y III, la elastina y la laminina, transformando tejidos maleables y flexibles en redes rígidas, quebradizas y propensas al fallo mecánico.
El impacto de los AGEs no concluye en la mera distorsión biofísica de las matrices de soporte tisular. Al anclarse al receptor específico de superficie denominado RAGE (Receptor for Advanced Glycation End-products), estos compuestos desencadenan una cascada de señalización intracelular sostenida mediada por el factor de transcripción NF-kappa-B. Esto estimula la síntesis de citoquinas proinflamatorias como el TNF-alfa y la interleucina-6, promoviendo a su vez la hiperproducción mitocondrial de especies reactivas de oxígeno. Este ciclo vicioso de estrés carbonílico y oxidativo perpetúa un microambiente de senescencia acelerada en el endotelio vascular, los glomérulos renales y las estructuras neuronales centrales.
Comprender la diferencia crítica entre los AGEs endógenos (generados in vivo por hiperglucemia y estrés oxidativo) y los AGEs exógenos (formados térmicamente en los alimentos durante cocciones agresivas) es fundamental para la nutrición de precisión. Aunque una fracción sustancial de los AGEs dietéticos es degradada por la acidez gástrica y las enzimas luminales, entre un 10% y un 30% es absorbido hacia el torrente circulatorio sistémico mediante difusión pasiva o transporte paracelular. Una vez en el plasma, estos péptidos glicados exógenos saturan la capacidad de depuración renal e interactúan con los receptores RAGE sistémicos, exacerbando la carga inflamatoria global y la rigidez arterial del huésped.
Anatomía Molecular de la Carnosina y su Sinergia con la Anserina
Identificada originalmente a finales del siglo XIX por el químico ruso Vladimir Gulevich, la L-carnosina es un dipéptido sintetizado a partir de beta-alanina y L-histidina mediante la enzima carnosina sintasa (CARNS1), en una reacción que demanda hidrólisis directa de ATP. Su distribución biológica está primariamente confinada a tejidos metabólica y mecánicamente activos que experimentan fluctuaciones masivas de pH y estrés oxidativo, tales como el músculo esquelético, el miocardio y la corteza cerebral. La estructura singular de este dipéptido le confiere propiedades químicas anfipáticas que lo desmarcan de cualquier otro péptido simple del organismo.
El anillo imidazólico presente en el residuo de histidina de la carnosina posee un pKa cercano a 6.83 a temperatura fisiológica, lo que le otorga una capacidad inigualable para amortiguar protones hidrogeniónicos en el citosol celular durante episodios de glicólisis anaerobia. No obstante, más allá de este rol como buffer de pH, la carnosina exhibe un grupo amino terminal en la beta-alanina excepcionalmente reactivo frente a los carbonilos electrofílicos. Esta disposición espacial permite que el dipéptido actúe como un cebo nucleofílico sacrificial, atrayendo y reaccionando ávidamente con aldehídos reactivos como el metilglioxal, el glioxal y el malondialdehído antes de que estos logren unirse a las proteínas funcionales del citoplasma.
Estrechamente ligada a la carnosina encontramos a la anserina (beta-alanil-N-metilhistidina), un análogo metilado que abunda particularmente en el tejido musculoesquelético de aves y salmónidos, pero que también coexiste en cantidades apreciables en mamíferos ungulados. La metilación del anillo imidazol en la anserina confiere a este dipéptido una resistencia superior frente a la degradación enzimática por parte de la carnosinasa sérica humana (CN1). Al operar conjuntamente en la matriz de la carne y el caldo noble, carnosina y anserina forman un escudo dual: mientras la carnosina ofrece una velocidad de reacción kinetica inmediata contra el estrés oxidativo, la anserina asegura una semivida biológica prolongada en los fluidos biológicos tras su asimilación luminal.
Asimismo, la carnosina ejerce un papel decisivo en la quelación de metales de transición divalentes como el cobre (Cu2+) y el hierro (Fe2+). En condiciones patológicas o tras daños tisulares, estos iones libres catalizan la reacción de Fenton, acelerando exponencialmente la fragmentación de hidroperóxidos lipídicos y la consecuente formación de AGEs y ALEs (Advanced Lipoxidation End-products). Al formar complejos organometálicos coordinados y termodinámicamente estables con estos iones, la carnosina previene la catálisis oxidativa sin privar a las células de los oligoelementos que requieren para sus metaloenzimas esenciales.
El Mecanismo de Carnosinilación e Inhibición de la Reticulación
El mecanismo de defensa celular mediado por la carnosina alcanza su máxima sofisticación mediante el proceso bioquímico denominado carnosinilación. Cuando los azúcares reductores inician el ataque nucleofílico, la carnosina no se limita a interceptar pasivamente los metabolitos libres, sino que interactúa directamente con los intermediarios tempranos de Amadori. Al donar su grupo amino primario de beta-alanina a los grupos carbonilo expuestos de las proteínas en proceso de glicación, la carnosina forma aductos estables inocuos llamados proteínas carnosiniladas. Este bloqueo estequiométrico cancela irreversiblemente la ruta metabólica que conduce a la condensación secundaria.
La consecuencia estructural más crítica de la glicación avanzada es el establecimiento de puentes cruzados covalentes entre fibras proteicas adyacentes, fenómeno conocido como reticulación intermolecular. En la aorta y en las arterias de conducción media, este entrecruzamiento de elastina y colágeno suprime la compliance hemodinámica, forzando al ventrículo izquierdo a trabajar contra una resistencia periférica incrementada. La carnosina actúa como un espaciador molecular estéreo-específico: al ocupar los sitios activos donde los intermediarios dicarbonílicos intentarían fusionar dos cadenas polipeptídicas contiguas, impide físicamente la rigidificación de la matriz elástica.
Investigaciones pioneras en gerontología celular han demostrado que la carnosina no solo ejerce una acción preventiva, sino que también estimula la regeneración molecular indirecta. Las proteínas marcadas con aductos de carnosina son reconocidas selectivamente por los sistemas enzimáticos celulares encargados del control de calidad proteico, en particular el sistema ubiquitina-proteasoma y los receptores chaperonados de autofagia lisosomal. De este modo, la carnosinilación actúa como una etiqueta biológica de eliminación preferente, acelerando la lisis y el reciclaje de fragmentos celulares deteriorados antes de que agreguen en placas citotóxicas insolubles.
Este mecanismo de protección se extiende con idéntico rigor al tejido cerebral y periférico. En las neuronas corticales, las proteínas del citoesqueleto como la tubulina y las proteínas asociadas a microtúbulos (MAPs) son extremadamente vulnerables al metilglioxal. La presencia intracelular sostenida de carnosina protege los axones neuronales de la disfunción sináptica inducida por glicación, preservando la plasticidad dendrítica y mitigando el declive cognitivo derivado de la microangiopatía cerebral senil.
Terruño, Manejo Regenerativo y Perfil Bioquímico de la Carne
La densidad biológica de dipéptidos de histidina en el tejido muscular no es un parámetro estático ni biológicamente inmutable; responde de forma directa a la fisiología del animal, su nivel de estrés oxidativo sistémico y, por encima de todo, su régimen nutricional. Los rumiantes criados bajo modelos de pastoreo regenerativo estricto —aquellos que consumen exclusivamente pastos polifíticos, leguminosas autóctonas y forrajes fibrosos— muestran adaptaciones metabólicas sustanciales en comparación con ejemplares confinados en cebaderos de alta densidad alimentados con concentrados de cereales y tortas de soja.
El pastoreo dinámico y el movimiento continuo sobre praderas abiertas inducen un perfil de contracción muscular predominantemente aeróbico y oxidativo, enriqueciendo las fibras musculares de contracción lenta (tipo I) y contracción intermedia (tipo IIa) con una alta densidad mitocondrial y una dotación enzimática superior de carnosina sintasa. Paralelamente, la botánica diversa que compone la pradera natural aporta una inmensa gama de fitoquímicos secundarios —como flavonoides, terpenos, estilbenos y carotenoides— que actúan como antioxidantes de primera línea en los tejidos vivos del herbívoro. Esta formidable batería botánica absorbe el estrés oxidativo basal en el animal, permitiendo que el pool de dipéptidos de histidina permanezca virgen, sin oxidarse prematuramente durante la vida del ganado.
La carne procedente de estos ecosistemas exhibe simultáneamente una concentración óptima de alfa-tocoferol natural y una proporción de ácidos grasos omega-6 y omega-3 cercana a 2:1 o 3:1, en radical contraste con el desbalance de 15:1 a 20:1 habitual en sistemas industriales. Esta composición lipídica protege las membranas sarcolémicas durante las fases post-mortem de maduración en seco (dry aging), evitando que la peroxidación lipídica genere aldehídos endógenos que reaccionarían degradando la propia carnosina tisular antes de llegar al fuego culinario. Al seleccionar carne de animales respetuosos con su ciclo natural, el consumidor adquiere una matriz nutritiva viva y bioquímicamente intacta.
Para comprender en profundidad cómo la estacionalidad del forraje y el origen del ecosistema rural determinan estas sinergias moleculares, resulta iluminador analizar la ciencia del producto de temporada, donde las leyes físico-químicas de frescura dictan la concentración final de compuestos protectores tanto en reinos vegetales como animales.
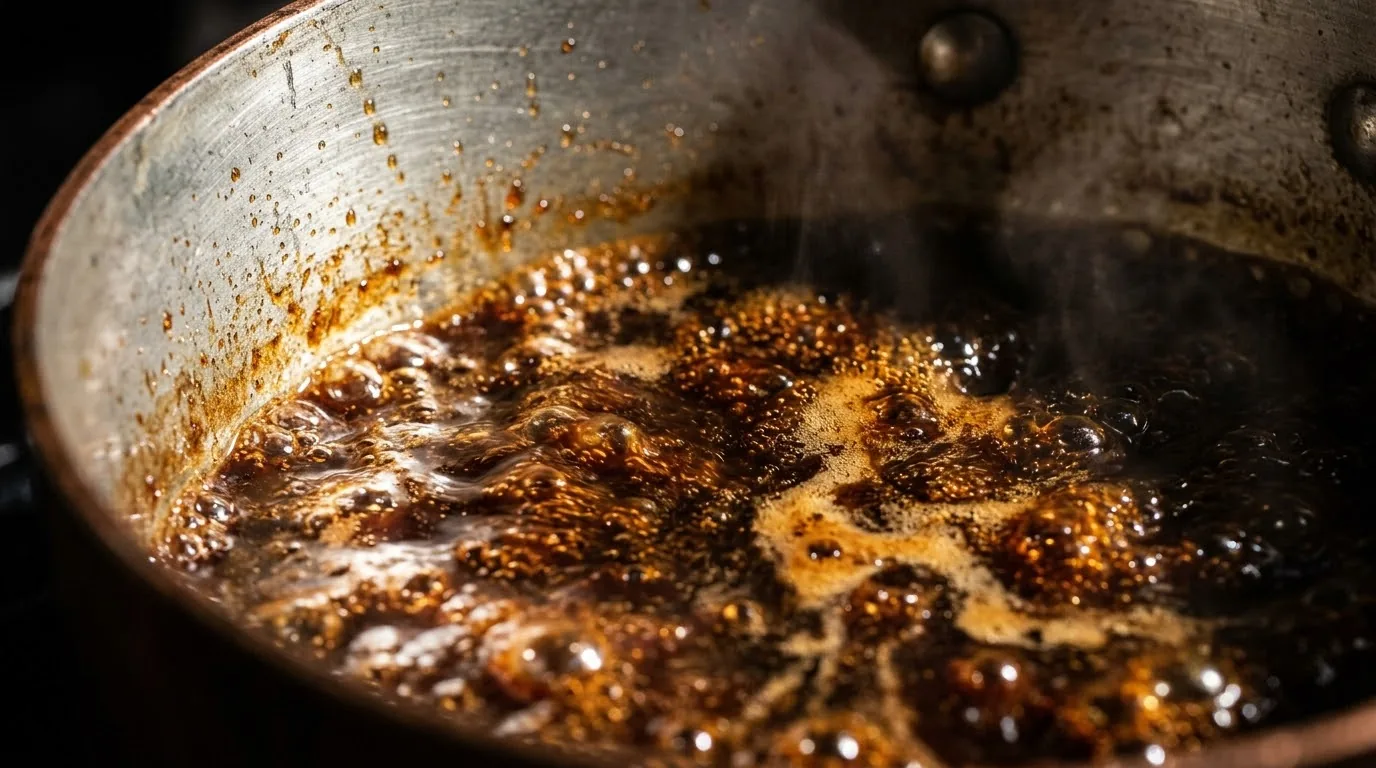
Termodinámica Culinaria: Reacción de Maillard Controlada vs. AGEs Tóxicos
Desde una perspectiva puramente gastronómica, la reacción de Maillard es venerada universalmente como el Santo Grial del sabor, responsable de la complejidad organoléptica de las costras tostadas, los aromas cárnicos profundos y las notas tostadas que seducen al paladar humano. Sin embargo, desde la óptica de la toxicología molecular, existe una línea tenue y decisiva entre los productos volátiles deseables del pardeamiento no enzimático (como pirazinas, furanos y tioles) y la síntesis masiva de AGEs dietéticos tóxicos y aminas heterocíclicas aromáticas.
La formación descontrolada de carboximetil-lisina (CML) y acrilamidas requiere condiciones termodinámicas concretas: calor seco extremo (superior a 170 °C–180 °C), bajo contenido hídrico superficial y tiempos de exposición prolongados, como ocurre en el asado a la parrilla de carbón desprotegido, la fritura por inmersión o el horneado con aire forzado deshidratante. A tales temperaturas, la energía de activación para la polimerización y glicación avanzada se desploma, transformando las proteínas superficiales en entramados densos e indigeribles que sobrecargan la mucosa intestinal y elevan la concentración sérica de carbonilos reactivos tras la ingesta.
Frente a este dilema, la alta gastronomía aplica el principio de la humedad termodinámica compensatoria. Cuando el calor se transmite a través de un medio acuoso o vapor saturado —como en el estofado a fuego lento, la cocción a baja temperatura en atmósfera húmeda (sous-vide) o el pochado noble— la temperatura del sistema físico no puede exceder el punto de ebullición del agua (100 °C a nivel del mar). En este rango térmico (80 °C a 95 °C), la formación de AGEs dietéticos se reduce en más de un 80% respecto a los métodos de calor seco, mientras que la extracción y estabilidad hidrosoluble de la carnosina y la anserina alcanzan su cúspide termodinámica.
Si se desea obtener un ligero tostado por motivos sensoriales, la técnica de choque rápido de alta precisión representa la solución biológica idónea: un marcado exterior en sartén de hierro forjado a 160 °C durante menos de 60 segundos por cara, seguido de una cocción interna a baja temperatura controlada por sonda térmica central. Este abordaje genera las notas aromáticas indispensables sin permitir que la onda térmica profunda calcine las proteínas miofibrilares ni colapse el fondo bioactivo de dipéptidos del corte cárnico.
La Alquimia de los Caldos Nobles: Extracción y Preservación de Péptidos
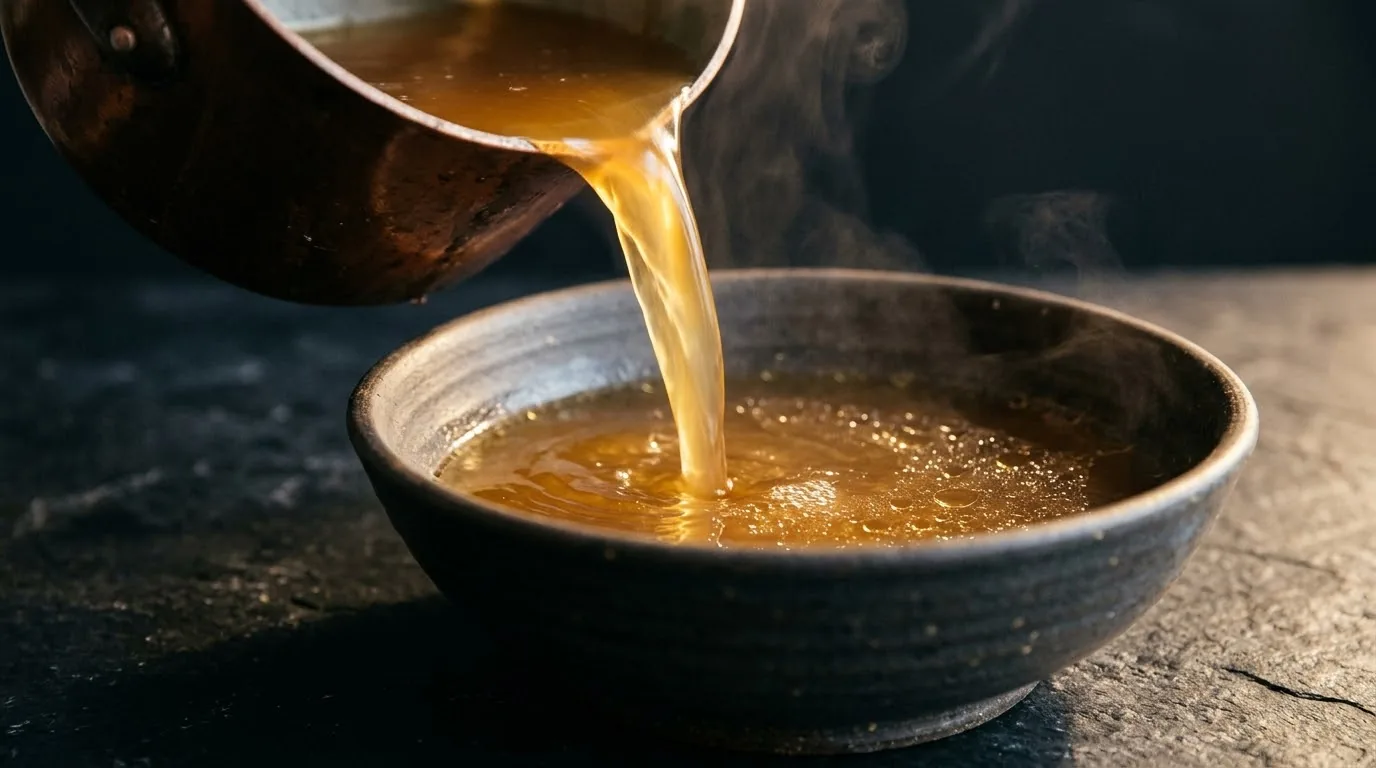
El caldo noble, lejos de ser un simple desecho líquido o un subproducto culinario de conveniencia, constituye la preparación fundacional donde convergen la sabiduría gastronómica tradicional y la biofísica molecular más refinada. Al someter huesos con restos musculares, articulaciones ricas en tendones, tuétano y recortes magros a una extracción hídrica prolongada a temperatura sub-ebullición (habitualmente entre 85 °C y 92 °C), se desata un fenómeno de lixiviación controlada extraordinario.
Durante las primeras cuatro a ocho horas de cocción suave, las proteínas insolubles del tejido conectivo, primordialmente el tropocolágeno de triple hélice, sufren una desnaturalización térmica progresiva. Los enlaces de hidrógeno intermoleculares e intramoleculares se disocian, liberando cadenas polipeptídicas individuales de gelatina que se disuelven en la fase acuosa. Simultáneamente, el músculo estriado adherido libera su contenido de aminoácidos libres y dipéptidos citosólicos: la carnosina y la anserina, por su acusada polaridad y bajo peso molecular, migran con total presteza hacia el medio líquido, convirtiendo al caldo en un auténtico elixir coloidal cargado de péptidos bioactivos.
El secreto bioquímico para salvaguardar la pureza funcional de estos compuestos reside en el estricto control cinético de la temperatura. Si el caldo se somete a una ebullición violenta (100 °C tumultuosos), ocurren dos fenómenos perniciosos: en primer lugar, las grasas emulsionan mecánicamente con los residuos proteicos insolubles, confiriendo un aspecto lechoso y acelerando la termooxidación de los lípidos con formación de hidroperóxidos; en segundo lugar, se induce la degradación hidrolítica parcial del dipéptido carnosina en sus aminoácidos constitutivos (beta-alanina e histidina libre), perdiendo su conformación espacial quelante de metales pesados.
El proceso de clarificación clásica mediante balsa de claras de huevo y carne picada magra magra (raft) aporta un beneficio adicional insospechado: no solo retira mecánicamente las micropartículas en suspensión para lograr una transparencia de gema preciosa, sino que las albúminas del huevo actúan absorbiendo taninos oxidados y productos tempranos de glicación coloidales, puliendo la fase acuosa hasta dejar un extracto nítido dominado por péptidos de colágeno hidrolizado y carnosina libre de interferencias macromoleculares.
Sinergias Botánicas y Ácidas: La Tríada Protectora en la Mesa
La cocina de autor concebida bajo el prisma de la longevidad no depende de un compuesto aislado, sino del diseño deliberado de sinergias moleculares que potencien la actividad endógena de los nutrientes. En el escenario de la antiglicación, la carnosina encuentra sus aliados biológicos más formidables en los metabolitos secundarios del reino vegetal, específicamente en los ácidos orgánicos volátiles y los polifenoles aromáticos.
El empleo juicioso de elementos botánicos ácidos durante la elaboración del caldo o el marinado preliminar de la carne ejerce un efecto protector dual. Ácidos orgánicos como el ácido tartárico (presente en reducciones de vino blanco noble), el ácido málico (derivado del vinagre de manzana sin filtrar) o el ácido cítrico rebajan el pH del medio de cocción hacia valores de 4.5 a 5.2. En este umbral de acidez controlada, los grupos amino de la lisina y de la beta-alanina se encuentran mayoritariamente protonados (-NH3+), lo que impide que actúen como nucleófilos frente a los azúcares reductores. De esta forma, la adición de una base ácida frena en seco la síntesis de AGEs en la propia cazuela hasta en un 70%.
A este escudo protónico se suma el papel de las hierbas aromáticas leñosas de la cuenca mediterránea: romero (Rosmarinus officinalis), salvia (Salvia officinalis), tomillo (Thymus vulgaris) y laurel (Laurus nobilis). Estas plantas son extraordinariamente ricas en compuestos fenólicos diterpénicos como el ácido carnósico, el carnosol y el ácido rosmarínico. Es una fascinante coincidencia evolutiva que la planta de romero concentre ácido carnósico mientras el tejido animal acumule carnosina: aunque sus estructuras químicas difieren radicalmente, operan con una complementariedad sinérgica asombrosa. Los polifenoles vegetales barren los radicales libres lipídicos en la fase oleosa del caldo, mientras que la carnosina neutraliza los metabolitos carbonílicos en la fase hidrosoluble.
La integración final de este ecosistema culinario concluye con la presencia de especias ricas en aldehídos inocuos que compiten por los receptores diana, tales como el cinamaldehído de la canela verdadera o el eugenol del clavo de olor. Al sentarse a degustar un consomé clarificado enriquecido con estas esencias y servido a temperatura de confort, no solo se deleita el sentido del olfato con un bouquet estratificado de inmensa nobleza, sino que se suministra al organismo un complejo farmacológico gastronómico capaz de salvaguardar la juventud elástica de las arterias, revitalizar la matriz tisular y prolongar la lozanía de la vida celular.
Pautas Nutricionales & Recomendaciones Dietéticas
Inoculación ácida preventiva: Marinar cortes de carne durante 30 a 60 minutos con vinagre de manzana o zumo de cítricos antes de cualquier toque térmico reduce la síntesis de AGEs en más del 50%.
El punto de ebullición como límite: En caldos y estofados, mantén el líquido en un estremecimiento sutil (88 °C a 92 °C), evitando el borbotón tumultuoso que fragmenta la carnosina y emulsiona grasas no deseadas.
Sinergia con romero y tomillo: Incorpora ramilletes frescos atados en el último tercio de la cocción lenta; sus diterpenos protegen a los dipéptidos de la oxidación y enriquecen la biodisponibilidad tisular.
Cortes procedentes de pasto regenerativo: Prioriza cortes musculares con actividad biomecánica real (como el jarrete, morcillo o falda) de animales criados a pasto, donde la carnosina sintasa ha acumulado reservas óptimas.
Preguntas y Respuestas Frecuentes (10 Claves)
Respuestas a las preguntas y aspectos técnicos más consultados sobre esta investigación gastronómica.
A nivel estructural son idénticas (beta-alanil-L-histidina). Sin embargo, la carnosina ingerida a través de la carne y los caldos se somete a la acción de la carnosinasa sérica en la mucosa intestinal y el torrente sanguíneo, la cual escinde parte del dipéptido en sus aminoácidos originales. No obstante, una fracción bioactiva logra atravesar intacta en forma de pequeños péptidos vía el transportador PEPT1, aportando protección directa y suministrando precursores directos en tejidos diana.
Los animales criados en pastoreo realizan mayor ejercicio muscular cotidiano y consumen forrajes ricos en antioxidantes naturales. Este estilo de vida induce una mayor densidad mitocondrial, un metabolismo dependiente de fibras oxidativas y una menor carga basal de estrés oxidativo interno, lo cual preserva intactas las reservas tisulares de carnosina sintasa y reduce el consumo sacrificial del dipéptido.
No necesariamente. La reacción de Maillard produce compuestos aromáticos maravillosos y seguros en fases iniciales. El peligro radica en el exceso térmico prolongado y en seco (>180 °C), que deriva en productos avanzados de glicación irreversibles como la carboximetil-lisina (CML). Con marcados breves a temperatura controlada y acabados en humedad, se obtiene placer gastronómico sin toxicidad carbonílica.
El tiempo idóneo para extraer colágeno y dipéptidos de histidina preservando su conformación oscila entre 8 y 14 horas a temperatura sub-ebullición (88 °C a 92 °C). Superar las 24 horas a temperaturas elevadas o hervir con fuerza descompone paulatinamente los dipéptidos libres en aminoácidos individuales y genera un amargor oxidativo.
Sí, la evidencia científica documenta que las personas con dietas estrictamente vegetales poseen entre un 30% y un 50% menos de carnosina intramuscular respecto a individuos omnívoros, ya que este dipéptido no existe en el reino vegetal. Para compensarlo, pueden suplementarse con beta-alanina pura, aminoácido limitante en la síntesis endógena de carnosina.
El descenso del pH hacia valores entre 4.5 y 5.2 induce la protonación de los grupos amino en los residuos de lisina y arginina. Químicamente, un grupo amino protonado pierde su capacidad nucleofílica para atacar a los azúcares reductores, lo que frena drásticamente la formación de AGEs durante la extracción culinaria.
Revertir los entrecruzamientos de AGEs ya establecidos en el colágeno maduro es sumamente complejo debido a la naturaleza covalente de sus enlaces. Aunque existen moléculas en investigación clínica denominadas 'rompedores de AGEs' (como el ALT-711), la carnosina destaca primariamente por bloquear su génesis inicial y acelerar la eliminación de proteínas intermediarias carnosiniladas mediante autofagia.
El añadido de azúcares refinados, miel o jarabes concentrados a carnes destinadas a asarse o freírse dispara la reacción de Maillard destructiva de manera exponencial. La fructosa y la glucosa libres a fuego directo incrementan la síntesis de AGEs hasta en un 200%, por lo que en cocina saludable de precisión se prefieren reducciones puras a fuego lento con caldos nobles y vino desalcoholizado.
Efectivamente. En escenarios de sobrecarga glucémica transitoria, los niveles circulantes de metilglioxal y glucosa reactiva se elevan. La carnosina actúa atrapando estos intermediarios dicarbonílicos en el plasma, reduciendo su impacto inflamatorio sobre las células beta del páncreas y el endotelio microvascular glomerular.
Ofrecen una alianza perfecta: los péptidos de colágeno (glicina, prolina e hidroxiprolina) aportan el sustrato mecánico para la renovación y reparación estructural del endotelio y la mucosa digestiva, mientras que la carnosina previene que esas nuevas proteínas recién sintetizadas se giquen y se rigidicen por culpa del estrés oxidativo circundante.