En el fascinante cosmos de la bioquímica nutricional y la geroprotección, pocos compuestos han suscitado tanta admiración científica como los estilbenos, una selecta clase de polifenoles no flavonoides que las plantas sintetizan como fitoalexinas de defensa frente a agresiones fúngicas, radiación ultravioleta y estrés ambiental. Durante más de tres décadas, el resveratrol (trans-3,5,4'-trihidroxiestilbeno) acaparó las portadas de la literatura médica como la molécula arquetípica de la 'paradoja francesa', elogiado por su capacidad intrínseca para mimetizar los efectos biológicos de la restricción calórica y activar vías epigenéticas de longevidad celular. Sin embargo, la investigación contemporánea ha desvelado que la biodisponibilidad del resveratrol tradicional se encuentra severamente limitada por un metabolismo hepático de fase II implacable, el cual conjuga y depura la molécula con tal celeridad que apenas una fracción diminuta alcanza el torrente circulatorio en forma libre e inalterada.
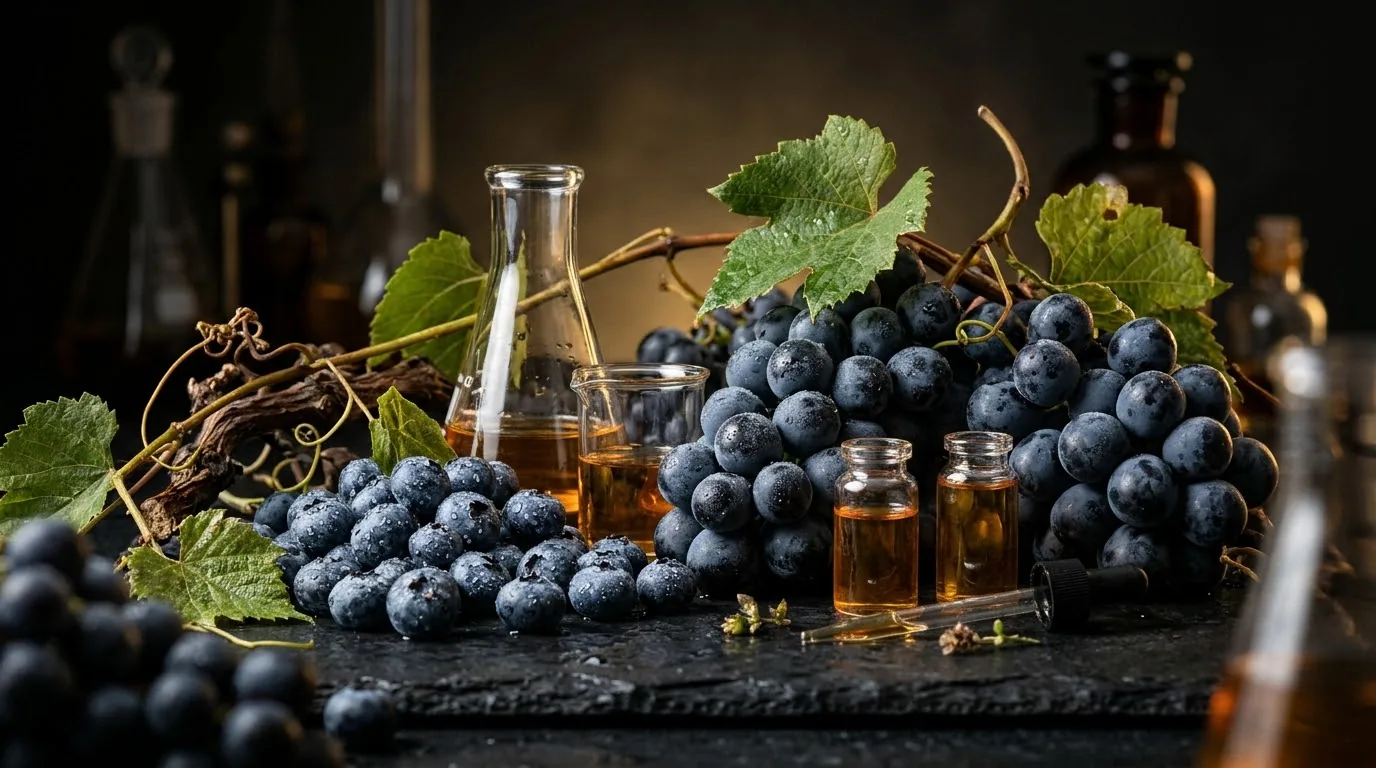
Es en este horizonte de alta precisión molecular donde emerge con fuerza disruptiva su análogo dimetilado: el pterostilbeno (trans-3,5-dimetoxi-4'-hidroxiestilbeno). Presente de forma natural en bayas silvestres como los arándanos oscuros (Vaccinium angustifolium) y en el duramen de maderas milenarias como Pterocarpus marsupium, el pterostilbeno exhibe una alteración arquitectónica sutil pero trascendental: dos de los tres grupos hidroxilo presentes en el resveratrol han sido sustituidos por grupos metoxilo (-OCH3). Esta modificación bioquímica confiere a la molécula un carácter significativamente más lipófilo, incrementando exponencialmente su permeabilidad a través de las membranas celulares, optimizando drásticamente su absorción entérica y otorgándole una semivida plasmática hasta siete veces superior a la de su predecesor.
Comprender la complementariedad y la sinergia molecular entre el resveratrol y el pterostilbeno representa uno de los mayores hitos de la nutrición aplicada y la medicina culinaria de vanguardia. Lejos de concebirlos como suplementos aislados o dogmas reduccionistas, el gastrónomo ilustrado y el investigador descubren que la modulación de las desacetilasas dependientes de NAD+ (sirtuinas) y la orquestación de la resistencia al estrés oxidativo dependen de una matriz bioactiva holística. En este tratado enciclopédico desgranaremos las propiedades fisicoquímicas, las dianas celulares, las sinergias moleculares y las estrategias culinarias de co-administración lipídica para liberar el potencial genómico de estas fitoalexinas prodigiosas.
Ficha de Valor Nutricional & Evidencia Científica
Nutrición celular avanzada, miméticos de restricción calórica y modulación epigenética
Pterostilbeno (trans-3,5-dimetoxi-4'-hidroxiestilbeno), Resveratrol (trans-3,5,4'-trihidroxiestilbeno), antocianinas, lípidos monoinsaturados vehiculizantes
Activación de la desacetilasa SIRT1, fosforilación de AMPK, inducción de biogénesis mitocondrial vía PGC-1α y neutralización de especies reactivas de oxígeno (ROS)
Ensayos clínicos en farmacocinética comparativa, estudios moleculares de unión alostérica y modelos de restricción calórica del Buck Institute y Harvard Medical School
Arquitectura Molecular y la Revolución de la Metilación Lipófila
Para desentrañar la superioridad biológica de los estilbenos metilados es imperativo profundizar en la estereoquímica fundamental de estas moléculas defensivas vegetales. El resveratrol (trans-3,5,4'-trihidroxiestilbeno) posee una estructura basada en dos anillos aromáticos unidos por un puente etileno central, decorada con tres grupos hidroxilo (-OH) situados en las posiciones carbonadas 3, 5 y 4'. Aunque estos grupos polares le otorgan una capacidad antioxidante directa respetable mediante la donación de electrones e iones hidrógeno a radicales libres hidroxilo y peroxilo, constituyen simultáneamente su mayor talón de Aquiles farmacocinético. En el enterocito humano y el hepatocito, la enzima UDP-glucuronosiltransferasa (UGT) y la sulfotransferasa (SULT) reconocen estos grupos hidroxilo libres con una afinidad extrema, catalizando una glucuronidación y sulfatación casi instantáneas que transforman la molécula activa en metabolitos hidrosolubles inactivos biológicamente.
Por el contrario, el pterostilbeno (trans-3,5-dimetoxi-4'-hidroxiestilbeno) resuelve de manera magistral esta vulnerabilidad estructural gracias a la sustitución estratégica de los grupos hidroxilo de las posiciones 3 y 5 por grupos metoxilo (-OCH3), preservando únicamente el grupo hidroxilo 4' reactivo. Esta sutil modificación produce un doble impacto molecular decisivo: por una parte, eleva el coeficiente de reparto octanol-agua (LogP), transformando la molécula en un compuesto notablemente más lipófilo que atraviesa las bicapas lipídicas de la mucosa intestinal y la barrera hematoencefálica con una fluidez pasiva extraordinaria; por otra parte, al poseer únicamente un grupo fenólilco libre para la conjugación de fase II, su tasa de aclaramiento metabólico se reduce de forma espectacular, evitando el rápido catabolismo hepático.
Estudios farmacocinéticos comparativos rigurosos han demostrado que la biodisponibilidad oral del pterostilbeno alcanza aproximadamente un 80%, contrastando de manera abrumadora con el modesto 15-20% reportado para el trans-resveratrol en dosis equiparables. Asimismo, la semivida de eliminación plasmática (t1/2) del pterostilbeno oscila entre los 96 y 120 minutos, frente a los efímeros 14 a 16 minutos del resveratrol nativo. Esta persistencia sostenida en el compartimento vascular y tisular permite concentraciones biológicamente activas en órganos diana clave como el miocardio, el tejido neuronal y el endotelio vascular, transformando a este estilbeno metilado en el verdadero mascarón de proa de la gerociencia moderna.
El Eje Sirtuinas-AMPK y la Mimética de la Restricción Calórica
El mecanismo de acción primordial a través del cual los estilbenos modulan la homeostasis celular radica en la activación alostérica de SIRT1, una desacetilasa de histonas dependiente de nicotinamida adenina dinucleótido (NAD+) conservada evolutivamente a lo largo de todo el reino eucariota. En condiciones basales de abundancia energética, la actividad de SIRT1 permanece amortiguada por la baja disponibilidad de NAD+ en relación con el NADH reducido. Sin embargo, tanto el resveratrol como el pterostilbeno actúan como moduladores alostéricos positivos, insertándose en un bolsillo hidrofóbico específico situado en el dominio N-terminal de SIRT1, lo que incrementa notablemente la afinidad de la enzima hacia sus sustratos peptídicos acetilados nativos.
La activación de SIRT1 desencadena una cascada de desacetilaciones epigenéticas sobre dianas transcripcionales maestras, destacando de forma paradigmática el coactivador gamma del receptor activado por el proliferador de peroxisomas 1-alfa (PGC-1α). Al perder sus residuos acetilo represores, PGC-1α se transloca activamente al núcleo celular, donde orquesta la transcripción de genes nucleares que codifican para subunidades de la cadena de transporte electrónico y activa el factor de transcripción mitocondrial A (TFAM). El resultado fenotípico de este proceso es la biogénesis mitocondrial, reemplazando organelos envejecidos y permeabilizados por una red mitocondrial hiperfuncional, metabólicamente eficiente y con mínima producción de especies reactivas de oxígeno colaterales.
De manera paralela y recíproca, estos estilbenos estimulan la fosforilación de la proteína quinasa activada por AMP (AMPK), el sensor energético supremo de la célula eucariota. Al inhibir competitivamente la ATP sintasa mitocondrial o las fosfodiesterasas celulares de AMP cíclico (cAMP), el resveratrol y el pterostilbeno generan un leve incremento en la relación AMP/ATP intracelular. Este cambio conformacional activa la quinasa LKB1, la cual fosforila el residuo Treonina-172 de la subunidad catalítica alfa de AMPK. La activación concomitante de AMPK y SIRT1 genera un circuito de retroalimentación positivo virtuoso: AMPK incrementa los niveles celulares de NAD+ mediante la fosforilación de la enzima NAMPT, potenciando aún más la actividad desacetilasa de SIRT1 y coordinando la inhibición del complejo mTORC1 para inducir procesos catabólicos depurativos de autofagia celular.
Resistencia al Estrés Oxidativo y la Vía Keap1-Nrf2-ARE
Aunque la literatura divulgativa suele ensalzar a los polifenoles como meros 'atrapadores químicos de radicales libres' (scavengers estequiométricos), el verdadero poder antioxidante del pterostilbeno y del resveratrol reside en su capacidad para inducir respuestas celulares adaptativas a través del concepto biológico de la hormesis nutricional. Más que neutralizar los radicales de uno en uno en el medio extracelular, estas fitoalexinas interactúan a nivel micromolar con los sensores redox celulares, promoviendo la transcripción coordinada de las defensas enzimáticas endógenas primarias a través de la vía Keap1-Nrf2-ARE.
Bajo condiciones homeostáticas no estresadas, el factor de transcripción nuclear eritroide 2 relacionado con el factor 2 (Nrf2) se encuentra secuestrado en el citoplasma por un dímero de la proteína represora Keap1, la cual funciona como una subunidad adaptadora para un complejo de ubiquitina ligasa E3 basado en Cullin-3, dirigiendo a Nrf2 hacia una degradación proteasomal continua. El pterostilbeno y el resveratrol, gracias a su carácter electrófilo sutil y su capacidad para generar transitorios oxidativos controlados, modifican covalentemente residuos de cisteína específicos en Keap1 (notablemente Cys151, Cys273 y Cys288). Esta modificación conformacional altera la ubiquitinación de Nrf2, provocando su estabilización citoplasmática y su subsecuente translocación al núcleo celular.
Una vez en el núcleo, Nrf2 se heterodimeriza con pequeñas proteínas Maf y se une con altísima afinidad a secuencias nucleotídicas conservadas denominadas Elementos de Respuesta Antioxidante (ARE, por sus siglas en inglés) situadas en los promotores de decenas de genes citoprotectores. Esto culmina en una síntesis masiva y coordinada de enzimas desintoxicantes y antioxidantes de Fase II: superóxido dismutasa citosólica y mitocondrial (SOD1 y SOD2), catalasa (CAT), glutatión peroxidasa-1 (GPx1), hemo oxigenasa-1 (HO-1) y las enzimas limitantes de la síntesis de glutatión como la glutamato-cisteína ligasa (GCLC/GCLM). Esta reprogramación genómica dota a la célula de un escudo endógeno infinitamente más potente y duradero que cualquier antioxidante químico pasivo.
Neuroprotección, Plasticidad Sináptica y Barrera Hematoencefálica
El sistema nervioso central, caracterizado por su elevadísima tasa metabólica de consumo de oxígeno, su riqueza en lípidos poliinsaturados fácilmente oxidables y su densidad modesta de enzimas antioxidantes endógenas basales, representa un tejido particularmente vulnerable a la senescencia y la lipoperoxidación. En este contexto neurodegenerativo, el pterostilbeno brilla con luz propia frente a todos los demás polifenoles dietéticos conocidos, debido a su coeficiente de partición lipófilo que le otorga una capacidad inigualable para atravesar con solvencia la barrera hematoencefálica (BHE) y acumularse funcionalmente en el parénquima cerebral, el córtex prefrontal y el hipocampo.
En modelos neurofisiológicos de deterioro cognitivo y toxicidad proteica, el pterostilbeno ha acreditado una inhibición contundente de la neuroinflamación mediada por la microglía. Actúa bloqueando la translocación del factor nuclear kappa B (NF-κB) y la consiguiente activación del inflamasoma NLRP3, suprimiendo la liberación patológica de interleucinas proinflamatorias como la IL-1β, la IL-6 y el factor de necrosis tumoral alfa (TNF-α). Esta desinflamación selectiva preserva la arquitectura dendrítica y mitiga la degradación de proteínas de unión estrecha (tight junctions) endoteliales como la claudina-5 y la ocludina, manteniendo la impermeabilidad fisiológica de la microvasculatura cerebral.
Simultáneamente, los estilbenos promueven la plasticidad sináptica dependiente de la actividad neuronal mediante la regulación al alza del Factor Neurotrófico Derivado del Cerebro (BDNF) y la activación de la vía de señalización TrkB/Akt/CREB en las neuronas del giro dentado del hipocampo. Esta cascada molecular facilita la potenciación a largo plazo (LTP), el sustrato electrofisiológico de la consolidación de la memoria y el aprendizaje espacial. Adicionalmente, tanto el pterostilbeno como el resveratrol estimulan el aclaramiento de agregados proteicos tóxicos intracelulares —tales como ovillos neurofibrilares de proteína tau hiperfosforilada y oligómeros de beta-amiloide— a través de la reactivación autofágica coordinada por la desacetilación de Beclin-1 mediada por SIRT1.
Farmacocinética Comparativa: Solubilidad, Absorción y Destino Hepático
Para calibrar de forma precisa el impacto clínico y culinario de estas moléculas, resulta imperioso desglosar su comportamiento a lo largo del tracto gastrointestinal. El resveratrol se caracteriza por una absorción transepitelial relativamente alta en el yeyuno humano mediante difusión pasiva y transportadores de monocarboxilatos (MCT), logrando que cerca del 70% de una dosis ingerida penetre la mucosa enterocítica. Sin embargo, su destino dentro del enterocito es adverso: una batería de enzimas UGT1A1 y SULT1A1 somete al compuesto a una glucuronidación y sulfatación previas al paso hepático, transformándolo predominantemente en resveratrol-3-O-glucurónido y resveratrol-3-O-sulfato.
Al ingresar al sistema porta hepático, el resveratrol remanente experimenta un segundo y letal ciclo de conjugación de Fase II en los hepatocitos. Como consecuencia directa, los niveles plasmáticos de resveratrol no conjugado (forma activa libre) en ensayos farmacológicos humanos apenas alcanzan concentraciones nanomolares (Cmax < 10-40 nM tras dosis orales estándares de 250 mg). En marcado contraste, la naturaleza dimetilada del pterostilbeno reduce drásticamente el reconocimiento estérico por parte de las sulfotransferasas y limita su metabolismo a un único sitio de glucuronidación en el carbono 4'.
Esta ventaja cinética se traduce en parámetros farmacocinéticos dramáticamente superiores para el pterostilbeno: un área bajo la curva (AUC) que supera entre cuatro y seis veces a la del resveratrol, una concentración plasmática máxima (Cmax) en rango micromolar alcanzable mediante ingesta oral controlada, y un volumen de distribución tisular significativamente más amplio. Mientras el resveratrol conjugado es depurado rápidamente por vía urinaria, el pterostilbeno exhibe una circulación enterohepática parcial que prolonga su presencia biológica en el organismo, permitiendo una cobertura enzimática sostenida sobre SIRT1 y AMPK a lo largo del ciclo nictemeral.
Sinergias Moleculares y la Matriz Lipídica Culinaria
Uno de los postulados fundamentales de la gastronomía molecular aplicada a la salud radica en que los fitoquímicos jamás actúan aislados en la naturaleza, sino en matrices biológicas de enorme complejidad. Al estudiar la co-administración de pterostilbeno y resveratrol, la literatura científica revela un sinergismo recíproco: el pterostilbeno puede modular la actividad de ciertas enzimas de desintoxicación que degradan al resveratrol, mientras que la presencia simultánea de quercetina y piperina (el alcaloide de Piper nigrum) inhibe competitivamente las sulfotransferasas intestinales y la glicoproteína P (transportador de expulsión celular), duplicando la semivida y absorción de ambos estilbenos.
Asimismo, dada la naturaleza altamente hidrófoba de estos compuestos (particularmente del pterostilbeno), su incorporación en un entorno lipídico es un imperativo fisicoquímico para evitar su precipitación en el lumen intestinal acuoso. La disolución de extractos ricos en estilbenos en aceites ricos en ácidos grasos monoinsaturados, como el aceite de oliva virgen extra (rico en ácido oleico y tirosol), favorece la formación de micelas mixtas con las sales biliares endógenas y los fosfolípidos gástricos. Esta micelación lípido-polifenólica optimiza el transporte a través de la capa de agua inmóvil que recubre los enterocitos, multiplicando hasta por cuatro la tasa de absorción neta de los principios activos.
En el ámbito de la cocina culinaria funcional, la interacción con carbohidratos complejos también juega un rol relevante. Procesos culinarios inteligentes como la activación enzimática del almidón pueden generar entornos digestivos más gentiles, evitando la fermentación excesiva en el colon proximal y permitiendo una liberación prolongada de los fitonutrientes hidrófobos. La alianza entre ácidos grasos saludables, una temperatura culinaria moderada (que evite la isomerización de la conformación trans biológicamente activa a la conformación cis inactiva) y una matriz alimentaria estructurada convierte a cada plato en un vehículo farmacodinámico insuperable.
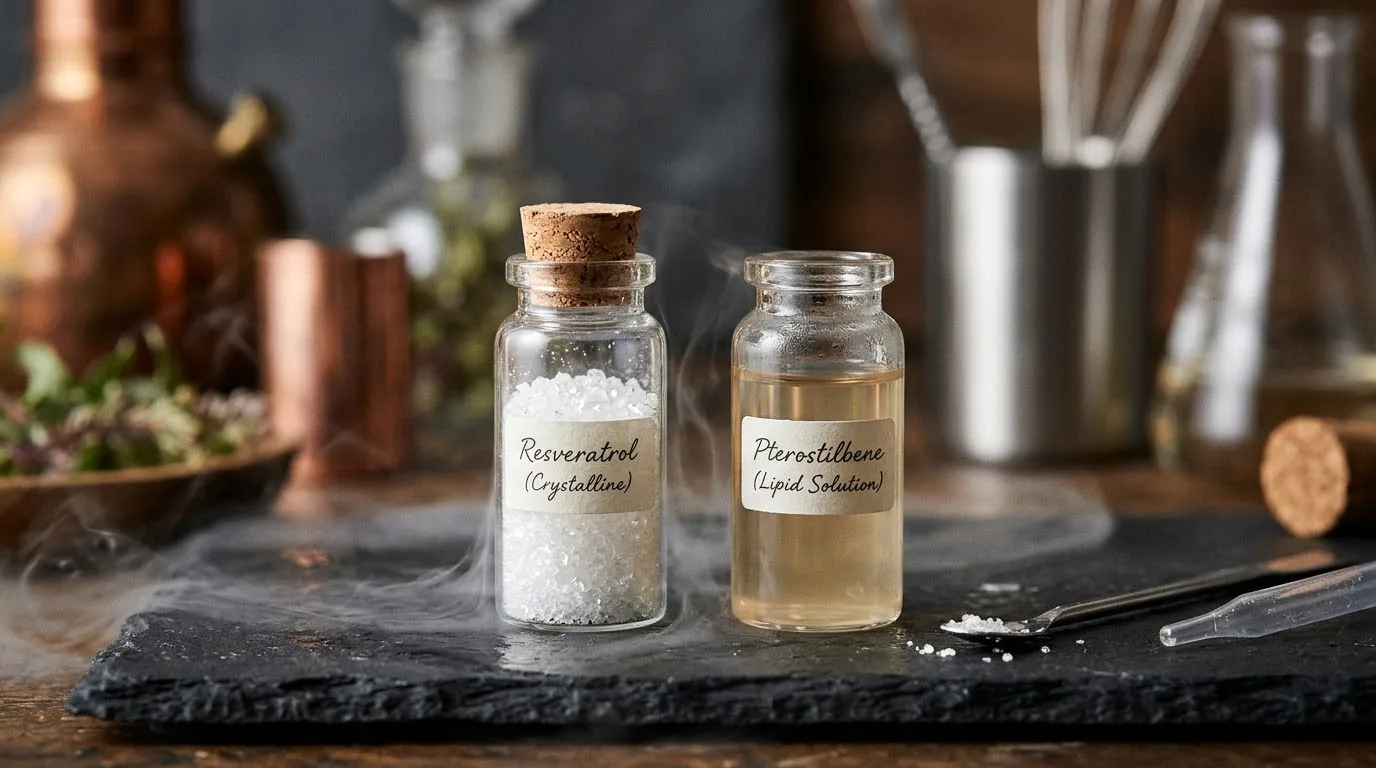
La Guía del Gastrónomo Científico: De la Farmacopea Botánica a la Mesa
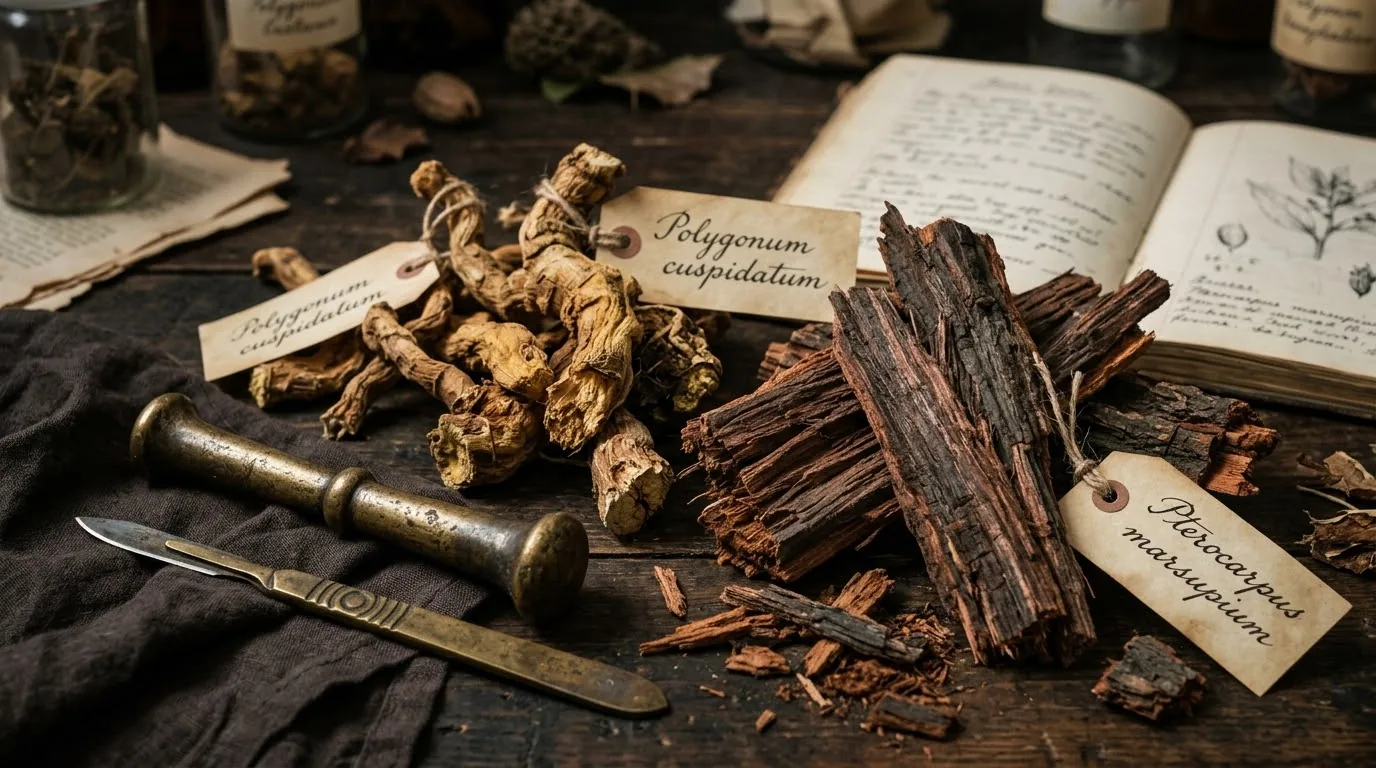
Para trasladar estos descubrimientos biomecánicos a la práctica culinaria diaria de excelencia, es fundamental cartografiar las fuentes botánicas más selectas de ambos estilbenos. Mientras el resveratrol halla su máxima expresión en los hollejos y semillas de uvas tintas como la Vitis vinifera (especialmente en variedades de hollejo grueso sometidas a estrés ambiental como Tannat, Pinot Noir o Tempranillo), en la raíz de Polygonum cuspidatum y en frutos secos como el cacahuete con piel, el pterostilbeno se concentra de forma extraordinaria en las bayas silvestres del género Vaccinium (arándanos azules, arándanos negros y lingonberries) y en la madera del árbol milenario Pterocarpus marsupium.
La preservación de la conformación estereoespecífica trans es el mandamiento sagrado en la cocina de los estilbenos. La radiación ultravioleta directa y las temperaturas de cocción agresivas (superiores a 120°C en medios acuosos prolongados) inducen la fotodescomposición e isomerización geométrica hacia el isómero cis-estilbeno, cuya afinidad por el dominio N-terminal de SIRT1 y la inhibición de Keap1 cae en más de un 85%. Por tanto, las reducciones de bayas deben elaborarse a fuego lento o mediante cocción al vacío sous-vide a baja temperatura (inferior a 65°C), incorporando siempre una fuente lipídica virgen para proteger la integridad del doble enlace central conjugado.
La pauta de integración de autor aconseja el diseño de emulsiones bioactivas que sincronicen la cromatografía natural de los ingredientes: una vinagreta emulsionada en frío con aceite de oliva virgen extra de cosecha temprana, reducción ligera de moras y arándanos silvestres majados en mortero de piedra, acompañada de un toque microscópico de pimienta negra recién molida para aportar piperina biodisponible. Este maridaje biofísico asegura la máxima estabilidad molecular, un sabor estructurado e indómito, y una biodisponibilidad tisular que transforma el placer culinario en un escudo molecular imperecedero para la longevidad de nuestras células.
Pautas Nutricionales & Recomendaciones Dietéticas
Vehiculización lipídica indispensable: Consume siempre las fuentes de estilbenos (arándanos, extractos de uva) junto con grasas monoinsaturadas de alta pureza (AOVE, aguacate o frutos secos) para facilitar la formación de micelas mixtas y multiplicar su biodisponibilidad.
Protección térmica estricta: Evita exponer los frutos ricos en pterostilbeno a temperaturas superiores a los 100°C; opta por consumirlos frescos, triturados en frío o mediante cocciones a baja temperatura (sous-vide <65°C) para impedir la isomerización a cis-pterostilbeno inactivo.
Sinergia con piperina y flavonoides: Combina bayas ricas en estilbenos con una pizca milimétrica de pimienta negra (piperina) y alimentos ricos en quercetina (cebolla roja, alcaparras o manzanas) para inhibir transitoriamente la sulfatación intestinal de Fase II.
Conservación al abrigo de la luz y el oxígeno: Los estilbenos sufren fotodegradación rápida ante la luz ultravioleta; almacena los arándanos, uvas y polifenoles en recipientes opacos o de vidrio ámbar en refrigeración constante.
Preguntas y Respuestas Frecuentes (10 Claves)
Respuestas a las preguntas y aspectos técnicos más consultados sobre esta investigación gastronómica.
Posee dos grupos metoxilo (-OCH3) en lugar de grupos hidroxilo (-OH), lo que lo convierte en una molécula significativamente más lipófila. Esto reduce su aclaramiento hepático de Fase II, multiplica su biodisponibilidad oral (80% vs 20%) y prolonga su semivida plasmática hasta 120 minutos frente a los 14 minutos del resveratrol.
Sus fuentes dietéticas primordiales son las bayas del género Vaccinium, destacando los arándanos azules silvestres (Vaccinium angustifolium), los arándanos negros europeos (Vaccinium myrtillus) y, en menor proporción, las uvas tintas y la madera de Pterocarpus marsupium.
La activación alostérica significa que el estilbeno se une a una región no catalítica de la enzima SIRT1, provocando un cambio conformacional que aumenta su afinidad por sus sustratos celulares. Esto promueve la desacetilación de PGC-1α, disparando la biogénesis mitocondrial y la reparación del ADN.
Actúa a través de la hormesis nutricional, activando la vía Keap1-Nrf2-ARE. Al modificar covalentemente residuos de cisteína en Keap1, libera al factor de transcripción Nrf2 para que viaje al núcleo y ordene la síntesis masiva de enzimas endógenas maestras como la superóxido dismutasa (SOD), la catalasa y la hemo oxigenasa-1.
Sí, gracias a su marcada lipofilicidad derivada de su estructura dimetilada, el pterostilbeno atraviesa la barrera hematoencefálica de manera ostensiblemente más eficaz que el resveratrol hidrosoluble, ejerciendo acciones neuroprotectoras directas en el hipocampo y el córtex.
El isómero 'trans' es la conformación molecular extendida, termoestable a temperatura moderada y biológicamente activa sobre SIRT1 y AMPK. El isómero 'cis' surge por fotodegradación o cocción a altas temperaturas, careciendo casi por completo de actividad activadora enzimática.
No. El vino tinto contiene concentraciones relevantes de resveratrol, pero niveles extraordinariamente bajos de pterostilbeno (trazas). Para obtener pterostilbeno dietético significativo es necesario recurrir a las bayas silvestres oscuras, polifenoles concentrados o la farmacopea botánica.
Absolutamente. Ambos compuestos atacan dianas celulares complementarias y el pterostilbeno ayuda a amortiguar la rápida eliminación del resveratrol en la circulación, logrando un estímulo bifásico: uno rápido y transitorio por el resveratrol y uno sostenido y profundo por el pterostilbeno.
El AOVE proporciona los ácidos grasos de cadena larga necesarios para que el sistema digestivo formule micelas lipídicas mixtas con las sales biliares. Los estilbenos se disuelven en el núcleo hidrófobo de estas micelas, multiplicando su transporte por los enterocitos.
Las cocciones prolongadas en ebullición abierta pueden degradar hasta un 60-80% del contenido de estilbenos mediante isomerización y oxidación. Se recomienda consumir las bayas en preparaciones crudas, liofilizadas o reducidas al vacío a temperaturas no superiores a 65°C.