
Áreas del Conocimiento Culinario
Mostrando 20 de 325 términos · Página 6 de 17
Cruz de Malta
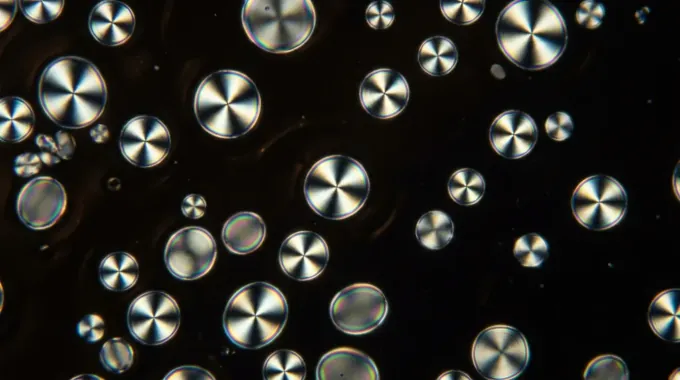
Birrefringencia del gránulo de almidón bajo luz polarizada cruzada
[ˈkɾuθ ðe ˈmal.ta]
Patrón óptico interferencial de extinción cruciforme característico observado mediante microscopía óptica de polarización (PLM) en gránulos nativos de almidón intactos. Este fenómeno es el resultado directo de la birrefringencia positiva intrínseca exhibida por el empaquetamiento radial y altamente ordenado de las dobles hélices de amilopectina, las cuales configuran una estructura semicristalina cuasi-esférica con anisotropía óptica pronunciada. En gastronomía molecular y ciencia de los alimentos, la desaparición progresiva o súbita de la cruz de Malta define con absoluta exactitud analítica el rango de temperatura de gelatinización (T_o, T_p, T_c, típicamente entre 55 °C y 75 °C según el origen botánico). Su pérdida irreversible marca el colapso del orden mesomorfo y la transición de fase vítrea-cristalina a un gel amorfo viscoelástico, alterando radicalmente la viscosidad cinemática, la transparencia coloidal y la textura final del sistema alimentario.
Cuajado láctico
Acidificación isoeléctrica / Desestabilización de caseínas a pH 4,6
[kwaˈxa.ðo ˈlak.ti.ko]
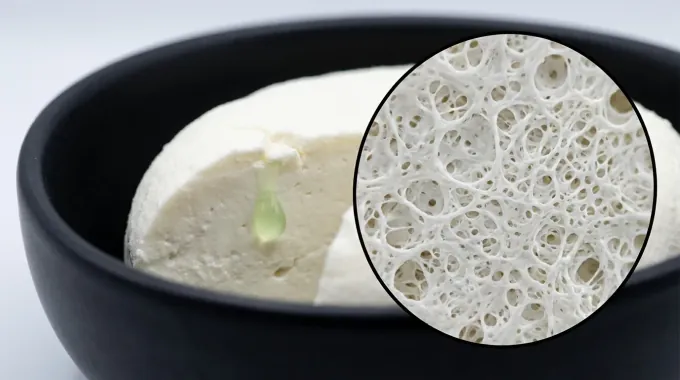
El cuajado láctico es un proceso de desestabilización coloidal e inmovilización de la matriz fluida láctea impulsado exclusivamente por la fermentación ácida lenta o acidificación química directa, en el cual las bacterias ácido-lácticas (BAL) metabolizan la lactosa a ácido L-láctico. A medida que la concentración de protones ([H⁺]) se incrementa y el pH del medio desciende desde su valor nativo de 6,7 hasta alcanzar el punto isoeléctrico (pI) medio de las caseínas (pH 4,60 ± 0,05), la carga neta superficial de las micelas se reduce progresivamente a cero. Esta neutralización de cargas electrostáticas anula las fuerzas repulsivas de Debye-Hückel que mantenían separadas las micelas individuales. Simultáneamente, el descenso gradual de pH solubiliza el fosfato cálcico coloidal (CCP) intramolecular hacia el suero intermicelar, provocando la desestructuración de la arquitectura micelar nativa y su reorganización en una red fractal continua y ramificada. El gel láctico resultante se distingue por ser altamente hidratado, friable, desprovisto de elasticidad elástica marcada (predominio de deformación plástica), con un perfil organoléptico de acidez cítrico-láctica brillante, notas a diacetilo y untuosidad fundente al corte.
Curva de muerte
Curva de supervivencia microbiana / Microbial survivor curve
/ˈkuɾβa de ˈmweɾte/
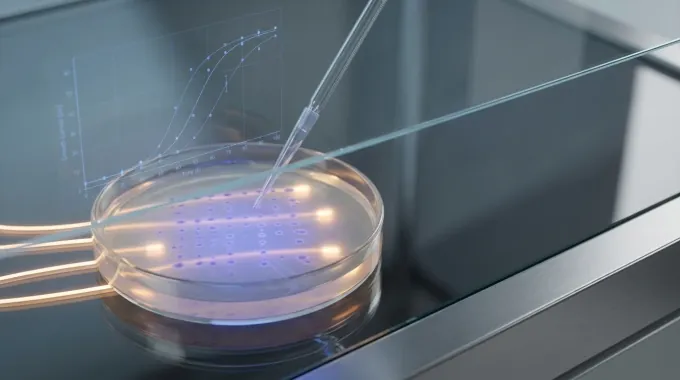
La curva de muerte, o curva de supervivencia microbiana, es la representación gráfica y analítica de la cinética de inactivación biológica de una población de microorganismos o esporas sombreada frente al tiempo de exposición a un agente letal físico o químico (principalmente energía térmica isotérmica). Típicamente trazada en coordenadas semilogarítmicas —con el logaritmo decimal del número de supervivientes (log₁₀ N) en el eje de ordenadas y el tiempo lineal (t) en el eje de abscisas— describe la tasa de decaimiento poblacional conforme las macromoléculas celulares sucumben a la energía cinética impartida. En la ciencia de los alimentos y la alta cocina, la interpretación rigurosa de esta curva es indispensable para identificar anomalías cinéticas respecto al modelo lineal de primer orden tradicional. Fenómenos no lineales como hombros térmicos iniciales (shoulder) o colas de supervivencia asintóticas (tailing) alertan al científico culinario sobre subpoblaciones termorresistentes, agregaciones macromoleculares protectoras o fenómenos de adaptación celular al choque térmico que pueden comprometer tanto la seguridad alimentaria como la homogeneidad textural y la vida útil en almacenamiento en frío.
Degradación por β-eliminación
Escisión no enzimática de enlaces glicosídicos
/deɣɾaðaˈsjon ˈbeta eljminaˈsjon/
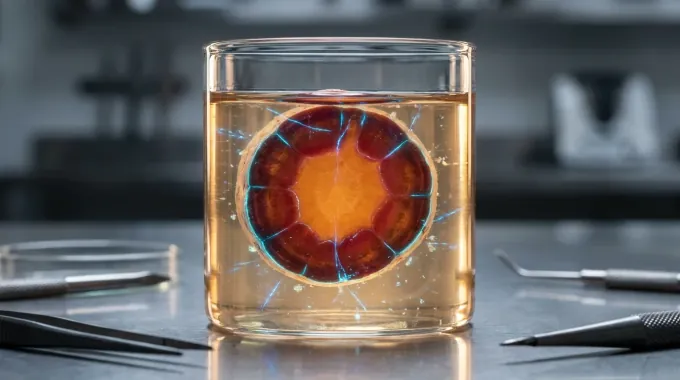
La degradación por β-eliminación es una reacción de lisis química no enzimática que induce la escisión de los enlaces glicosídicos en polisacáridos que contienen grupos funcionales electroatractores adyacentes al carbono en posición alfa (típicamente ésteres metílicos en poligalacturonanos y pectinas). Esta reacción transcurre mediante la abstracción de un protón en el C-5 por un ion hidroxilo libre en condiciones alcalinas o térmicamente aceleradas a pH neutro/débilmente ácido, provocando la rotura del enlace O-glicosídico β-(1→4) y generando simultáneamente un resto insaturado 4,5-deshidrogalacturonosil en el extremo no reductor con máxima absorbancia a 235 nm. En la ciencia gastronómica de vanguardia, este fenómeno constituye el mecanismo primordial responsable del colapso estructural, la pérdida de turgencia y el ablandamiento tisular de paredes celulares vegetales durante la cocción térmica. Su control cinético riguroso es determinante para evitar la lisis masiva de la lámina media en purés, texturizados vegetales de alta gama y geles pectínicos, donde una rotura incontrolada desencadena sinéresis catastrófica, licuefacción del retículo polimérico y disolución de los complejos tridimensionales con cationes divalentes como el Ca²⁺.
Descarboxilación málico-láctica
Conversión enzimática de L-malato a L-lactato y CO2
/deskaɾboksilaˈsjon ˈmaliko ˈlaktika/
La descarboxilación málico-láctica (a menudo referida enológicos como fermentación maloláctica) es una biotransformación no glucolítica catalizada por la enzima maloláctica intracelular (MLE, aproximadamente 120-140 kDa como dímero/tetrámero funcional) presente en bacterias lácticas especializadas, predominantemente Oenococcus oeni y Lactiplantibacillus plantarum. El proceso consiste en la descarboxilación directa y estereoespecífica del ácido L-(-)-málico (un ácido dicarboxílico agresivo) en ácido L-(+)-láctico (un ácido monocarboxílico de impacto sensorial atenuado) y dióxido de carbono gaseoso, sin liberación libre de intermediarios como el piruvato o el malato libre. En la ciencia de los alimentos y la gastronomía de vanguardia, esta reacción reduce la acidez titulable molar total del sistema y eleva el pH de la matriz típicamente en 0.1 a 0.3 unidades. Biofísicamente, atenúa la agresividad sensorial de la acidez 'verde' málica, impartiendo una sensación táctil en boca suntuosa y sedosa debida al incremento relativo de la viscosidad cinemática y la síntesis colateral de diacetilo (2,3-butanodiona) y acetoína, alterando profundamente las interacciones hidrofóbicas entre los polifenoles de la matriz y las mucinas salivares humanas.
Descenso crioscópico
Depresión del punto de congelación, ΔTf
[de(s)ˈsen.so kɾjo(s)ˈko.pi.ko]
El descenso crioscópico es una propiedad coligativa termodinámica por la cual la temperatura de transición de fase líquida a sólida de un solvente disminuye de manera directamente proporcional a la molalidad de los solutos no volátiles disueltos en él. En sistemas bioalimentarios acuosos, la presencia de azúcares mono y disacáridos (glucosa, fructosa, sacarosa), sales inorgánicas (NaCl, KCl) y polioles perturba la formación de la red cristalina hexagonal regular del hielo (espacio de red Ih), obligando a remover una mayor cantidad de energía térmica para alcanzar el equilibrio termodinámico entre el potencial químico del agua líquida y el agua sólida. En la alta pastelería y formulación de helados de vanguardia (gelato molecular, sorbetes hiperconcentrados y emulsiones congeladas saladas), el control matemático del descenso crioscópico determina la fracción de agua congelable versus el agua que permanece en estado de solución vítrea o líquida a temperaturas de servicio (-10 °C a -18 °C). La manipulación rigurosa del Poder Anticongelante (PAC, indexado convencionalmente a la sacarosa con PAC = 1.0) gobierna la dureza reológica, la deformabilidad plástica, el tiempo de fundido oral (meltdown profile) y la inhibición del fenómeno de recristalización y coalescencia de cristales de hielo.
Descomposición enzimática y bacteriana de TMAO
Reducción a Trimetilamina / TMA, EC 1.7.99.4
[deskomposiˈsjon de te.eme.a.o]
La descomposición de TMAO es la vía metabólica y bioquímica degradativa central en productos hidrobiológicos post-mortem, mediante la cual el óxido de trimetilamina actúa como aceptor terminal de electrones, siendo reducido anaeróbicamente a trimetilamina (TMA), o alternativamente escindido a dimetilamina (DMA) y formaldehído. Esta ruta es catalizada bacterianamente por el complejo enzimático trimetilamina-N-óxido reductasa (TMAO-reductasa, EC 1.7.99.4) de bacterias psicrotróficas alterantes, principalmente de los géneros Shewanella y Photobacterium. En la gastronomía científica, este proceso marca el fin de la fase de rigor mortis fresco y el inicio del deterioro sensorial. La trimetilamina libre resultante (peso molecular 59.11 g/mol) posee una volatilidad extrema y un umbral olfativo ultra-bajo (0.0006 mg/m³ en aire), confiriendo de manera instantánea el clásico olor acre, 'a pescado degradado' o amoniacal. El control riguroso de su cinética de formación es el eje técnico que determina la viabilidad de pescados para consumo crudo de vanguardia, marinados por curado osmótico o procesos de cocción a baja temperatura al vacío.
Desestabilización por quimosina
Hidrólisis endopeptidasa del enlace peptídico Phe105-Met106
[des.es.ta.bi.li.saˈsjon poɾ ki.moˈsi.na]
La desestabilización por quimosina es un proceso de bifurcación de fases cinético-enzimático en el cual la endopeptidasa aspártica quimosina (EC 3.4.23.4) hidroliza con una especificidad nanomolar extrema el enlace peptídico estereoespecífico Phe105-Met106 de la κ-caseína monomérica ubicada en la periferia de las micelas. Esta reacción produce la escisión irreversible de la glucoproteína en dos fragmentos: la para-κ-caseína altamente hidrofóbica (residuos 1-105), que permanece anclada al núcleo micelar, y el caseinoglicomacropéptido hidrófilo y cargado negativamente (residuos 106-169), que difunde de inmediato a la fase de suero acuoso. En la gastronomía estructural, este fenómeno catalítico marca la transición de una dispersión líquida lechosa homogénea a una red coloidal viscoelástica continua de cuajada láctea (gel bifásico). El control riguroso de esta desestabilización permite modular la firmeza elástica (módulo de almacenamiento G'), la permeabilidad de la matriz y el grado de exudación de suero, bases biofísicas fundamentales para el diseño de quesos de alta precisión técnica, espumas coaguladas en frío y texturas de lácteos reconstituidos.
Desmineralización micelar
Disolución del fosfato cálcico coloidal / CCP Solubilization
[des.mi.ne.ɾa.li.zaˈsjon mi.seˈlaɾ]
La desmineralización micelar es el fenómeno biofísico y termodinámico mediante el cual el fosfato tricálcico coloidal amorfo [nanoclústeres de Ca9(PO4)6 con puentes cruzados de caseína], localizado intrínsecamente en el núcleo de la micela de caseína, se desliga de las fosfoserinas proteicas y transita hacia la fase acuosa continua como iones solubles (Ca²⁺, HPO4²⁻, H2PO4⁻). Este proceso puede ser inducido mediante acidificación controlada (gradiente de pH), intercambio iónico, quelación química (uso de citratos o fosfatos secuestrantes) o diálisis isotérmica prolongada. La extracción de estos nanocristales minerales destruye los puentes de unión electrostáticos que aglutinan las subunidades de caseína, induciendo una disociación estructural profunda de la micela globular densa nativa en submicelas o monómeros individuales (principalmente monómeros de β-caseína libre). A nivel culinario y de textura alimentaria, la desmineralización micelar total o parcial transforma radicalmente las propiedades de fluidez: la suspensión pierde opacidad (degradación del scattering de Rayleigh/Mie, volviéndose translúcida), sufre una caída drástica de la viscosidad cinemática, incrementa su capacidad de retención de agua por exposición de residuos hidrofílicos y altera sustancialmente su aptitud para la termocoagulación y la hilatura (base de la elasticidad de quesos tipo pasta hilada).
Desnaturalización de actina
Actin thermal unfolding / Desplegamiento de G/F-actina
[des.na.tu.ɾa.li.zaˈsjon de akˈti.na]
La desnaturalización de la actina es la transición de fase conformacional termotrópica en la cual la F-actina (polímero globular de ~42 kDa por monómero) pierde irreversiblemente su estructura cuaternaria y terciaria, desenrollando sus hélices alfa y exponiendo residuos hidrofóbicos al solvente. En gastronomía molecular, esta transición endotérmica ocurre en un rango térmico crítico (66 °C a 73 °C) y marca el límite exacto entre una textura cárnica tierna y jugosa y una estructura seca, astringente y fibrosa, debido al encogimiento longitudinal severo de los sarcómeros y a la extrusión forzada de agua intracelular (sinéresis inducida por calor).
Desnaturalización de suero
transición conformacional térmica sol-gel de seroproteínas
[dez.na.tu.ɾa.li.saˈsjon de ˈswe.ɾo]
La desnaturalización del suero comprende el conjunto de modificaciones cooperativas conformacionales, biofísicas y químicas que experimentan las proteínas globulares de la fracción del lactosuero (principalmente β-lactoglobulina, α-lactoalbúmina, albúmina de suero bovino [BSA] e inmunoglobulinas) al verse expuestas a perturbaciones térmicas, mecánicas, hidrostáticas o variaciones de pH, abandonando su estado nativo de mínima energía libre. En la gastronomía contemporánea de precisión, este fenómeno marca la frontera termodinámica fundamental entre una solución líquida newtoniana límpida y una matriz viscoelástica gelificada con capacidad de retención hídrica (capacidad de retención de agua, WHC > 90%). A escala sensorial, la correcta orquestación cinético-térmica de la desnaturalización evita el agrisamiento y la sinéresis de geles salados o dulces, modula la cremosidad sin adición de lípidos densos y optimiza la elasticidad interna de emulsiones emulsionadas en cocciones circulares sous-vide.
Desnaturalización interfacial
Desplegamiento proteico inducido por adsorción en interfases hidrofóbicas líquido-gas o líquido-líquido
[des.na.tu.ɾa.li.saˈθjon in.teɾ.faˈsjal]
La desnaturalización interfacial es el proceso biofísico y termodinámico mediante el cual las macromoléculas proteicas en conformación globular nativa globular experimentan un desplegamiento conformacional irreversible o cuasi-reversible al adsorberse espontáneamente en una interfase hidrofóbica, típicamente agua-aire (espumas) o agua-aceite (emulsiones). Al entrar en contacto con el límite de fases, la proteína rompe su empaquetamiento nativo para orientar sus residuos de aminoácidos hidrofóbicos (leucina, isoleucina, fenilalanina, valina) hacia la fase no polar (aire o lípido) y sus residuos hidrofílicos cargados o polares hacia la fase acuosa continua. Este fenómeno constituye el pilar fundacional de la física del batido (merengues, soufflés, mousses) y la emulsificación mecánica de vanguardia. La desnaturalización interfacial no depende de la temperatura térmica, sino de la disminución drástica de la tensión interfacial (γ) y la ganancia entrópica del agua solvatante liberada. Genera una transición conformacional que transforma solutos solubles en capas poliméricas cohesivas que blindan mecánicamente las microgotas lipídicas o las burbujas de gas frente a fenómenos de desestabilización como la coalescencia, maduración de Ostwald y dislocación coloidal.
Desnaturalización Proteica por Urea
Caotropismo por Agentes Desorganizadores
/des.na.tu.ɾa.li.saˈθjon poɾ uˈɾe.a/
La desnaturalización por urea es una transición conformacional no enzimática ni térmica mediada químicamente, en la cual concentraciones molares elevadas de urea (típicamente 6.0 a 8.0 M) provocan el colapso del estado nativo de una proteína globular hacia un estado desplegado de ovillo aleatorio (random coil). Este fenómeno cursa con la ruptura masiva de puentes de hidrógeno intramoleculares, la perturbación drástica del efecto hidrofóbico interno y la exposición irreversible o reversible de residuos peptídicos apolares al medio acuoso. En la ciencia de los alimentos y la gastronomía molecular de investigación, este mecanismo es el modelo arquetípico para la elucidación del plegamiento proteico, la desestructuración controlada de redes de queratina o colágeno refractarias y el estudio del secuestro y biodisponibilidad de aromas hidrofóbicos. En ingredientes no convencionales o marinos (como el tejido muscular de condrictios: tiburón y raya), la urea endógena actúa como un agente plastificante natural que condiciona severamente la retención de agua, la formación de geles cárnicos y la emanación amoniacal post-mortem si no se gestiona bioquímicamente.
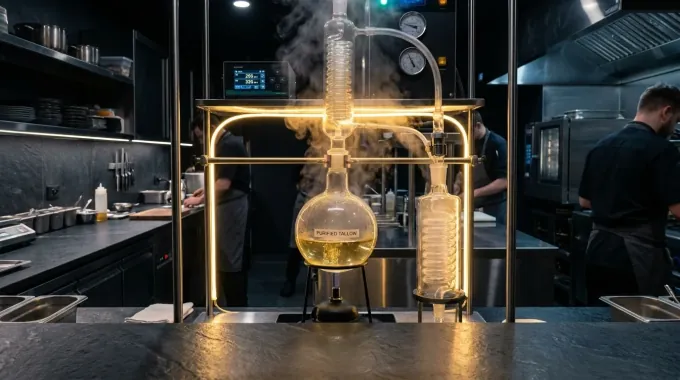
Desodorización al vacío
Destilación por arrastre con vapor a baja presión para purificación lipídica
[desoðoɾisaˈsjon al βaˈsi.o]
La desodorización al vacío es un proceso de destilación por arrastre con vapor y extracción termofísica diseñado para separar compuestos orgánicos volátiles (COVs) y ácidos grasos libres (AGL) de una matriz lipídica triacilglicerólica. Esta operación se fundamenta en las notables diferencias de presión de vapor relativa entre las moléculas triglicéricas de alto peso molecular (generalmente >800 Da, prácticamente no volátiles) y las impurezas olorosas de bajo peso molecular (aldehídos, cetonas, hidrocarburos terpénicos y alcoholes volátiles, generalmente <200 Da). En la cocina tecno-emocional y la investigación de lípidos culinarios puros, este proceso purifica aceites rústicos o mantecas intensas (como grasa de vacuno madurado, aceite de semillas silvestres o manteca de cacao defectuosa), neutralizando notas rancias, cetónicas o sobre-fermentadas sin destruir la integridad del glicerol. El producto resultante es un medio lipídico organolépticamente inerte con un punto de humo significativamente elevado (>230 °C), óptimo como vehículo aromático puro o base emulsionante neutra.
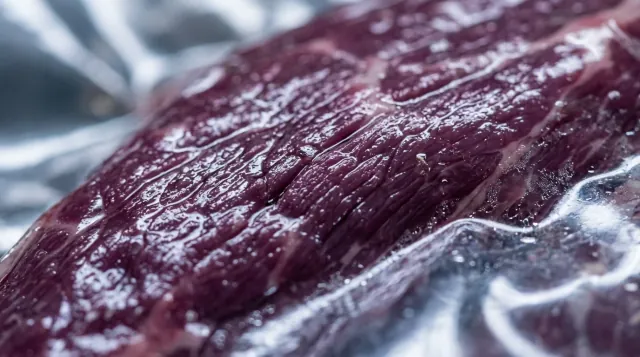
Desoximioglobina muscular
Fe²⁺ no ligada, Mb
[de.sok.si.mjo.ɣloˈβi.na mus.kuˈlaɾ]
La desoximioglobina muscular constituye el estado conformacional nativo y desoxigenado de la hemoproteína monomérica citosólica sarcoplásmica (peso molecular aproximado de 16.7 kDa), caracterizada por un catión ferroso central (Fe²⁺) hexacoordinado imperfecto donde la sexta posición de coordinación permanece vacante en condiciones de anoxia o presión parcial de oxígeno (pO₂) inferior a 1.4 mmHg (0.19 kPa). Este estado confiere al tejido muscular post mórtem un color rojo púrpura oscuro o violáceo profundo característico, visible inmediatamente tras el corte profundo de la masa muscular antes de su exposición atmosférica o en sistemas de envasado al vacío de alta barrera. En la matriz cárnica de alta cocina, la estabilidad de la desoximioglobina es un indicador crítico de frescura tisular y viabilidad metabólica residual del sistema reductor enzimático sarcoplásmico (metamioglobina reductasa). Su preservación evita transiciones tempranas hacia la metamioglobina parda, garantizando que el corte mantenga una reactividad cromógena óptima para el posterior bloom u oxigenación controlada en el emplatado, optimizando las propiedades ópticas superficiales de carnes maduradas en atmósferas modificadas.
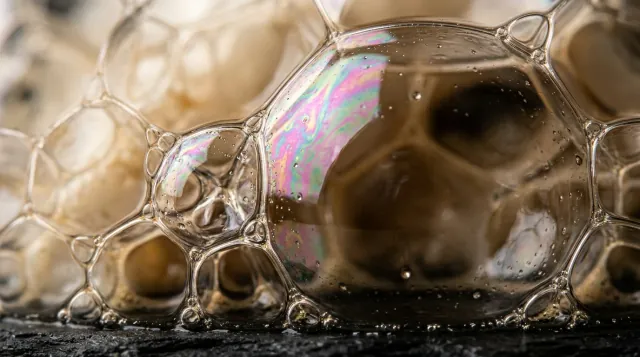
Desproporción gaseosa
Maduración difusiva interburbuja por diferencia de Laplace
[des.pɾo.poɾˈsjon ɣa.seˈo.sa]
La desproporción gaseosa es la manifestación específica de la maduración de Ostwald que opera exclusivamente en fases dispersas gaseosas (espumas líquidas o sólidas). Este proceso consiste en la transferencia neta de moléculas de gas disuelto desde burbujas pequeñas hacia burbujas más grandes a través del film líquido continuo que las separa, impulsado de manera irrevocable por el gradiente de presión de Laplace entre microcavidades de diferente curvatura geométrica. En las aplicaciones culinarias de vanguardia, la desproporción gaseosa es el principal agente de envejecimiento y destrucción de la homogeneidad celular en panes de fermentación prolongada, espumas etéreas de sifón y la crema persistente del café espresso de especialidad. El proceso degrada la arquitectura molecular inicial de la espuma, extinguiendo la opalescencia y la untuosidad y desembocando en una estructura cavernosa, irregular, con pérdida notable de retención de gas y desprendimiento acelerado de efluvios aromáticos.
Dextrinas cíclicas
Ciclodextrinas, α-, β- y γ-ciclodextrina; cycloamyloses
[deksˈtɾinas ˈsiklikas]
Las dextrinas cíclicas, universalmente conocidas como ciclodextrinas, son oligosacáridos no reductores formados por unidades de D-glucopiranosa unidas en una configuración cíclica cerrada mediante enlaces glucosídicos α-(1→4). Producidas biotecnológicamente mediante la degradación enzimática intramolecular del almidón catalizada por la enzima ciclodextrina glucanotransferasa (CGTasa), las tres variantes naturales dominantes son la alfa (α), beta (β) y gamma (γ)-ciclodextrina, compuestas por 6, 7 y 8 unidades de glucosa respectivamente. Su conformación espacial tridimensional adopta una geometría tridimensional toroidal o de cono truncado extremadamente característica, la cual posee una cavidad interna apolar relativamente hidrofóbica y una superficie externa altamente hidrofílica dotada de abundantes grupos hidroxilo. En la ciencia gastronómica de vanguardia, esta dualidad anfipática convierte a las dextrinas cíclicas en nanocapsuladores moleculares de precisión incomparable. Tienen la capacidad de formar complejos de inclusión hospedador-huésped (host-guest complexes) sin recurrir a enlaces covalentes con moléculas lipófilas volátiles, aceites esenciales, pigmentos hidrófobos y lípidos bioactivos. Esto permite solubilizar sustancias insolubles en agua, estabilizar aromas volátiles termolábiles frente al calor de la cocción, atrapar compuestos de sabor amargo o indeseables (como la trimetilamina en pescados o los flavonoides amargos) y transformar grasas puras líquidas en polvos estables y secos que liberan instantáneamente su fase lipídica al contacto con la saliva.
Difenol oxidasa
Catecol oxidasa / EC 1.10.3.1
/di.feˈnol ok.siˈda.sa/
La difenol oxidasa (específicamente catalogada como catecol oxidasa o difenolasa) es una oxidorreductasa que cataliza exclusivamente la deshidrogenación aeróbica de orto-dihidroxifenoles (como catecol, ácido cafeico, clorogénico o quercetina) a sus correspondientes orto-benzoquinonas, utilizando oxígeno molecular como aceptor final de electrones sin exhibir actividad hidroxilante sobre monofenoles. Estructuralmente emparentada con la tirosinasa mediante el mismo motivo bimetálico de cobre acoplado (Cu-A y Cu-B), la enzima presenta un impedimento estérico específico en su cavidad catalítica —habitualmente conferido por una cadena lateral voluminosa de fenilalanina (Phe) en proximidad al centro metálico— que bloquea físicamente la unión orientada de monofenoles. En gastronomía, la difenol oxidasa es la responsable directa del colapso oxidativo fulminante que sufren los purés de tubérculos, salsas verdes de hierbas frescas (clorofila protegida pero fenoles expuestos), jugos crudos de trufa y emulsiones de té verde o café, alterando los tonos clorofílicos y amarillos hacia gamas pardas mates y desarrollando una astringencia astringente ligada a la precipitación de la saliva humana.
Dimetilamina del pescado (DMA, N-metilmetanamina, C2H7N) y Formaldehído endógeno
HCHO
[dimetilaˈmina ðel pesˈkaðo]
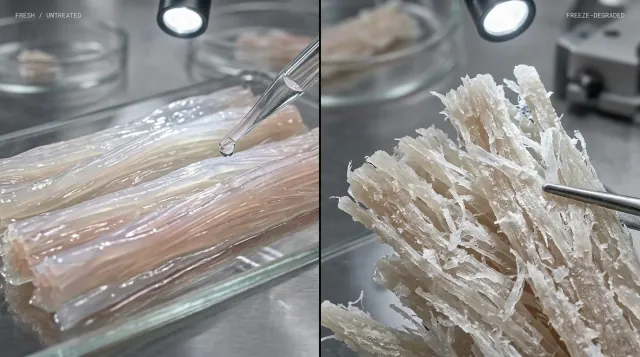
La dimetilamina (DMA) es una amina alifática secundaria producida principalmente durante el almacenamiento en congelación de especies gadiformes (bacalao, merluza, abadejo) a través del clivaje equimolar del óxido de trimetilamina (TMAO) en dimetilamina y formaldehído (FA). Esta transformación no bacteriana es catalizada por la enzima intramiofibrilar e insolubilizada trimetilamina-N-óxido demetilasa (TMAO-asa o TMAO-aldolasa, EC 4.1.2.32), un complejo enzimático asociado a las fracciones microsomales y mitocondriales del músculo blanco y rojo del pescado. En la alta cocina, la acumulación de DMA en sí misma aporta una nota de envejecimiento aminado menos volátil que la trimetilamina, pero su relevancia crítica radica en su coproducto estequiométrico: el formaldehído (HCHO). El formaldehído libre generado induce el entrecruzamiento covalente (cross-linking) de las cadenas de miosina y actomiosina muscular mediante la formación de puentes metilénicos insolubles. El resultado gastronómico es catastrófico: el pescado congelado sufre endurecimiento leñoso, pérdida absoluta de jugosidad (capacidad de retención de agua colapsada) y una textura esponjosa, algodonosa y seca que arruina cualquier tratamiento térmico preciso.
Doble capa eléctrica
Modelo Gouy-Chapman-Stern-Grahame, EDL
[ˈdo.βle ˈka.pa eˈlek.tɾi.ka]
La doble capa eléctrica (EDL, por sus siglas en inglés) es la estructura nanoestructurada interfacial que describe el ordenamiento espacial de iones libres y dipolos de solvente en la vecindad inmediata de una superficie cargada eléctricamente, como una gota de aceite recubierta de emulsionante, un gránulo de almidón en dispersión o una micela de caseína. Se compone estructuralmente de una capa interna electrostáticamente inmovilizada y una capa difusa externa que se extiende hacia el seno del líquido, manteniendo la neutralidad eléctrica macroscópica del sistema. En la ciencia gastronómica, el espesor y la rigidez de esta doble capa eléctrica dictan directamente la reología, viscosidad aparente, viscoelasticidad interfacial y estabilidad coloidal frente a la agregación en caldos, purés de alta precisión, espumas estabilizadas y salsas emulsionadas. Un espesor extendido de la doble capa eléctrica previene el contacto físico íntimo entre partículas dispersas, impartiendo una sensación bucal sedosa, evitando la arenosidad por precipitación y asegurando una brillantez visual impecable sin recurrir a espesantes tradicionales de alto peso molecular.